JP2010528678A - トランスジェニック哺乳動物の乳中に外因性タンパク質を産生させるための方法 - Google Patents
トランスジェニック哺乳動物の乳中に外因性タンパク質を産生させるための方法 Download PDFInfo
- Publication number
- JP2010528678A JP2010528678A JP2010512197A JP2010512197A JP2010528678A JP 2010528678 A JP2010528678 A JP 2010528678A JP 2010512197 A JP2010512197 A JP 2010512197A JP 2010512197 A JP2010512197 A JP 2010512197A JP 2010528678 A JP2010528678 A JP 2010528678A
- Authority
- JP
- Japan
- Prior art keywords
- modified
- insulin
- insulin precursor
- precursor
- human
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Withdrawn
Links
- 108090000623 proteins and genes Proteins 0.000 title claims abstract description 168
- 230000009261 transgenic effect Effects 0.000 title claims abstract description 140
- 241000124008 Mammalia Species 0.000 title claims abstract description 125
- 235000013336 milk Nutrition 0.000 title claims abstract description 76
- 239000008267 milk Substances 0.000 title claims abstract description 76
- 210000004080 milk Anatomy 0.000 title claims abstract description 76
- 102000004169 proteins and genes Human genes 0.000 title abstract description 130
- 238000004519 manufacturing process Methods 0.000 title abstract description 19
- 239000002243 precursor Substances 0.000 claims abstract description 254
- PBGKTOXHQIOBKM-FHFVDXKLSA-N insulin (human) Chemical compound C([C@@H](C(=O)N[C@@H](CC(C)C)C(=O)N[C@H]1CSSC[C@H]2C(=O)N[C@H](C(=O)N[C@@H](CO)C(=O)N[C@H](C(=O)N[C@H](C(N[C@@H](CO)C(=O)N[C@@H](CC(C)C)C(=O)N[C@@H](CC=3C=CC(O)=CC=3)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(C)C)C(=O)N[C@@H](CCC(O)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CC=3C=CC(O)=CC=3)C(=O)N[C@@H](CSSC[C@H](NC(=O)[C@H](C(C)C)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](CC=3C=CC(O)=CC=3)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](C)NC(=O)[C@H](CCC(O)=O)NC(=O)[C@H](C(C)C)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](CC=3NC=NC=3)NC(=O)[C@H](CO)NC(=O)CNC1=O)C(=O)NCC(=O)N[C@@H](CCC(O)=O)C(=O)N[C@@H](CCCNC(N)=N)C(=O)NCC(=O)N[C@@H](CC=1C=CC=CC=1)C(=O)N[C@@H](CC=1C=CC=CC=1)C(=O)N[C@@H](CC=1C=CC(O)=CC=1)C(=O)N[C@@H]([C@@H](C)O)C(=O)N1[C@@H](CCC1)C(=O)N[C@@H](CCCCN)C(=O)N[C@@H]([C@@H](C)O)C(O)=O)C(=O)N[C@@H](CC(N)=O)C(O)=O)=O)CSSC[C@@H](C(N2)=O)NC(=O)[C@H](CCC(N)=O)NC(=O)[C@H](CCC(O)=O)NC(=O)[C@H](C(C)C)NC(=O)[C@@H](NC(=O)CN)[C@@H](C)CC)[C@@H](C)CC)[C@@H](C)O)NC(=O)[C@H](CCC(N)=O)NC(=O)[C@H](CC(N)=O)NC(=O)[C@@H](NC(=O)[C@@H](N)CC=1C=CC=CC=1)C(C)C)C1=CN=CN1 PBGKTOXHQIOBKM-FHFVDXKLSA-N 0.000 claims abstract description 96
- 108010076119 Caseins Proteins 0.000 claims abstract description 56
- 241000283690 Bos taurus Species 0.000 claims abstract description 48
- 102000011632 Caseins Human genes 0.000 claims abstract description 48
- 235000021247 β-casein Nutrition 0.000 claims abstract description 47
- 101000976075 Homo sapiens Insulin Proteins 0.000 claims abstract description 36
- 210000001082 somatic cell Anatomy 0.000 claims abstract description 27
- 210000000287 oocyte Anatomy 0.000 claims abstract description 23
- 239000013613 expression plasmid Substances 0.000 claims abstract description 20
- 238000012546 transfer Methods 0.000 claims abstract description 18
- 210000002950 fibroblast Anatomy 0.000 claims abstract description 9
- 238000010367 cloning Methods 0.000 claims abstract description 8
- NOESYZHRGYRDHS-UHFFFAOYSA-N insulin Chemical compound N1C(=O)C(NC(=O)C(CCC(N)=O)NC(=O)C(CCC(O)=O)NC(=O)C(C(C)C)NC(=O)C(NC(=O)CN)C(C)CC)CSSCC(C(NC(CO)C(=O)NC(CC(C)C)C(=O)NC(CC=2C=CC(O)=CC=2)C(=O)NC(CCC(N)=O)C(=O)NC(CC(C)C)C(=O)NC(CCC(O)=O)C(=O)NC(CC(N)=O)C(=O)NC(CC=2C=CC(O)=CC=2)C(=O)NC(CSSCC(NC(=O)C(C(C)C)NC(=O)C(CC(C)C)NC(=O)C(CC=2C=CC(O)=CC=2)NC(=O)C(CC(C)C)NC(=O)C(C)NC(=O)C(CCC(O)=O)NC(=O)C(C(C)C)NC(=O)C(CC(C)C)NC(=O)C(CC=2NC=NC=2)NC(=O)C(CO)NC(=O)CNC2=O)C(=O)NCC(=O)NC(CCC(O)=O)C(=O)NC(CCCNC(N)=N)C(=O)NCC(=O)NC(CC=3C=CC=CC=3)C(=O)NC(CC=3C=CC=CC=3)C(=O)NC(CC=3C=CC(O)=CC=3)C(=O)NC(C(C)O)C(=O)N3C(CCC3)C(=O)NC(CCCCN)C(=O)NC(C)C(O)=O)C(=O)NC(CC(N)=O)C(O)=O)=O)NC(=O)C(C(C)CC)NC(=O)C(CO)NC(=O)C(C(C)O)NC(=O)C1CSSCC2NC(=O)C(CC(C)C)NC(=O)C(NC(=O)C(CCC(N)=O)NC(=O)C(CC(N)=O)NC(=O)C(NC(=O)C(N)CC=1C=CC=CC=1)C(C)C)CC1=CN=CN1 NOESYZHRGYRDHS-UHFFFAOYSA-N 0.000 claims description 340
- 238000000034 method Methods 0.000 claims description 152
- 108090001061 Insulin Proteins 0.000 claims description 118
- 102000004877 Insulin Human genes 0.000 claims description 114
- 229940125396 insulin Drugs 0.000 claims description 114
- 239000013612 plasmid Substances 0.000 claims description 66
- 238000004366 reverse phase liquid chromatography Methods 0.000 claims description 56
- 239000000463 material Substances 0.000 claims description 43
- 108010075254 C-Peptide Proteins 0.000 claims description 42
- 230000014509 gene expression Effects 0.000 claims description 38
- 241000283707 Capra Species 0.000 claims description 37
- 150000001413 amino acids Chemical class 0.000 claims description 37
- 239000012634 fragment Substances 0.000 claims description 33
- 108090000765 processed proteins & peptides Proteins 0.000 claims description 32
- 241000283984 Rodentia Species 0.000 claims description 31
- 108010076181 Proinsulin Proteins 0.000 claims description 28
- 210000004027 cell Anatomy 0.000 claims description 28
- 239000011159 matrix material Substances 0.000 claims description 23
- 108091028043 Nucleic acid sequence Proteins 0.000 claims description 20
- 238000005277 cation exchange chromatography Methods 0.000 claims description 20
- 238000000746 purification Methods 0.000 claims description 20
- 238000011210 chromatographic step Methods 0.000 claims description 18
- 101000993774 Ovis aries Insulin Proteins 0.000 claims description 17
- 150000007523 nucleic acids Chemical group 0.000 claims description 17
- 230000008569 process Effects 0.000 claims description 17
- 238000003776 cleavage reaction Methods 0.000 claims description 16
- 230000007017 scission Effects 0.000 claims description 16
- 108090000631 Trypsin Proteins 0.000 claims description 15
- 102000004142 Trypsin Human genes 0.000 claims description 15
- IXIBAKNTJSCKJM-BUBXBXGNSA-N bovine insulin Chemical class C([C@@H](C(=O)N[C@@H](CC(C)C)C(=O)N[C@H]1CSSC[C@H]2C(=O)N[C@@H](C)C(=O)N[C@@H](CO)C(=O)N[C@H](C(=O)N[C@H](C(N[C@@H](CO)C(=O)N[C@@H](CC(C)C)C(=O)N[C@@H](CC=3C=CC(O)=CC=3)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(C)C)C(=O)N[C@@H](CCC(O)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CC=3C=CC(O)=CC=3)C(=O)N[C@@H](CSSC[C@H](NC(=O)[C@H](C(C)C)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](CC=3C=CC(O)=CC=3)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](C)NC(=O)[C@H](CCC(O)=O)NC(=O)[C@H](C(C)C)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](CC=3NC=NC=3)NC(=O)[C@H](CO)NC(=O)CNC1=O)C(=O)NCC(=O)N[C@@H](CCC(O)=O)C(=O)N[C@@H](CCCNC(N)=N)C(=O)NCC(=O)N[C@@H](CC=1C=CC=CC=1)C(=O)N[C@@H](CC=1C=CC=CC=1)C(=O)N[C@@H](CC=1C=CC(O)=CC=1)C(=O)N[C@@H]([C@@H](C)O)C(=O)N1[C@@H](CCC1)C(=O)N[C@@H](CCCCN)C(=O)N[C@@H](C)C(O)=O)C(=O)N[C@@H](CC(N)=O)C(O)=O)=O)CSSC[C@@H](C(N2)=O)NC(=O)[C@H](CCC(N)=O)NC(=O)[C@H](CCC(O)=O)NC(=O)[C@H](C(C)C)NC(=O)[C@@H](NC(=O)CN)[C@@H](C)CC)C(C)C)NC(=O)[C@H](CCC(N)=O)NC(=O)[C@H](CC(N)=O)NC(=O)[C@@H](NC(=O)[C@@H](N)CC=1C=CC=CC=1)C(C)C)C1=CN=CN1 IXIBAKNTJSCKJM-BUBXBXGNSA-N 0.000 claims description 15
- 239000012588 trypsin Substances 0.000 claims description 15
- 229930193140 Neomycin Natural products 0.000 claims description 14
- 229960004927 neomycin Drugs 0.000 claims description 14
- FJVAQLJNTSUQPY-CIUDSAMLSA-N Ala-Ala-Lys Chemical compound C[C@H](N)C(=O)N[C@@H](C)C(=O)N[C@H](C(O)=O)CCCCN FJVAQLJNTSUQPY-CIUDSAMLSA-N 0.000 claims description 13
- 208000013016 Hypoglycemia Diseases 0.000 claims description 13
- 230000002218 hypoglycaemic effect Effects 0.000 claims description 13
- 210000004216 mammary stem cell Anatomy 0.000 claims description 13
- 230000015556 catabolic process Effects 0.000 claims description 12
- 238000006731 degradation reaction Methods 0.000 claims description 12
- 125000001433 C-terminal amino-acid group Chemical group 0.000 claims description 11
- 238000006243 chemical reaction Methods 0.000 claims description 11
- 238000004587 chromatography analysis Methods 0.000 claims description 11
- 230000002255 enzymatic effect Effects 0.000 claims description 11
- 210000001161 mammalian embryo Anatomy 0.000 claims description 11
- 108090000942 Lactalbumin Proteins 0.000 claims description 10
- 241001494479 Pecora Species 0.000 claims description 10
- 238000004255 ion exchange chromatography Methods 0.000 claims description 10
- 241001465754 Metazoa Species 0.000 claims description 9
- 241000282898 Sus scrofa Species 0.000 claims description 8
- 102000004407 Lactalbumin Human genes 0.000 claims description 7
- 108010013369 Enteropeptidase Proteins 0.000 claims description 6
- 102100029727 Enteropeptidase Human genes 0.000 claims description 6
- 108010005991 Pork Regular Insulin Proteins 0.000 claims description 5
- 238000005352 clarification Methods 0.000 claims description 5
- 210000004291 uterus Anatomy 0.000 claims description 5
- 235000021241 α-lactalbumin Nutrition 0.000 claims description 5
- 108020001507 fusion proteins Proteins 0.000 claims description 4
- 102000037865 fusion proteins Human genes 0.000 claims description 4
- 210000004602 germ cell Anatomy 0.000 claims description 4
- 230000035935 pregnancy Effects 0.000 claims description 4
- 238000012544 monitoring process Methods 0.000 claims description 3
- 101001011741 Bos taurus Insulin Proteins 0.000 claims 3
- 238000002955 isolation Methods 0.000 claims 1
- 235000018102 proteins Nutrition 0.000 abstract description 126
- 230000002068 genetic effect Effects 0.000 abstract description 14
- 231100000331 toxic Toxicity 0.000 abstract description 14
- 230000002588 toxic effect Effects 0.000 abstract description 14
- 230000004071 biological effect Effects 0.000 abstract description 4
- 239000013604 expression vector Substances 0.000 abstract description 3
- 230000001605 fetal effect Effects 0.000 abstract description 2
- 210000002257 embryonic structure Anatomy 0.000 abstract 1
- 239000000243 solution Substances 0.000 description 26
- DTQVDTLACAAQTR-UHFFFAOYSA-N Trifluoroacetic acid Chemical compound OC(=O)C(F)(F)F DTQVDTLACAAQTR-UHFFFAOYSA-N 0.000 description 20
- QTBSBXVTEAMEQO-UHFFFAOYSA-N Acetic acid Chemical compound CC(O)=O QTBSBXVTEAMEQO-UHFFFAOYSA-N 0.000 description 19
- 108091026890 Coding region Proteins 0.000 description 15
- 101000741065 Bos taurus Beta-casein Proteins 0.000 description 12
- 241000894007 species Species 0.000 description 12
- 239000000047 product Substances 0.000 description 11
- 230000003115 biocidal effect Effects 0.000 description 10
- 238000007792 addition Methods 0.000 description 9
- 239000012212 insulator Substances 0.000 description 9
- 239000003242 anti bacterial agent Substances 0.000 description 8
- 239000000427 antigen Substances 0.000 description 8
- 108091007433 antigens Proteins 0.000 description 8
- 102000036639 antigens Human genes 0.000 description 8
- BRZYSWJRSDMWLG-CAXSIQPQSA-N geneticin Chemical compound O1C[C@@](O)(C)[C@H](NC)[C@@H](O)[C@H]1O[C@@H]1[C@@H](O)[C@H](O[C@@H]2[C@@H]([C@@H](O)[C@H](O)[C@@H](C(C)O)O2)N)[C@@H](N)C[C@H]1N BRZYSWJRSDMWLG-CAXSIQPQSA-N 0.000 description 8
- 239000013598 vector Substances 0.000 description 8
- XLYOFNOQVPJJNP-UHFFFAOYSA-N water Chemical compound O XLYOFNOQVPJJNP-UHFFFAOYSA-N 0.000 description 8
- 229960000583 acetic acid Drugs 0.000 description 7
- 230000001580 bacterial effect Effects 0.000 description 7
- 244000309466 calf Species 0.000 description 7
- 238000010828 elution Methods 0.000 description 7
- 210000004962 mammalian cell Anatomy 0.000 description 7
- 239000003814 drug Substances 0.000 description 6
- 238000011067 equilibration Methods 0.000 description 6
- 238000000338 in vitro Methods 0.000 description 6
- 239000000203 mixture Substances 0.000 description 6
- 230000001105 regulatory effect Effects 0.000 description 6
- 108020004414 DNA Proteins 0.000 description 5
- 241000588724 Escherichia coli Species 0.000 description 5
- 101001035782 Gallus gallus Hemoglobin subunit beta Proteins 0.000 description 5
- 238000010586 diagram Methods 0.000 description 5
- 230000029087 digestion Effects 0.000 description 5
- 230000004927 fusion Effects 0.000 description 5
- 229940088597 hormone Drugs 0.000 description 5
- 239000005556 hormone Substances 0.000 description 5
- 108020004999 messenger RNA Proteins 0.000 description 5
- 239000011347 resin Substances 0.000 description 5
- 229920005989 resin Polymers 0.000 description 5
- 230000000392 somatic effect Effects 0.000 description 5
- 210000001519 tissue Anatomy 0.000 description 5
- 241000894006 Bacteria Species 0.000 description 4
- 101000946377 Bos taurus Alpha-lactalbumin Proteins 0.000 description 4
- 206010028980 Neoplasm Diseases 0.000 description 4
- 108091034117 Oligonucleotide Proteins 0.000 description 4
- 108010076504 Protein Sorting Signals Proteins 0.000 description 4
- 240000004808 Saccharomyces cerevisiae Species 0.000 description 4
- FAPWRFPIFSIZLT-UHFFFAOYSA-M Sodium chloride Chemical compound [Na+].[Cl-] FAPWRFPIFSIZLT-UHFFFAOYSA-M 0.000 description 4
- JLCPHMBAVCMARE-UHFFFAOYSA-N [3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[3-[[5-(2-amino-6-oxo-1H-purin-9-yl)-3-[[3-[[3-[[3-[[3-[[3-[[5-(2-amino-6-oxo-1H-purin-9-yl)-3-[[5-(2-amino-6-oxo-1H-purin-9-yl)-3-hydroxyoxolan-2-yl]methoxy-hydroxyphosphoryl]oxyoxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxyoxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(5-methyl-2,4-dioxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(6-aminopurin-9-yl)oxolan-2-yl]methoxy-hydroxyphosphoryl]oxy-5-(4-amino-2-oxopyrimidin-1-yl)oxolan-2-yl]methyl [5-(6-aminopurin-9-yl)-2-(hydroxymethyl)oxolan-3-yl] hydrogen phosphate Polymers Cc1cn(C2CC(OP(O)(=O)OCC3OC(CC3OP(O)(=O)OCC3OC(CC3O)n3cnc4c3nc(N)[nH]c4=O)n3cnc4c3nc(N)[nH]c4=O)C(COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3COP(O)(=O)OC3CC(OC3CO)n3cnc4c(N)ncnc34)n3ccc(N)nc3=O)n3cnc4c(N)ncnc34)n3ccc(N)nc3=O)n3ccc(N)nc3=O)n3ccc(N)nc3=O)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)n3cc(C)c(=O)[nH]c3=O)n3cc(C)c(=O)[nH]c3=O)n3ccc(N)nc3=O)n3cc(C)c(=O)[nH]c3=O)n3cnc4c3nc(N)[nH]c4=O)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)n3cnc4c(N)ncnc34)O2)c(=O)[nH]c1=O JLCPHMBAVCMARE-UHFFFAOYSA-N 0.000 description 4
- PBCJIPOGFJYBJE-UHFFFAOYSA-N acetonitrile;hydrate Chemical compound O.CC#N PBCJIPOGFJYBJE-UHFFFAOYSA-N 0.000 description 4
- 230000003321 amplification Effects 0.000 description 4
- 239000000872 buffer Substances 0.000 description 4
- 238000010276 construction Methods 0.000 description 4
- 238000000855 fermentation Methods 0.000 description 4
- 230000004151 fermentation Effects 0.000 description 4
- 239000002502 liposome Substances 0.000 description 4
- 210000005075 mammary gland Anatomy 0.000 description 4
- 238000003199 nucleic acid amplification method Methods 0.000 description 4
- 102000004196 processed proteins & peptides Human genes 0.000 description 4
- 239000008213 purified water Substances 0.000 description 4
- 102000005962 receptors Human genes 0.000 description 4
- 108020003175 receptors Proteins 0.000 description 4
- WEVYAHXRMPXWCK-UHFFFAOYSA-N Acetonitrile Chemical compound CC#N WEVYAHXRMPXWCK-UHFFFAOYSA-N 0.000 description 3
- 102000015081 Blood Coagulation Factors Human genes 0.000 description 3
- 108010039209 Blood Coagulation Factors Proteins 0.000 description 3
- PEDCQBHIVMGVHV-UHFFFAOYSA-N Glycerine Chemical compound OCC(O)CO PEDCQBHIVMGVHV-UHFFFAOYSA-N 0.000 description 3
- 241000235058 Komagataella pastoris Species 0.000 description 3
- OKKJLVBELUTLKV-UHFFFAOYSA-N Methanol Chemical compound OC OKKJLVBELUTLKV-UHFFFAOYSA-N 0.000 description 3
- QAOWNCQODCNURD-UHFFFAOYSA-L Sulfate Chemical compound [O-]S([O-])(=O)=O QAOWNCQODCNURD-UHFFFAOYSA-L 0.000 description 3
- 239000003114 blood coagulation factor Substances 0.000 description 3
- 125000003178 carboxy group Chemical group [H]OC(*)=O 0.000 description 3
- 239000013599 cloning vector Substances 0.000 description 3
- 238000012790 confirmation Methods 0.000 description 3
- 230000000694 effects Effects 0.000 description 3
- 239000003623 enhancer Substances 0.000 description 3
- 230000007159 enucleation Effects 0.000 description 3
- 238000003780 insertion Methods 0.000 description 3
- 230000037431 insertion Effects 0.000 description 3
- 230000031864 metaphase Effects 0.000 description 3
- 229920001184 polypeptide Polymers 0.000 description 3
- 125000002924 primary amino group Chemical group [H]N([H])* 0.000 description 3
- 238000012163 sequencing technique Methods 0.000 description 3
- 238000012360 testing method Methods 0.000 description 3
- 230000005030 transcription termination Effects 0.000 description 3
- 102000007592 Apolipoproteins Human genes 0.000 description 2
- 108010071619 Apolipoproteins Proteins 0.000 description 2
- 102000004127 Cytokines Human genes 0.000 description 2
- 108090000695 Cytokines Proteins 0.000 description 2
- 102000004190 Enzymes Human genes 0.000 description 2
- 108090000790 Enzymes Proteins 0.000 description 2
- LFQSCWFLJHTTHZ-UHFFFAOYSA-N Ethanol Chemical compound CCO LFQSCWFLJHTTHZ-UHFFFAOYSA-N 0.000 description 2
- 239000007995 HEPES buffer Substances 0.000 description 2
- 102000003839 Human Proteins Human genes 0.000 description 2
- 108090000144 Human Proteins Proteins 0.000 description 2
- 102000043276 Oncogene Human genes 0.000 description 2
- 108700020796 Oncogene Proteins 0.000 description 2
- 102000035195 Peptidases Human genes 0.000 description 2
- 108091005804 Peptidases Proteins 0.000 description 2
- 108020004511 Recombinant DNA Proteins 0.000 description 2
- 102000007056 Recombinant Fusion Proteins Human genes 0.000 description 2
- 108010008281 Recombinant Fusion Proteins Proteins 0.000 description 2
- 229920002684 Sepharose Polymers 0.000 description 2
- 230000004913 activation Effects 0.000 description 2
- 125000003275 alpha amino acid group Chemical group 0.000 description 2
- 230000008901 benefit Effects 0.000 description 2
- 239000012620 biological material Substances 0.000 description 2
- 238000004113 cell culture Methods 0.000 description 2
- 210000000349 chromosome Anatomy 0.000 description 2
- 238000009295 crossflow filtration Methods 0.000 description 2
- 230000006378 damage Effects 0.000 description 2
- 230000007423 decrease Effects 0.000 description 2
- 238000012217 deletion Methods 0.000 description 2
- 230000037430 deletion Effects 0.000 description 2
- 238000011161 development Methods 0.000 description 2
- 230000018109 developmental process Effects 0.000 description 2
- 235000015872 dietary supplement Nutrition 0.000 description 2
- 229940079593 drug Drugs 0.000 description 2
- 238000005516 engineering process Methods 0.000 description 2
- 229940088598 enzyme Drugs 0.000 description 2
- 238000001914 filtration Methods 0.000 description 2
- 238000009472 formulation Methods 0.000 description 2
- 230000030279 gene silencing Effects 0.000 description 2
- 239000012362 glacial acetic acid Substances 0.000 description 2
- 239000011521 glass Substances 0.000 description 2
- 239000003102 growth factor Substances 0.000 description 2
- 238000011534 incubation Methods 0.000 description 2
- 208000015181 infectious disease Diseases 0.000 description 2
- 230000002458 infectious effect Effects 0.000 description 2
- 230000009027 insemination Effects 0.000 description 2
- 210000000265 leukocyte Anatomy 0.000 description 2
- 230000035800 maturation Effects 0.000 description 2
- 238000010449 nuclear transplantation Methods 0.000 description 2
- 230000003071 parasitic effect Effects 0.000 description 2
- 244000052769 pathogen Species 0.000 description 2
- 239000013600 plasmid vector Substances 0.000 description 2
- 231100000683 possible toxicity Toxicity 0.000 description 2
- 238000002360 preparation method Methods 0.000 description 2
- 235000019833 protease Nutrition 0.000 description 2
- 108091008146 restriction endonucleases Proteins 0.000 description 2
- 230000028327 secretion Effects 0.000 description 2
- 239000011780 sodium chloride Substances 0.000 description 2
- 239000007858 starting material Substances 0.000 description 2
- 238000006467 substitution reaction Methods 0.000 description 2
- 231100000419 toxicity Toxicity 0.000 description 2
- 230000001988 toxicity Effects 0.000 description 2
- 238000001890 transfection Methods 0.000 description 2
- 238000006276 transfer reaction Methods 0.000 description 2
- 230000003612 virological effect Effects 0.000 description 2
- 210000005253 yeast cell Anatomy 0.000 description 2
- PRDFBSVERLRRMY-UHFFFAOYSA-N 2'-(4-ethoxyphenyl)-5-(4-methylpiperazin-1-yl)-2,5'-bibenzimidazole Chemical compound C1=CC(OCC)=CC=C1C1=NC2=CC=C(C=3NC4=CC(=CC=C4N=3)N3CCN(C)CC3)C=C2N1 PRDFBSVERLRRMY-UHFFFAOYSA-N 0.000 description 1
- JKMHFZQWWAIEOD-UHFFFAOYSA-N 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic acid Chemical compound OCC[NH+]1CCN(CCS([O-])(=O)=O)CC1 JKMHFZQWWAIEOD-UHFFFAOYSA-N 0.000 description 1
- 208000030507 AIDS Diseases 0.000 description 1
- 102100022712 Alpha-1-antitrypsin Human genes 0.000 description 1
- 210000002237 B-cell of pancreatic islet Anatomy 0.000 description 1
- 238000009010 Bradford assay Methods 0.000 description 1
- 101100179596 Caenorhabditis elegans ins-3 gene Proteins 0.000 description 1
- 101100179594 Caenorhabditis elegans ins-4 gene Proteins 0.000 description 1
- 101100072420 Caenorhabditis elegans ins-5 gene Proteins 0.000 description 1
- 101100072419 Caenorhabditis elegans ins-6 gene Proteins 0.000 description 1
- OKTJSMMVPCPJKN-UHFFFAOYSA-N Carbon Chemical compound [C] OKTJSMMVPCPJKN-UHFFFAOYSA-N 0.000 description 1
- 238000001712 DNA sequencing Methods 0.000 description 1
- 102000012673 Follicle Stimulating Hormone Human genes 0.000 description 1
- 108010079345 Follicle Stimulating Hormone Proteins 0.000 description 1
- 108700039691 Genetic Promoter Regions Proteins 0.000 description 1
- 241000282412 Homo Species 0.000 description 1
- 102000008100 Human Serum Albumin Human genes 0.000 description 1
- 108091006905 Human Serum Albumin Proteins 0.000 description 1
- 108010003272 Hyaluronate lyase Proteins 0.000 description 1
- 102000001974 Hyaluronidases Human genes 0.000 description 1
- 101150089655 Ins2 gene Proteins 0.000 description 1
- 108010025815 Kanamycin Kinase Proteins 0.000 description 1
- 241000699670 Mus sp. Species 0.000 description 1
- BVIAOQMSVZHOJM-UHFFFAOYSA-N N(6),N(6)-dimethyladenine Chemical compound CN(C)C1=NC=NC2=C1N=CN2 BVIAOQMSVZHOJM-UHFFFAOYSA-N 0.000 description 1
- 101000947110 Ovis aries Beta-casein Proteins 0.000 description 1
- 241000282376 Panthera tigris Species 0.000 description 1
- 108010001014 Plasminogen Activators Proteins 0.000 description 1
- 102000001938 Plasminogen Activators Human genes 0.000 description 1
- 241000700159 Rattus Species 0.000 description 1
- 206010042573 Superovulation Diseases 0.000 description 1
- AYFVYJQAPQTCCC-UHFFFAOYSA-N Threonine Natural products CC(O)C(N)C(O)=O AYFVYJQAPQTCCC-UHFFFAOYSA-N 0.000 description 1
- 239000004473 Threonine Substances 0.000 description 1
- 108091023040 Transcription factor Proteins 0.000 description 1
- 102000040945 Transcription factor Human genes 0.000 description 1
- 108700019146 Transgenes Proteins 0.000 description 1
- 108010050122 alpha 1-Antitrypsin Proteins 0.000 description 1
- 229940024142 alpha 1-antitrypsin Drugs 0.000 description 1
- 238000004458 analytical method Methods 0.000 description 1
- 235000020244 animal milk Nutrition 0.000 description 1
- 229940088710 antibiotic agent Drugs 0.000 description 1
- 238000013459 approach Methods 0.000 description 1
- 238000003556 assay Methods 0.000 description 1
- 229960000074 biopharmaceutical Drugs 0.000 description 1
- 210000002459 blastocyst Anatomy 0.000 description 1
- 230000029803 blastocyst development Effects 0.000 description 1
- 210000004369 blood Anatomy 0.000 description 1
- 239000008280 blood Substances 0.000 description 1
- 244000309464 bull Species 0.000 description 1
- 239000001506 calcium phosphate Substances 0.000 description 1
- 229910000389 calcium phosphate Inorganic materials 0.000 description 1
- 235000011010 calcium phosphates Nutrition 0.000 description 1
- 229910052799 carbon Inorganic materials 0.000 description 1
- 239000005018 casein Substances 0.000 description 1
- BECPQYXYKAMYBN-UHFFFAOYSA-N casein, tech. Chemical compound NCCCCC(C(O)=O)N=C(O)C(CC(O)=O)N=C(O)C(CCC(O)=N)N=C(O)C(CC(C)C)N=C(O)C(CCC(O)=O)N=C(O)C(CC(O)=O)N=C(O)C(CCC(O)=O)N=C(O)C(C(C)O)N=C(O)C(CCC(O)=N)N=C(O)C(CCC(O)=N)N=C(O)C(CCC(O)=N)N=C(O)C(CCC(O)=O)N=C(O)C(CCC(O)=O)N=C(O)C(COP(O)(O)=O)N=C(O)C(CCC(O)=N)N=C(O)C(N)CC1=CC=CC=C1 BECPQYXYKAMYBN-UHFFFAOYSA-N 0.000 description 1
- 235000021240 caseins Nutrition 0.000 description 1
- 238000005341 cation exchange Methods 0.000 description 1
- -1 cationic lipid Chemical class 0.000 description 1
- 230000022131 cell cycle Effects 0.000 description 1
- 230000005779 cell damage Effects 0.000 description 1
- 208000037887 cell injury Diseases 0.000 description 1
- 230000001413 cellular effect Effects 0.000 description 1
- 210000003022 colostrum Anatomy 0.000 description 1
- 235000021277 colostrum Nutrition 0.000 description 1
- 150000001875 compounds Chemical class 0.000 description 1
- 230000001143 conditioned effect Effects 0.000 description 1
- 239000000356 contaminant Substances 0.000 description 1
- 230000001276 controlling effect Effects 0.000 description 1
- 239000012228 culture supernatant Substances 0.000 description 1
- 210000001771 cumulus cell Anatomy 0.000 description 1
- 230000000120 cytopathologic effect Effects 0.000 description 1
- 230000001627 detrimental effect Effects 0.000 description 1
- 206010012601 diabetes mellitus Diseases 0.000 description 1
- 238000010790 dilution Methods 0.000 description 1
- 239000012895 dilution Substances 0.000 description 1
- 230000002708 enhancing effect Effects 0.000 description 1
- 238000009585 enzyme analysis Methods 0.000 description 1
- 238000002474 experimental method Methods 0.000 description 1
- 238000000605 extraction Methods 0.000 description 1
- 235000013305 food Nutrition 0.000 description 1
- 230000002538 fungal effect Effects 0.000 description 1
- 210000004907 gland Anatomy 0.000 description 1
- 230000006377 glucose transport Effects 0.000 description 1
- 230000013595 glycosylation Effects 0.000 description 1
- 238000006206 glycosylation reaction Methods 0.000 description 1
- 230000036541 health Effects 0.000 description 1
- 208000006454 hepatitis Diseases 0.000 description 1
- 231100000283 hepatitis Toxicity 0.000 description 1
- 230000007366 host health Effects 0.000 description 1
- 229960002773 hyaluronidase Drugs 0.000 description 1
- 230000006698 induction Effects 0.000 description 1
- 230000005764 inhibitory process Effects 0.000 description 1
- 230000010354 integration Effects 0.000 description 1
- 230000003993 interaction Effects 0.000 description 1
- PGHMRUGBZOYCAA-UHFFFAOYSA-N ionomycin Natural products O1C(CC(O)C(C)C(O)C(C)C=CCC(C)CC(C)C(O)=CC(=O)C(C)CC(C)CC(CCC(O)=O)C)CCC1(C)C1OC(C)(C(C)O)CC1 PGHMRUGBZOYCAA-UHFFFAOYSA-N 0.000 description 1
- PGHMRUGBZOYCAA-ADZNBVRBSA-N ionomycin Chemical compound O1[C@H](C[C@H](O)[C@H](C)[C@H](O)[C@H](C)/C=C/C[C@@H](C)C[C@@H](C)C(/O)=C/C(=O)[C@@H](C)C[C@@H](C)C[C@@H](CCC(O)=O)C)CC[C@@]1(C)[C@@H]1O[C@](C)([C@@H](C)O)CC1 PGHMRUGBZOYCAA-ADZNBVRBSA-N 0.000 description 1
- 229960000318 kanamycin Drugs 0.000 description 1
- 229930027917 kanamycin Natural products 0.000 description 1
- SBUJHOSQTJFQJX-NOAMYHISSA-N kanamycin Chemical compound O[C@@H]1[C@@H](O)[C@H](O)[C@@H](CN)O[C@@H]1O[C@H]1[C@H](O)[C@@H](O[C@@H]2[C@@H]([C@@H](N)[C@H](O)[C@@H](CO)O2)O)[C@H](N)C[C@@H]1N SBUJHOSQTJFQJX-NOAMYHISSA-N 0.000 description 1
- 229930182823 kanamycin A Natural products 0.000 description 1
- 238000009630 liquid culture Methods 0.000 description 1
- 239000012528 membrane Substances 0.000 description 1
- 239000000693 micelle Substances 0.000 description 1
- 238000002156 mixing Methods 0.000 description 1
- 238000012986 modification Methods 0.000 description 1
- 230000004048 modification Effects 0.000 description 1
- 108091005573 modified proteins Proteins 0.000 description 1
- 102000035118 modified proteins Human genes 0.000 description 1
- 229930014626 natural product Natural products 0.000 description 1
- 239000013642 negative control Substances 0.000 description 1
- 231100000252 nontoxic Toxicity 0.000 description 1
- 230000003000 nontoxic effect Effects 0.000 description 1
- 210000001672 ovary Anatomy 0.000 description 1
- 230000032696 parturition Effects 0.000 description 1
- 230000001575 pathological effect Effects 0.000 description 1
- 210000005259 peripheral blood Anatomy 0.000 description 1
- 239000011886 peripheral blood Substances 0.000 description 1
- 230000003836 peripheral circulation Effects 0.000 description 1
- 229940127126 plasminogen activator Drugs 0.000 description 1
- 239000011148 porous material Substances 0.000 description 1
- 230000004481 post-translational protein modification Effects 0.000 description 1
- 238000012545 processing Methods 0.000 description 1
- 230000017854 proteolysis Effects 0.000 description 1
- 238000010188 recombinant method Methods 0.000 description 1
- 230000000717 retained effect Effects 0.000 description 1
- BTIHMVBBUGXLCJ-OAHLLOKOSA-N seliciclib Chemical compound C=12N=CN(C(C)C)C2=NC(N[C@@H](CO)CC)=NC=1NCC1=CC=CC=C1 BTIHMVBBUGXLCJ-OAHLLOKOSA-N 0.000 description 1
- 210000000582 semen Anatomy 0.000 description 1
- 238000000926 separation method Methods 0.000 description 1
- 235000020183 skimmed milk Nutrition 0.000 description 1
- 229910001220 stainless steel Inorganic materials 0.000 description 1
- 238000003860 storage Methods 0.000 description 1
- 239000006228 supernatant Substances 0.000 description 1
- 208000024891 symptom Diseases 0.000 description 1
- 230000009885 systemic effect Effects 0.000 description 1
- 230000002381 testicular Effects 0.000 description 1
- 230000001225 therapeutic effect Effects 0.000 description 1
- 125000000341 threoninyl group Chemical group [H]OC([H])(C([H])([H])[H])C([H])(N([H])[H])C(*)=O 0.000 description 1
- QORWJWZARLRLPR-UHFFFAOYSA-H tricalcium bis(phosphate) Chemical compound [Ca+2].[Ca+2].[Ca+2].[O-]P([O-])([O-])=O.[O-]P([O-])([O-])=O QORWJWZARLRLPR-UHFFFAOYSA-H 0.000 description 1
- 239000002753 trypsin inhibitor Substances 0.000 description 1
- 238000002604 ultrasonography Methods 0.000 description 1
- 238000011144 upstream manufacturing Methods 0.000 description 1
- 238000003260 vortexing Methods 0.000 description 1
- 238000001262 western blot Methods 0.000 description 1
Images

Classifications
-
- A—HUMAN NECESSITIES
- A01—AGRICULTURE; FORESTRY; ANIMAL HUSBANDRY; HUNTING; TRAPPING; FISHING
- A01K—ANIMAL HUSBANDRY; AVICULTURE; APICULTURE; PISCICULTURE; FISHING; REARING OR BREEDING ANIMALS, NOT OTHERWISE PROVIDED FOR; NEW BREEDS OF ANIMALS
- A01K67/00—Rearing or breeding animals, not otherwise provided for; New or modified breeds of animals
- A01K67/027—New or modified breeds of vertebrates
- A01K67/0275—Genetically modified vertebrates, e.g. transgenic
- A01K67/0278—Knock-in vertebrates, e.g. humanised vertebrates
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/575—Hormones
- C07K14/62—Insulins
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/85—Vectors or expression systems specially adapted for eukaryotic hosts for animal cells
- C12N15/8509—Vectors or expression systems specially adapted for eukaryotic hosts for animal cells for producing genetically modified animals, e.g. transgenic
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/87—Introduction of foreign genetic material using processes not otherwise provided for, e.g. co-transformation
- C12N15/873—Techniques for producing new embryos, e.g. nuclear transfer, manipulation of totipotent cells or production of chimeric embryos
- C12N15/877—Techniques for producing new mammalian cloned embryos
- C12N15/8771—Bovine embryos
-
- A—HUMAN NECESSITIES
- A01—AGRICULTURE; FORESTRY; ANIMAL HUSBANDRY; HUNTING; TRAPPING; FISHING
- A01K—ANIMAL HUSBANDRY; AVICULTURE; APICULTURE; PISCICULTURE; FISHING; REARING OR BREEDING ANIMALS, NOT OTHERWISE PROVIDED FOR; NEW BREEDS OF ANIMALS
- A01K2207/00—Modified animals
- A01K2207/15—Humanized animals
-
- A—HUMAN NECESSITIES
- A01—AGRICULTURE; FORESTRY; ANIMAL HUSBANDRY; HUNTING; TRAPPING; FISHING
- A01K—ANIMAL HUSBANDRY; AVICULTURE; APICULTURE; PISCICULTURE; FISHING; REARING OR BREEDING ANIMALS, NOT OTHERWISE PROVIDED FOR; NEW BREEDS OF ANIMALS
- A01K2217/00—Genetically modified animals
-
- A—HUMAN NECESSITIES
- A01—AGRICULTURE; FORESTRY; ANIMAL HUSBANDRY; HUNTING; TRAPPING; FISHING
- A01K—ANIMAL HUSBANDRY; AVICULTURE; APICULTURE; PISCICULTURE; FISHING; REARING OR BREEDING ANIMALS, NOT OTHERWISE PROVIDED FOR; NEW BREEDS OF ANIMALS
- A01K2227/00—Animals characterised by species
- A01K2227/10—Mammal
- A01K2227/101—Bovine
-
- A—HUMAN NECESSITIES
- A01—AGRICULTURE; FORESTRY; ANIMAL HUSBANDRY; HUNTING; TRAPPING; FISHING
- A01K—ANIMAL HUSBANDRY; AVICULTURE; APICULTURE; PISCICULTURE; FISHING; REARING OR BREEDING ANIMALS, NOT OTHERWISE PROVIDED FOR; NEW BREEDS OF ANIMALS
- A01K2267/00—Animals characterised by purpose
- A01K2267/01—Animal expressing industrially exogenous proteins
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N2830/00—Vector systems having a special element relevant for transcription
- C12N2830/008—Vector systems having a special element relevant for transcription cell type or tissue specific enhancer/promoter combination
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Genetics & Genomics (AREA)
- Engineering & Computer Science (AREA)
- Chemical & Material Sciences (AREA)
- Organic Chemistry (AREA)
- Zoology (AREA)
- Biotechnology (AREA)
- Biomedical Technology (AREA)
- General Health & Medical Sciences (AREA)
- General Engineering & Computer Science (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Wood Science & Technology (AREA)
- Biophysics (AREA)
- Biochemistry (AREA)
- Molecular Biology (AREA)
- Veterinary Medicine (AREA)
- Plant Pathology (AREA)
- Developmental Biology & Embryology (AREA)
- Environmental Sciences (AREA)
- Microbiology (AREA)
- Physics & Mathematics (AREA)
- Toxicology (AREA)
- Endocrinology (AREA)
- Gastroenterology & Hepatology (AREA)
- Diabetes (AREA)
- Animal Behavior & Ethology (AREA)
- Animal Husbandry (AREA)
- Biodiversity & Conservation Biology (AREA)
- Medicinal Chemistry (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Peptides Or Proteins (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
Abstract
本発明は、哺乳動物に対して毒性であり得る目的のタンパク質の産生に有用な、非ヒトトランスジェニック哺乳動物に関連する。この哺乳動物は、目的のタンパク質、好ましくは組換えヒトインスリンの不活性形態の乳中における産生に関してトランスジェニックであるという事実によって特徴付けられる。組換えヒトインスリンは哺乳動物においてある程度の生物学的活性を有し、そして哺乳動物に対して毒性であり得るので、この分子をトランスジェニック哺乳動物において産生することは不可能である。従って、本発明は、発現ベクターにおいてβカゼインプロモーターのコントロール下にある、修飾ヒトインスリン前駆体をコードする配列を含む遺伝的構築物をクローニングすることを含む。また、発現プラスミドを、線維芽細胞のような、胎仔ウシ体細胞にトランスフェクトすること、および核移植によってウシ卵母細胞を除核してトランスジェニック胚を産生することを含む。
Description
ヒト医療に関わるタンパク質因子およびホルモンは、過去数十年来、製薬産業によって、抽出または組換え技術によって産生されてきた。望ましい遺伝子を含む遺伝構築物の発現を、細菌、酵母、または哺乳動物細胞系統において成功裏に達成した。しかし、適当な糖鎖付加パターンを必要とするもののような、複雑なタンパク質を得るための哺乳動物細胞培養の使用は、高コストの手順を含む。
商業的に重要な生物学的材料の産生のために、過去数十年にますます組換えDNA技術が使用されてきた。そのために、様々な医学的に重要なヒトタンパク質をコードするDNA配列がクローニングされた。これらは、インスリン、プラスミノーゲン活性化因子、アルファ1−アンチトリプシン、および凝固因子VIIIおよびIXを含む。現在、新興の組換えDNA技術によっても、これらのタンパク質は通常、血液および組織から精製され、それはAIDSおよび肝炎を引き起こすもののような感染性の病原菌を伝染させるリスクを有し得る、高価なおよび時間のかかる過程である。
望ましい医学的に重要なタンパク質を産生するための、細菌におけるDNA配列の発現は魅力的な提案のようであるが、実際は、多くの場合、細菌細胞においては、外来タンパク質は不安定であり、そして正しくプロセシングされないので、細菌は宿主として不十分であることが判明する。
この問題を認識して、哺乳動物組織培養物におけるクローニングされた遺伝子の発現が試みられ、そしてある例では実現性のある戦略であることが判明した。しかし、哺乳動物細胞のバッチ発酵は、高価であり、そして技術的に大変な過程である。
従って、正しく修飾された真核細胞ポリペプチドのような、生物学的物質の産生のための、高収率、低コストの過程に対する必要性が存在する。ヒトに対して感染性である病原体の欠如は、そのような過程における利点である。
乳中に大量のヒトタンパク質を得る目的で、望ましい遺伝子の、ウシのようなトランスジェニック哺乳動物を得る可能性は、業界にとって大きな関心であった。文献においていくつかのグループが、トランスジェニックウシまたはヤギにおける、ヒト血清アルブミン、アルファアンチトリプシン、およびいくつかの他の例の産生における成功を報告している。
以前にマウスまたはラットにおいて、多くの実験が行われ、そして授乳中のメスにおいて乳腺転写因子にのみ反応する、βカゼインまたはラクトアルブミンプロモーターが採用されたので、導入遺伝子の発現は常に乳腺に限られることが好ましかった。
乳中のみにおける異種性タンパク質の発現は、宿主哺乳動物の健康に対する望ましくない影響を避け、そして精製のための容易な方法を提供することを意味する。
細菌または細胞培養物中の異種性タンパク質の発現は、宿主哺乳動物に対する組換えタンパク質の毒性効果によって阻害または妨害され得る。あるタンパク質が、天然には無毒性のものでさえ、宿主にとって有害であり、死さえも引き起こすために、特定のシステムにおいて発現できない多くの例を、文献中に見出し得る。死因は、細胞内の高濃度のタンパク質、高濃度の分泌されたタンパク質、または外来性の宿主において細胞変性活動を引き起こす、タンパク質およびいくつかの細胞成分との特異的相互作用であり得る。
これらの欠点を克服して、毒性タンパク質の異種性遺伝子発現を達成するために、融合タンパク質を用いること、もとのタンパク質配列を修飾すること、タンパク質の異なるポリペプチドを別々に発現すること等を含む、いくつかの方法が開発された(非特許文献1を参照のこと)。
トランスジェニックウシにおいて組換えタンパク質を発現する場合、同様の効果を得ることができる。トランスジェニック哺乳動物の産生において、細胞をトランスフェクトして、目的の異種性遺伝子を有するトランスジェニッククローンを得て、そして次いでそれを使用してトランスジェニック哺乳動物を産生する。この過程は一般的に、目的の配列の宿主ゲノムへの挿入を引き起こし、それは次に、もし特異的なプロモーターを使用したなら標的組織または腺における、またはもし一般的なプロモーターを採用したなら全身性の、異種性タンパク質の発現を引き起こす。タンパク質発現のレベルは、挿入が起こったゲノム内の位置を含む、様々な因子に依存する。
遺伝子発現が、組織特異的プロモーターによって誘導される場合でも、外来性タンパク質の末梢循環システムへの漏出が、いくつかのタンパク質で多くの異なる哺乳動物種において観察された(Life Sciences、2006年1月 25;78(9):1003−9、Epub 2005年9月15日;ならびにJournal of Biotechnology、2006年7月 13;124(2):469−72、Epub 2006年5月23日を参照のこと)。この漏出は、発現のレベル、漏出のレベル、異種性タンパク質の性質、種間の関係(宿主および外来性タンパク質)および異種性タンパク質の宿主受容体と相互作用する能力に依存して、関連する生物学的結果を有し得る。宿主相同性タンパク質との類似性を考慮して、これら遺伝子導入で発現したタンパク質のいくつかは、外来性の宿主においてその天然の生物学的活性を発揮し得、そしてその哺乳動物の死を引き起こし得る病理学的効果を引き起こし得る(非特許文献2を参照のこと)。それに加えて、その異種性タンパク質は、対応する相同性宿主受容体との相互作用によって、哺乳動物の健康に影響を与えないが、いくつかの異種性タンパク質が細菌において発現した場合に起こる、毒性の非特異的効果によって影響を与える可能性がある。
本発明は、哺乳動物に対して毒性効果を有する、タンパク質のトランスジェニック哺乳動物における発現に現在関連する欠点に対して、革命的な解決策を提供する。
Protein Expression and Purification、2001年8月;22(3):422−9
Endocrinology 1997年7月;138(7):2849−55
本発明は、哺乳動物に対して毒性であり得る、目的のタンパク質の産生に有用な、非ヒト哺乳動物に関連する。この哺乳動物は、目的のタンパク質の不活性形態の、その乳における産生に関してトランスジェニックであるという事実によって特徴付けられる。目的のタンパク質の不活性形態は、目的のタンパク質を発現する非ヒトトランスジェニック哺乳動物に対して毒性ではない、目的のタンパク質の形式である。本明細書中で使用される場合、毒性は、重篤な害または死亡を引き起こすことを意味する。目的のタンパク質の不活性形態は、目的のタンパク質の不活性形態を発現する非ヒトトランスジェニック哺乳動物において、いくらかの生物学的活性を有し得る;しかし、目的のタンパク質の不活性形態は、その非ヒトトランスジェニック哺乳動物に対して毒性ではない(すなわち、その哺乳動物は死なない、および重篤な害をこうむらない)。そのタンパク質の不活性形態は、インビトロで活性化され得る。あるいは非天然種のタンパク質である、この不活性タンパク質は、組換え修飾ヒトインスリン前駆体であり得るが、それに限らない。目的のタンパク質は、組換えヒトインスリンであり得るが、それに限らない。その非ヒトトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。
本発明はさらに、哺乳動物の乳腺細胞(mammary cell)において目的のタンパク質の不活性形態の発現を提供するプラスミドに関連し、ここでその発現は、βカゼインプロモーターによって調節される。
本発明はさらに、非ヒトトランスジェニック哺乳動物に毒性であり得る目的のタンパク質の、非ヒトトランスジェニック哺乳動物を採用する産生の方法に関連する。そのタンパク質の潜在的な毒性を、そのタンパク質を不活性タンパク質として発現することによって回避する。あるいはそのタンパク質の非天然種である、この不活性タンパク質は、組換え修飾ヒトインスリン前駆体であり得るが、それに限らない。目的のタンパク質は、組換えヒトインスリンであり得るが、それに限らない。その非ヒトトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。
本発明はまた、その乳中に組換え修飾インスリン前駆体を産生する、非ヒトトランスジェニック哺乳動物を作製すること、その非ヒトトランスジェニック哺乳動物から乳を得る工程、その乳から前駆体を精製すること、組換えインスリンを得るために精製した前駆体に酵素的切断およびペプチド転移を行うこと、および組換えインスリンを精製することを含む、組換えインスリンを産生する方法に関連する。その組換えインスリンは、組換えヒトインスリンであり得るが、それに限らない。そのトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。
本発明は、哺乳動物に対して毒性であり得る、目的のタンパク質の産生のために有用な、非ヒト哺乳動物に関連する。その哺乳動物は、その乳における目的のタンパク質の不活性形態の産生に関してトランスジェニックであるという事実によって特徴付けられる。不活性タンパク質という用語は、目的のタンパク質を発現する、非ヒトトランスジェニック哺乳動物に対して毒性でない、目的のタンパク質の形式を指す。本発明のさらなる実施態様において、不活性タンパク質という用語は、さらなる翻訳後修飾なしに、生物学的活性を欠くタンパク質を指す。不活性タンパク質の例は、前駆体タンパク質(すなわちプロペプチド)、さらなるプロセシングなしにそのタンパク質を生物学的に不活性にする修飾(すなわち天然タンパク質と比較した場合のアミノ酸置換、追加、または欠失)を含むタンパク質、または修飾前駆体タンパク質(すなわち天然プロペプチドと比較した場合のアミノ酸置換、追加、または欠失を含むプロペプチド)を含む。言い換えると、目的のタンパク質の潜在的な毒性を、タンパク質を、目的のタンパク質を発現する非ヒトトランスジェニック哺乳動物を殺さない不活性タンパク質として発現することによって回避する。あるいはそのタンパク質の非天然種である、この不活性タンパク質は、以下のものの前駆体、修飾前駆体、または修飾形態であり得るが、それに限らない:抗体、ホルモン、増殖因子、酵素、凝固因子、アポリポタンパク質、受容体、薬剤、医薬品、生物製剤(bioceuticals)、栄養補助食品、癌遺伝子、腫瘍抗原、腫瘍抑制因子、サイトカイン、ウイルス抗原、寄生虫抗原、および細菌抗原。好ましくは、その不活性タンパク質は、その修飾インスリン前駆体を発現する非ヒトトランスジェニック哺乳動物において低血糖を引き起こさない、組換え修飾インスリン前駆体である。より好ましくは、その不活性タンパク質は、組換え修飾哺乳動物インスリン前駆体、および最も好ましくは、組換え修飾ヒトインスリン前駆体である。目的のタンパク質は、組換えインスリン、より好ましくは組換え哺乳動物インスリン、および最も好ましくは組換えヒトインスリンであり得るが、それに限らない。この非ヒト哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。他の種のトランスジェニック哺乳動物は、ブタ種、ヒツジ種、ヤギ種、またはげっ歯類種であり得るが、それに限らない。
インスリンは、体内においてグルコースの輸送、利用、および貯蔵のコントロールを司る主なホルモンである。膵臓のβ細胞は、プロインスリンとして知られるインスリンの1本鎖前駆体を分泌する。プロインスリンは、3つのドメイン:アミノ末端B鎖、カルボキシル末端A鎖、およびCペプチドとして知られる、中央の連結ペプチドから成る。プロインスリンのタンパク質分解が、連結ペプチド(Cペプチド)と共にプロインスリン鎖におけるある塩基性アミノ酸の除去を引き起こして、生物学的に活性なポリペプチド、インスリンを生じる。
実施態様において、修飾タンパク質は、タンパク質の天然に存在する形態ではない、タンパク質の形式である。実施態様において、その修飾インスリン前駆体は、アミノ末端B鎖およびカルボキシル末端A鎖を含む。しかし、その修飾インスリン前駆体は修飾Cペプチドを含む。その修飾インスリン前駆体において、天然に存在するプロインスリンにおいて見出される、連結Cペプチドをコードするアミノ酸が、天然に存在するプロインスリンにおいて見出されないアミノ酸によって置換される。実施態様において、その修飾Cペプチドは、以下の3アミノ酸:Ala−Ala−Lysを含む。さらに、その修飾インスリン前駆体は、修飾B鎖を含み得る。実施態様において、その修飾B鎖は、天然に存在するB鎖のC末端アミノ酸以外を全て含む。
さらなる実施態様において、その修飾インスリン前駆体は、約6kDの分子量を有する、53アミノ酸から成る修飾ヒトインスリン前駆体である。その修飾ヒトインスリン前駆体は、天然に存在するB鎖のアミノ酸1−29を有する修飾B鎖、および3アミノ酸、Ala−Ala−Lysを有する修飾Cペプチドを含む。糖尿病の治療に必須であり、そしてその適用がよく確立されている、ヒトインスリンを得るために、その修飾ヒトインスリン前駆体に、酵素的切断およびペプチド転移を行い得る。
本発明はまた、その乳における組換え修飾ヒトインスリン前駆体の産生に関してトランスジェニックであり、その組換え修飾ヒトインスリン前駆体は、その哺乳動物を生育不能にしないという事実によって特徴付けられる、非ヒト哺乳動物に関連する。
本発明はさらに、組換えヒトインスリンの産生に有用な、ウシ種のトランスジェニック哺乳動物に関連する。ヒトインスリンは、ウシにおいて活性であることが公知である。トランスジェニックタンパク質は、血流に漏出し得るので、ヒトインスリンをその成熟した形式で発現するウシは、低血糖に関連する症状を示すことが予測され得る。従って、組換えヒトインスリンを発現するトランスジェニックウシは、成育不能であり得る。しかし、本発明はこの限界を克服し、そしてトランスジェニック哺乳動物に対して毒性であり得るタンパク質の、トランスジェニック哺乳動物における発現を可能にする。本発明は、目的のタンパク質の不活性形態を発現する。その不活性タンパク質を、トランスジェニック哺乳動物の乳から精製し、そしてインビトロで成熟(すなわち活性)形式のタンパク質に変換する。確実に、発現した場合にはその哺乳動物にとって有害な治療的タンパク質(例えばヒトインスリン)を産生する手段として有用な、ウシのような哺乳動物は、予期しない、そして革新的な寄与を構成する。
本発明はさらに、その乳中に組換え修飾インスリン前駆体を産生する、非ヒトトランスジェニック哺乳動物に関連し、そのゲノムは組み込まれたプラスミドを含み、そのプラスミドは、プロモーターと作動可能に連結した、修飾インスリン前駆体をコードする核酸配列を含み、このプロモーターは、その哺乳動物の乳腺細胞においてその配列の発現を誘導する。その非ヒト哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。トランスジェニック哺乳動物の他の種は、ブタ種、ヒツジ種、ヤギ種、またはげっ歯類種であり得るが、それに限らない。その修飾インスリン前駆体は、修飾哺乳動物インスリン前駆体、より好ましくは修飾ヒトインスリン前駆体、修飾ウシインスリン前駆体、修飾ブタインスリン前駆体、修飾ヒツジインスリン前駆体、修飾ヤギインスリン前駆体、修飾げっ歯類インスリン前駆体、および最も好ましくは修飾ヒトインスリン前駆体であり得る。そのプロモーターは、βカゼインプロモーターであり得る。適当なβカゼインプロモーターは、ウシβカゼインプロモーター、またはヤギβカゼインプロモーターを含むがそれに限らない。他のβカゼインプロモーターは、ブタβカゼインプロモーター、ヒツジβカゼインプロモーター、またはげっ歯類βカゼインプロモーターを含むがそれに限らない。その組み込まれたプラスミドはまた、ネオマイシン耐性遺伝子のような、抗生物質耐性遺伝子を含み得る。さらに、その組み込まれたプラスミドは、pβmhuIPであり得る。その組み込まれたプラスミドはまた、pNJK IPまたはpβKLE IPであり得る。
本発明はさらに、上記で記載した組み込まれたプラスミドが、その哺乳動物の体細胞および生殖細胞の両方で見出される、非ヒトトランスジェニック哺乳動物に関連する。
本発明はさらに、その乳中に組換え修飾ヒトインスリン前駆体を産生する、ウシ種の非ヒトトランスジェニック哺乳動物に関連し、そのゲノムは組み込まれたプラスミドを含み、そのプラスミドは修飾ヒトインスリン前駆体をコードする核酸配列、およびその哺乳動物の乳腺細胞においてその配列の発現を誘導するβカゼインプロモーターを含む。適当なβカゼインプロモーターは、ウシβカゼインプロモーター、またはヤギβカゼインプロモーターを含むがそれに限らない。他のβカゼインプロモーターは、ブタβカゼインプロモーター、ヒツジβカゼインプロモーター、またはげっ歯類βカゼインプロモーターであり得るが、それに限らない。その組み込まれたプラスミドは、ネオマイシン耐性遺伝子のような、抗生物質耐性遺伝子を含み得る。さらに、その組み込まれたプラスミドは、pβmhuIPであり得る。その組み込まれたプラスミドはまた、pNJK IPまたはpβKLE IPであり得る。
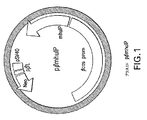
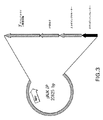
本発明はまた、βカゼインプロモーターに作動可能に連結した修飾インスリン前駆体をコードする核酸配列、および抗生物質耐性細胞の選択を可能にする抗生物質耐性遺伝子を含むプラスミドに関連する。適当なβカゼインプロモーターは、ウシβカゼインプロモーターまたはヤギβカゼインプロモーターを含むがそれに限らない。他のβカゼインプロモーターは、ブタβカゼインプロモーター、ヒツジβカゼインプロモーター、またはげっ歯類βカゼインプロモーターを含むが、それに限らない。実施態様において、その抗生物質耐性遺伝子は、ジェネティシン耐性細胞の選択を可能にする、ネオマイシン耐性遺伝子である。そのようなプラスミドの例は、図1に示すようなpβmhuIPである。そのようなプラスミドのさらなる例は、図3に示すようなpNJK IP、および図4に示すようなpβKLE IPである。
本発明はさらに、修飾インスリン前駆体をコードする核酸配列を含むプラスミドに関連し、ここでその修飾インスリン前駆体は、修飾哺乳動物インスリン前駆体である。その修飾哺乳動物インスリン前駆体は、修飾ヒトインスリン前駆体、修飾ウシインスリン前駆体、修飾ブタインスリン前駆体、修飾ヒツジインスリン前駆体、修飾ヤギインスリン前駆体、または修飾げっ歯類インスリン前駆体であり得る。実施態様において、その修飾哺乳動物インスリン前駆体は、修飾ヒトインスリン前駆体である。
本発明はさらに、修飾インスリン前駆体を発現する非ヒトトランスジェニック哺乳動物において低血糖を引き起こさない、修飾インスリン前駆体をコードする核酸配列を含むプラスミドに関連する。
本発明はさらに、修飾Cペプチドを含む修飾ヒトインスリン前駆体をコードする核酸配列を含むプラスミドに関連する。その修飾ヒトインスリン前駆体において、天然に存在するヒトプロインスリンにおいて見出される連結Cペプチドをコードするアミノ酸が、天然に存在するプロインスリンにおいて見出されないアミノ酸によって置換される。実施態様において、その修飾Cペプチドは、以下の3アミノ酸:Ala−Ala−Lysを含む。さらに、その修飾ヒトインスリン前駆体は、修飾B鎖を含み得る。実施態様において、その修飾B鎖は、天然に存在するB鎖のアミノ酸1−29を含む。
本発明はさらに、修飾インスリン前駆体をコードする核酸配列を含むプラスミドに関連し、それはさらに1つまたはそれ以上の、プラスミドの安定性を増強する、プラスミドから転写されたmRNAの安定性を増強する、修飾インスリン前駆体の分解を低下させる、および/または修飾インスリン前駆体の発現を増加させる、さらなる遺伝因子を含む。適当な遺伝因子は、調節性エレメント(例えばプロモーター、エンハンサー、インスレーター、または転写終結点)、インスリンではない遺伝子のコーディング配列の断片、またはインスリンではない遺伝子のコーディング配列を含むがそれに限らない。実施態様において、その遺伝因子は、ニワトリβグロビンインスレーターのコーディング配列の断片である。そのようなプラスミドの例は、図3に示すようなpNJK IPである。他の実施態様において、その遺伝因子は、ウシαラクトアルブミン遺伝子のコーディング配列の断片である。そのようなプラスミドの例は、図4に示すようなpβKLE IPである。
プラスミドpβmhuIP、pNJK IPおよびpβKLE IPは、ブダペスト条約の合意のもとで寄託された。寄託場所の名前および住所は、DSMZ−Deutsche Sammlung von Mikroorganismen und Zellkulturen GmbH、Inhoffenstr.7B、D−38124 Braunschweig、Germanyである。pβmhuIPは、2008年4月4日にDSMZに寄託され、そしてDSMZ寄託番号DSM21359を与えられた。pNJK IPは2008年4月4日にDSMZに寄託され、そしてDSMZ寄託番号DSM21360を与えられた。pβKLE IPは、2008年6月12日にDSMZに寄託された。
本発明はさらに、上記で記載した遺伝的構築物をトランスフェクトする方法に関連する。実施態様において、上記で記載した遺伝的構築物を、その遺伝的構築物をリポソームに挿入し、そしてそのリポソームを哺乳動物細胞と接触させることによって、哺乳動物細胞にトランスフェクトする。そのリポソームは、陽イオン性脂質であり得る。
適当な培地におけるネオマイシン耐性細胞の選択の方法は、当業者に公知である。細胞の損傷を避けるために、そのような細胞を注意深く取らなければならない。
本発明はまた、G0期、または細胞周期の異なる時期で停止した細胞の、除核した哺乳動物卵母細胞、最も好ましくはウシ卵母細胞への核移植の方法に関連する。
本発明は、哺乳動物のホルモン刺激した子宮、最も好ましくはウシの子宮への、トランスジェニック胎芽移植の方法に関連する。
本発明はさらに、不活性な目的のタンパク質をコードする核酸配列を、プラスミドにクローニングし、それによってその配列を、乳腺細胞におけるその配列の発現を誘導するプロモーターに作動可能に連結し、発現プラスミドを得る工程;プラスミドが細胞のゲノムに組み込まれるように、体細胞をその発現プラスミドでトランスフェクトして、トランスジェニック体細胞を得る工程;成熟卵母細胞を除核して、除核した卵母細胞を得る工程;1つのトランスジェニック体細胞を、除核した卵母細胞と融合して、単一細胞の胚を得る工程;その胚を受容性哺乳動物の子宮に移植する工程;ならびにトランスジェニック哺乳動物の出産まで妊娠をモニターする工程を含む、非ヒトトランスジェニック哺乳動物を作製する方法に関連する。その目的の不活性なタンパク質は、哺乳動物において低血糖を引き起こさない修飾インスリン前駆体であり得る。その修飾インスリン前駆体は、好ましくは修飾哺乳動物インスリン前駆体、より好ましくは修飾ヒトインスリン前駆体、修飾ウシインスリン前駆体、修飾ブタインスリン前駆体、修飾ヒツジインスリン前駆体、修飾ヤギインスリン前駆体、または修飾げっ歯類インスリン前駆体、そして最も好ましくは修飾ヒトインスリン前駆体である。その非ヒトトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。トランスジェニック哺乳動物の他の種は、ブタ種、ヒツジ種、ヤギ種、またはげっ歯類種であり得るが、それに限らない。そのプロモーターは、βカゼインプロモーターであり得る。適当なβカゼインプロモーターは、ウシβカゼインプロモーターまたはヤギβカゼインプロモーターを含むがそれに限らない。他のβカゼインプロモーターは、ブタβカゼインプロモーター、ヒツジβカゼインプロモーター、またはげっ歯類βカゼインプロモーターを含むが、それに限らない。そのプラスミドはまた、ネオマイシン耐性遺伝子のような抗生物質耐性遺伝子を含み得る。さらに、その発現プラスミドは、pβmhuIPであり得る。その発現プラスミドはまた、pNJK IPまたはpβKLE IPであり得る。
本発明はさらに、修飾Cペプチドを含む修飾インスリン前駆体をコードする核酸配列を含む、目的のタンパク質の不活性形態を発現する非ヒトトランスジェニック哺乳動物を作製する方法に関連する。その修飾インスリン前駆体において、天然に存在するプロインスリンにおいて見出される連結Cペプチドをコードするアミノ酸が、天然に存在するプロインスリンにおいて見出されないアミノ酸によって置換される。実施態様において、その修飾Cペプチドは、以下の3アミノ酸:Ala−Ala−Lysを含む。さらに、その修飾インスリン前駆体は、修飾B鎖を含み得る。実施態様において、その修飾B鎖は、天然に存在するB鎖のC末端アミノ酸以外を全て含む。
本発明はさらに、目的のタンパク質の不活性形態を発現する、非ヒトトランスジェニック哺乳動物を作製する方法に関連し、ここで体細胞は線維芽細胞であり得る。さらに、そのトランスジェニック体細胞を、その乳中に目的のタンパク質の不活性形態を発現する、メストランスジェニック動物から単離し得る。そのトランスジェニック体細胞は、線維芽細胞であり得る。
本発明はさらに、目的のタンパク質の不活性形態を発現する、非ヒトトランスジェニック哺乳動物を作製する方法に関連し、ここでその目的のタンパク質の不活性形態をコードする核酸配列は、その哺乳動物の体細胞および生殖細胞の両方で見出される。
本発明はさらに、その乳中に組換え修飾ヒトインスリン前駆体を産生する、ウシ種の非ヒトトランスジェニック哺乳動物を作製する方法に関連し、そのゲノムは組み込まれたプラスミドを含み、そのプラスミドは修飾ヒトインスリン前駆体をコードする核酸配列およびその哺乳動物の乳腺細胞におけるその配列の発現を誘導するβカゼインプロモーターを含む。適当なβカゼインプロモーターを上記で記載する。組み込まれたプラスミドは、ネオマイシン耐性遺伝子のような、抗生物質耐性遺伝子を含み得る。さらにその組み込まれたプラスミドは、pβmhuIPであり得る。その組み込まれたプラスミドはまた、pNJK IPまたはpβKLE IPであり得る。
本発明はさらに、その乳中に目的のタンパク質の不活性形態を産生する非ヒトトランスジェニック哺乳動物を作製する工程;その非ヒトトランスジェニック哺乳動物から乳を得る工程;乳からその不活性タンパク質を精製する工程;インビトロで目的のタンパク質の不活性形態を変換する工程;ならびに目的のタンパク質を精製する工程を含む、目的のタンパク質の不活性形態を産生する方法に関連し、ここで目的のタンパク質は非ヒトトランスジェニック哺乳動物に対して毒性であり得る。その不活性タンパク質は、以下のものの前駆体、修飾前駆体または修飾形態であり得るが、それに限らない:抗体、ホルモン、増殖因子、酵素、凝固因子、アポリポタンパク質、受容体、薬剤、医薬品、生物製剤、栄養補助食品、癌遺伝子、腫瘍抗原、腫瘍抑制因子、サイトカイン、ウイルス抗原、寄生虫抗原、および細菌抗原。好ましくはその不活性タンパク質は、組換え修飾インスリン前駆体、より好ましくは組換え修飾哺乳動物インスリン前駆体、および最も好ましくは組換え修飾ヒトインスリン前駆体であり得る。その非ヒトトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。トランスジェニック哺乳動物の他の種は、ブタ種、ヒツジ種、ヤギ種、またはげっ歯類種であり得るが、それに限らない。
本発明はまた、目的のタンパク質の不活性形態をコードする核酸配列をプラスミドにクローニングすることによって、その配列を、その配列の乳腺細胞での発現を誘導するプロモーターに作動可能に連結し、発現プラスミドを得る工程;そのプラスミドが体細胞のゲノムに組み込まれるように、そのプラスミドで体細胞、任意で線維芽細胞をトランスフェクトし、トランスジェニック体細胞を得る工程;成熟卵母細胞を除核し、除核した卵母細胞を得る工程;そのトランスジェニック体細胞のうちの1つをその除核した卵母細胞と融合して、単一細胞の胚を得る工程;その胚を受容性の哺乳動物の子宮に移植する工程;ならびにそのトランスジェニック哺乳動物の出産まで妊娠をモニターする工程を含む過程によって作製された、非ヒトトランスジェニック哺乳動物において、目的のタンパク質の不活性形態を産生する方法に関連する。その目的の不活性なタンパク質は、哺乳動物において低血糖を引き起こさない修飾インスリン前駆体であり得る。その修飾インスリン前駆体は、好ましくは修飾哺乳動物インスリン前駆体、より好ましくは修飾ヒトインスリン前駆体、修飾ウシインスリン前駆体、修飾ブタインスリン前駆体、修飾ヒツジインスリン前駆体、修飾ヤギインスリン前駆体、または修飾げっ歯類インスリン前駆体、そして最も好ましくは修飾ヒトインスリン前駆体である。その非ヒトトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。トランスジェニック哺乳動物の他の種は、ブタ種、ヒツジ種、ヤギ種、またはげっ歯類種であり得るが、それに限らない。そのプロモーターは、βカゼインプロモーターであり得る。適当なβカゼインプロモーターは、上記で記載する。そのプラスミドはまた、ネオマイシン耐性遺伝子のような抗生物質耐性遺伝子を含み得る。さらに、その発現プラスミドは、pβmhuIPであり得る。そのプラスミドはまた、プラスミドの安定性を増強する、プラスミドから転写されたmRNAの安定性を増強する、修飾インスリン前駆体の分解を減少させる、および/または修飾インスリン前駆体の発現を増加させる、1つまたはそれ以上のさらなる遺伝因子を含み得る。適当な遺伝因子は、調節性エレメント(例えばプロモーター、エンハンサー、インスレーター、または転写終結点)、目的のタンパク質ではない遺伝子のコーディング配列の断片、または目的のタンパク質ではない遺伝子のコーディング配列を含むがそれに限らない。その発現プラスミドは、pNJK IPまたはpβKLE IPであり得る。
実施態様において、目的のタンパク質の不活性形態を発現する非ヒトトランスジェニック哺乳動物を、修飾Cペプチドを含む修飾インスリン前駆体をコードする核酸配列を用いてクローニングする。その修飾インスリン前駆体において、天然に存在するプロインスリンにおいて見出される連結Cペプチドをコードするアミノ酸が、天然に存在するプロインスリンにおいて見出されないアミノ酸によって置換される。実施態様において、その修飾Cペプチドは、以下の3アミノ酸:Ala−Ala−Lysを含む。さらに、その修飾インスリン前駆体は、修飾B鎖を含み得る。実施態様において、その修飾B鎖は、天然に存在するB鎖のC末端アミノ酸以外を全て含む。
さらなる実施態様において、目的のタンパク質の不活性形態を発現する非ヒトトランスジェニック哺乳動物を、体細胞が線維芽細胞であり得る過程によって作製する。さらに、そのトランスジェニック体細胞を、その乳中に目的のタンパク質の不活性形態を発現するメストランスジェニック動物から単離し得る。そのトランスジェニック体細胞は、線維芽細胞であり得る。
さらなる実施態様において、目的のタンパク質の不活性形態をコードする核酸配列は、目的のタンパク質の不活性形態を発現する非ヒトトランスジェニック哺乳動物の体細胞および生殖細胞の両方で見出される。
本発明はさらに、その乳中に組換え修飾ヒトインスリン前駆体を産生する、非ヒトトランスジェニック哺乳動物において、ヒトインスリンの不活性形態を産生する方法に関連し、そのゲノムは組み込まれたプラスミドを含み、そのプラスミドは修飾ヒトインスリン前駆体をコードする核酸配列、およびその哺乳動物の乳腺細胞におけるその配列の発現を誘導するβカゼインプロモーターを含む。適当なβカゼインプロモーターは、上記で記載する。その組み込まれたプラスミドは、ネオマイシン耐性遺伝子のような抗生物質耐性遺伝子を含み得る。さらに、その組み込まれたプラスミドは、pβmhuIPであり得る。その組み込まれたプラスミドはまた、プラスミドの安定性を増強する、プラスミドから転写されたmRNAの安定性を増強する、修飾インスリン前駆体の分解を減少させる、および/または修飾インスリン前駆体の発現を増加させる、1つまたはそれ以上のさらなる遺伝因子を含み得る。適当な遺伝因子は、調節性エレメント(例えばプロモーター、エンハンサー、インスレーター、または転写終結点)、インスリンではない遺伝子のコーディング配列の断片、またはインスリンではない遺伝子のコーディング配列を含むがそれに限らない。その組み込まれたプラスミドは、pNJK IPまたはpβKLE IPであり得る。
さらに、本発明は、その乳中にその不活性タンパク質を産生するトランスジェニック哺乳動物の乳から、目的のタンパク質の不活性形態を精製する方法に関連する。その精製方法は、クロマトグラフィおよびろ過工程を含み得る。異なる型のクロマトグラフィを採用し得、そしてイオン交換クロマトグラフィまたは逆相クロマトグラフィを含む。そのイオン交換クロマトグラフィは、陽イオン交換クロマトグラフィであり得る。さらに、複数のクロマトグラフィ工程を行い得る。
本発明はさらに、非ヒトトランスジェニック哺乳動物から乳を得る工程、その非ヒトトランスジェニック哺乳動物の乳を清澄化して、清澄化した乳を得る工程、および清澄化した乳をクロマトグラフィにかけて純粋な不活性タンパク質を得る工程を含む、その乳中にその不活性タンパク質を産生する非ヒトトランスジェニック哺乳動物の乳から、目的のタンパク質の不活性形態を精製する方法に関連する。そのクロマトグラフィ工程は、イオン交換クロマトグラフィまたは逆相クロマトグラフィを含み得る。そのイオン交換クロマトグラフィは、陽イオン交換クロマトグラフィであり得る。その逆相クロマトグラフィは、C4またはC18逆相マトリクスのような逆相マトリクスを使用し得る。さらに、複数のクロマトグラフィ工程を行い得る。
本発明はさらに、非ヒトトランスジェニック哺乳動物から乳を得る工程、その非ヒトトランスジェニック哺乳動物の乳を清澄化して、清澄化した乳を得る工程、清澄化した乳を陽イオン交換クロマトグラフィにかけて陽イオン交換クロマトグラフィにかけた材料を得る工程、陽イオン交換クロマトグラフィにかけた材料を逆相クロマトグラフィにかけて、純粋な不活性タンパク質を得る工程を含む、その乳中にその不活性タンパク質を産生する非ヒトトランスジェニック哺乳動物の乳から、目的のタンパク質の不活性形態を精製する方法に関連する。
その目的の不活性タンパク質は、組換え修飾インスリン前駆体、好ましくは組換え修飾哺乳動物インスリン前駆体、より好ましくは組換え修飾ヒトインスリン前駆体、組換え修飾ウシインスリン前駆体、組換え修飾ブタインスリン前駆体、組換え修飾ヒツジインスリン前駆体、組換え修飾ヤギインスリン前駆体、または組換え修飾げっ歯類インスリン前駆体、そして最も好ましくは組換え修飾ヒトインスリン前駆体であり得る。さらに、その修飾インスリン前駆体は、その修飾インスリン前駆体を発現する非ヒトトランスジェニック哺乳動物において、低血糖を引き起こさない。その修飾インスリン前駆体において、天然に存在するプロインスリンにおいて見出される連結Cペプチドをコードするアミノ酸が、天然に存在するプロインスリンにおいて見出されないアミノ酸によって置換される。実施態様において、その修飾Cペプチドは、以下の3アミノ酸:Ala−Ala−Lysを含む。さらに、その修飾インスリン前駆体は、修飾B鎖を含み得る。実施態様において、その修飾B鎖は、天然に存在するB鎖のC末端アミノ酸以外を全て含む。その非ヒトトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。トランスジェニック哺乳動物の他の種は、ブタ種、ヒツジ種、ヤギ種、またはげっ歯類種であり得るが、それに限らない。
本発明はさらに、目的のタンパク質の不活性形態を、目的のタンパク質の成熟(すなわち活性)形式に変換し、そして次いで目的のタンパク質を精製する方法に関連する。その変換は、目的のタンパク質の前駆体の酵素的切断を含み得る。その酵素的切断は、トリプシン分解(trypsinolysis)を含み得る。目的のタンパク質の精製は、クロマトグラフィ工程を含み得る。これらのクロマトグラフィ工程は、逆相クロマトグラフィを含み得る。その逆相クロマトグラフィは、C4またはC18逆相マトリクスのような逆相マトリクスを使用し得る。さらに、複数のクロマトグラフィ工程を行い得る。
本発明はさらに、組換え修飾インスリン前駆体を、組換えインスリンに変換し、そして次いでその組換えインスリンを精製する方法に関連する。その変換は、組換え修飾インスリン前駆体の酵素的切断およびペプチド転移を含み得る。その酵素的切断は、トリプシン分解を含み得る。組換えインスリンの精製は、クロマトグラフィ工程を含み得る。これらのクロマトグラフィ工程は、逆相クロマトグラフィまたはイオン交換クロマトグラフィを含み得る。さらに、複数のクロマトグラフィ工程を行い得る。
本発明はまた、組換え修飾インスリン前駆体を、組換えインスリンに変換し、そして次いでその組換えインスリンを精製する方法に関連する。この方法は、組換え修飾インスリン前駆体に、トリプシン分解およびペプチド転移を行い、トリプシン分解およびペプチド転移した材料を得る工程、トリプシン分解およびペプチド転移した材料を最初の逆相クロマトグラフィにかけて、最初の逆相クロマトグラフィにかけた材料を得る工程、最初の逆相クロマトグラフィにかけた材料を第二の逆相クロマトグラフィにかけて、第二の逆相クロマトグラフィにかけた材料を得る工程、および第二の逆相クロマトグラフィにかけた材料を第三の逆相クロマトグラフィにかけて、純粋な組換えインスリンを得る工程を含む。逆相クロマトグラフィの工程は、逆相マトリクス、好ましくはC4またはC18逆相マトリクスの使用を含む。
その組換えインスリンおよび組換え修飾インスリン前駆体は、それぞれ組換え哺乳動物インスリンおよび組換え修飾哺乳動物インスリン前駆体、より好ましくは、それぞれ組換えヒトインスリンおよび組換え修飾ヒトインスリン前駆体、組換えウシインスリンおよび組換え修飾ウシインスリン前駆体、組換えブタインスリンおよび組換え修飾ブタインスリン前駆体、組換えヒツジインスリンおよび組換え修飾ヒツジインスリン前駆体、組換えヤギインスリンおよび組換え修飾ヤギインスリン前駆体、または組換えげっ歯類インスリンおよび組換え修飾げっ歯類インスリン前駆体、および最も好ましくは、組換えヒトインスリンおよび組換え修飾ヒトインスリン前駆体であり得る。さらに、その修飾インスリン前駆体は、その修飾インスリン前駆体を発現する非ヒトトランスジェニック哺乳動物において低血糖を引き起こさない。その修飾インスリン前駆体において、天然に存在するプロインスリンにおいて見出される連結Cペプチドをコードするアミノ酸が、天然に存在するプロインスリンにおいて見出されないアミノ酸によって置換される。実施態様において、その修飾Cペプチドは、以下の3アミノ酸:Ala−Ala−Lysを含む。さらに、その修飾インスリン前駆体は、修飾B鎖を含み得る。実施態様において、その修飾B鎖は、天然に存在するB鎖のC末端アミノ酸以外を全て含む。
本発明はさらに、その乳中に目的のタンパク質の不活性形態を産生する非ヒトトランスジェニック哺乳動物を作製する工程、その非ヒトトランスジェニック哺乳動物からその乳を得る工程、乳からその不活性形態を精製する工程、精製不活性タンパク質に酵素的切断を行うことによって、インビトロで不活性タンパク質を変換する工程、および最終的に目的のタンパク質を精製する工程を含む、目的のタンパク質を産生する方法に関連する。
本発明はさらに、その乳中に組換え修飾インスリン前駆体を産生する非ヒトトランスジェニック哺乳動物を作製する工程、その非ヒトトランスジェニック哺乳動物からその乳を得る工程、乳からその組換え修飾インスリン前駆体を精製する工程、精製前駆体に酵素的切断およびペプチド転移を行うことによって、インビトロで前駆体を組換えインスリンに変換する工程、および最終的に組換えインスリンを精製する工程を含む、組換えインスリンを産生する方法に関連する。
さらに、本発明はまた、その乳中に組換え修飾インスリン前駆体を産生する非ヒトトランスジェニック哺乳動物を作製する工程、その非ヒトトランスジェニック哺乳動物から乳を得る工程、その乳を清澄化して、清澄化した乳を得る工程、清澄化した乳を陽イオン交換クロマトグラフィにかけて陽イオン交換クロマトグラフィにかけた材料を得る工程、陽イオン交換クロマトグラフィにかけた材料を逆相クロマトグラフィにかけて、純粋な組換え修飾インスリン前駆体を得る工程、純粋な組換え修飾インスリン前駆体にトリプシン処理およびペプチド転移を行って、トリプシン処理およびペプチド転移を行った材料を得る工程、トリプシン処理およびペプチド転移を行った材料を最初の逆相クロマトグラフィにかけて、最初の逆相クロマトグラフィにかけた材料を得る工程、最初の逆相クロマトグラフィにかけた材料を第二の逆相クロマトグラフィにかけて、第二の逆相クロマトグラフィにかけた材料を得る工程、および第二の逆相クロマトグラフィにかけた材料を第三の逆相クロマトグラフィにかけて、純粋な組換えインスリンを得る工程を含む、組換えインスリンを産生する方法に関連する。
その組換えインスリンおよび組換え修飾インスリン前駆体は、それぞれ組換え哺乳動物インスリンおよび組換え修飾哺乳動物インスリン前駆体、より好ましくは、それぞれ組換えヒトインスリンおよび組換え修飾ヒトインスリン前駆体、組換えウシインスリンおよび組換え修飾ウシインスリン前駆体、組換えブタインスリンおよび組換え修飾ブタインスリン前駆体、組換えヒツジインスリンおよび組換え修飾ヒツジインスリン前駆体、組換えヤギインスリンおよび組換え修飾ヤギインスリン前駆体、または組換えげっ歯類インスリンおよび組換え修飾げっ歯類インスリン前駆体、および最も好ましくは、組換えヒトインスリンおよび組換え修飾ヒトインスリン前駆体であり得る。その非ヒトトランスジェニック哺乳動物は、ウシ種の哺乳動物であり得るが、それに限らない。トランスジェニック哺乳動物の他の種は、ブタ種、ヒツジ種、ヤギ種、またはげっ歯類種であり得るが、それに限らない。逆相クロマトグラフィの工程は、逆相マトリクス、好ましくはC4またはC18逆相マトリクスの使用を含む。
以下の実施例は、本発明の様々な局面および特徴の説明であり、制限しない。
実施例1
発現プラスミドの構築
修飾ヒトインスリン前駆体のコーディング配列に融合した、5’ノンコーディングβカゼイン遺伝子領域の短い断片を含む、ウシβカゼイン遺伝子プロモーターの大きな部分を含む構築物を産生した。短い非翻訳断片は、βカゼイン遺伝子の第一エキソンの断片である。採用されたβカゼイン領域は約3.8kbであった。
発現プラスミドの構築
修飾ヒトインスリン前駆体のコーディング配列に融合した、5’ノンコーディングβカゼイン遺伝子領域の短い断片を含む、ウシβカゼイン遺伝子プロモーターの大きな部分を含む構築物を産生した。短い非翻訳断片は、βカゼイン遺伝子の第一エキソンの断片である。採用されたβカゼイン領域は約3.8kbであった。
発現プラスミドpβmhuIP(図1を参照のこと)の構築を、修飾ヒトインスリン前駆体(mhuIP)のコーディング配列、およびウシβカゼインプロモーター遺伝子の大きな部分(βカゼインウシ遺伝子の5’領域由来の3,800bpに対応する)を、適当なベクターに挿入することによって行った。このプロモーターは、この場合には異種性修飾ヒトインスリン前駆体の、そのコントロール下における、遺伝子の組織特異的および発達的に調節された発現を確実にする。
トランスジェニック細胞の適当な選択のために、ネオマイシンホスホトランスフェラーゼをコードする遺伝子を、プラスミドに含めた。この遺伝子は、抗生物質ジェネティシンによるトランスジェニック細胞の選択を可能にし、そしてそれはSV40プロモーターのコントロール下にある。
トランスフェクトした細胞の選択、またはウシ細胞ゲノムへのDNA組み込みの効率を改善するために、他の構築物はオリジナルのもの由来であり得る。
構築物を、制限酵素分析およびDNA配列決定によって分析した。構築物の、mhuIPを発現する能力を、蛍光抗体認識によって、乳腺細胞系統において以前に試験した。
プラスミドpβmhuIPの調製を、下記で詳細に説明する。
pβmhuIPの調製
mhuIP(修飾Cペプチドを含むヒトプロインスリン)をコードする配列を含む、開始構築物を産生した。mhuIPのCペプチドが、天然に存在するプロインスリンで見出されるCペプチドよりも短いこと以外は、mhuIPはヒトプロインスリンと同様である。
mhuIP(修飾Cペプチドを含むヒトプロインスリン)をコードする配列を含む、開始構築物を産生した。mhuIPのCペプチドが、天然に存在するプロインスリンで見出されるCペプチドよりも短いこと以外は、mhuIPはヒトプロインスリンと同様である。
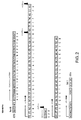
図2は、開始構築物の模式図を描写する。最初に、ウシシグナルペプチドをコードする領域、続いてインスリンのB鎖(C末端アミノ酸を欠く)をコードする配列を見出し得る。次いで、3アミノ酸、Ala−Ala−Lysのスペーサーをコードする領域、それに続いてインスリンの完全なA鎖をコードする配列、そして最後にmRNAポリAをコードする領域を見出し得る。3アミノ酸スペーサー、Ala−Ala−Lysは、天然に存在するプロインスリンにおいて見出されるCペプチドを置換する。
制限酵素BamHIおよびNotIの認識部位を含む、6つのオーバーラップする、化学的に合成したオリゴヌクレオチドからmhuIP配列を再建することによって、開始構築物を産生した。そのプライマー配列を下記に示す:
断片f16を得たら、それを適当なベクターにクローニングし、そしてその対応する挿入物と共にそのクローニングベクターのさらなる増幅のために、コンピテントE.coli細菌細胞に形質転換した。そのベクターはpBKCMV由来であった。pBKCMVは、Invitrogen Co.(Carlsbad、CA)から入手可能な発現ベクターであり、それはCMVプロモーター、ネオマイシン耐性遺伝子、およびカナマイシン耐性遺伝子をコードする。そのCMVプロモーターを、3.8kbのウシβカゼインプロモーターで置換し、そしてBamHIおよびNotI制限部位を用いて、断片f16をできたベクターにクローニングした。
増幅後、クローニングされた挿入物の正体を確認するために、制限試験(restriction tests)を行った。最終的な確認を、配列決定によって達成した。
その後、開始構築物を、プラスミドベクターの4kBのウシβカゼインプロモーターの下流に、方向性を持って挿入した(BamHI/NotI)。そのプラスミドベクターは、ネオマイシン耐性遺伝子も含んでいた。最終構築物である、できたベクター、pβmhuIPは、βカゼインプロモーター、mhuIPをコードする配列、およびネオマイシン耐性遺伝子を含んでいた。
ヒトプロインスリンは、3つのドメイン:アミノ末端B鎖(30アミノ酸)、カルボキシル末端A鎖(21アミノ酸)、およびCペプチドとして知られる、中央の連結ペプチド(31アミノ酸)から成る。mhuIPは、B鎖のC末端アミノ酸が除去され、そしてCペプチドをコードするアミノ酸が、通常Cペプチドにおいて見出されない3アミノ酸、Ala−Ala−Lysで置換されていることにおいて、ヒトプロインスリンの天然に存在する形態と異なる。A鎖およびB鎖のみから成る成熟ヒトインスリンは、Cペプチドの切断後に形成される。宿主のペプチダーゼはCペプチドを切断および除去し、成熟インスリンを形成し得るので、ヒトプロインスリンを発現するトランスジェニック哺乳動物は、成育不能である。上記で説明したように、成熟ヒトインスリンが、その哺乳動物の血流に漏出し得るので、非ヒトトランスジェニック哺乳動物における成熟ヒトインスリンの発現は、その哺乳動物を殺し得る。対照的に、pβmhuIPを用いて作製された非ヒトトランスジェニック哺乳動物は、トランスジェニック哺乳動物にいかなる有意な低血糖も発症させず、そしてそのトランスジェニック哺乳動物に毒性ではない、修飾ヒトインスリン前駆体を発現する。以下に制限されることなく、修飾ヒトインスリン前駆体の3アミノ酸スペーサーをコードする領域は、天然に存在するヒトプロインスリンにおいて見出されるCペプチドと異なっているので、宿主ペプチダーゼは3アミノ酸スペーサーを認識および切断できない。従って、その修飾ヒトインスリン前駆体は不活性なままであり、そしてそのトランスジェニック動物において低血糖を引き起こさず、それは特許請求される発明の重要な利点である。
このプロモーターのコントロール下でのみmhuIPを発現するために、βカゼインプロモーターおよび適当に融合したmhuIPを含むクローンを選択した。
この発現プラスミドのサイズは、約8.4kbpである。
体細胞のトランスフェクション
次いでプラスミドpβmhuIPを、リン酸カルシウムまたはリポソーム法を用いて、体細胞の一次培養物をトランスフェクトするために使用した。一般的に胎仔ウシ線維芽細胞を、トランスフェクションのために採用した。
次いでプラスミドpβmhuIPを、リン酸カルシウムまたはリポソーム法を用いて、体細胞の一次培養物をトランスフェクトするために使用した。一般的に胎仔ウシ線維芽細胞を、トランスフェクションのために採用した。
培養物にジェネティシンを加えることによって、トランスフェクトした細胞を選択した。2から8週間の期間後、ジェネティシンに耐性の細胞が、トランスジェニッククローンを得るためのドナー細胞として使用するために適当であった。トランスフェクトした、選択された細胞を、PCRによって分析して、その細胞がその発現カセットを含んでいることを確認した。
実施例2
卵母細胞の除核および成熟除核した卵母細胞における中期核移植
ウシ卵母細胞の採取およびインビトロにおける成熟
ウシ卵母細胞を、屠殺場の卵巣から吸引し、そしてTCM−199+5%FCS+3mM HEPES+抗真菌薬中で成熟させた。次いで選択された卵母細胞を、5%CO2の雰囲気下で、39℃で20時間、TCM−199+ロスコビチン中に置いた。その後、卵母細胞を、5%CO2の雰囲気下で、39℃で24時間、TCM−199+5%FCS+FSH(卵胞刺激ホルモン)+抗生物質中に置いた。成熟卵母細胞を、1mg/mlのウシ精巣ヒアルロニダーゼを含むPBS中で2分間ボルテックスすることによって、剥皮した。
卵母細胞の除核および成熟除核した卵母細胞における中期核移植
ウシ卵母細胞の採取およびインビトロにおける成熟
ウシ卵母細胞を、屠殺場の卵巣から吸引し、そしてTCM−199+5%FCS+3mM HEPES+抗真菌薬中で成熟させた。次いで選択された卵母細胞を、5%CO2の雰囲気下で、39℃で20時間、TCM−199+ロスコビチン中に置いた。その後、卵母細胞を、5%CO2の雰囲気下で、39℃で24時間、TCM−199+5%FCS+FSH(卵胞刺激ホルモン)+抗生物質中に置いた。成熟卵母細胞を、1mg/mlのウシ精巣ヒアルロニダーゼを含むPBS中で2分間ボルテックスすることによって、剥皮した。
実施例3
卵丘細胞を使用する核移植
除核
卵母細胞を、Narishige水力マイクロマニピュレーターおよびNikon Diaphot顕微鏡を用いて、機械的に除核した。20μmの斜めに切って、そして鋭利にしたピペットによって、除核を行った。卵母細胞を、5μg/mlのビスベンジミジン(bisbenzimidine)(Hoechst33342(Sigma Chemical Co.、St. Louis、MO、USA))色素で予め20分間染色した。紫外線下で染色した染色体を可視化することによって、中期細胞を除核した。中期染色体を、ピペットに吸引した後評価した。トランスジェニック体細胞を、卵黄周囲腔に移し、そして除核した卵母細胞にしっかりと向かい合わせた。
卵丘細胞を使用する核移植
除核
卵母細胞を、Narishige水力マイクロマニピュレーターおよびNikon Diaphot顕微鏡を用いて、機械的に除核した。20μmの斜めに切って、そして鋭利にしたピペットによって、除核を行った。卵母細胞を、5μg/mlのビスベンジミジン(bisbenzimidine)(Hoechst33342(Sigma Chemical Co.、St. Louis、MO、USA))色素で予め20分間染色した。紫外線下で染色した染色体を可視化することによって、中期細胞を除核した。中期染色体を、ピペットに吸引した後評価した。トランスジェニック体細胞を、卵黄周囲腔に移し、そして除核した卵母細胞にしっかりと向かい合わせた。
融合、活性化および胚培養
トランスジェニック体細胞および除核した卵母細胞を、融合する膜が電極に平行であるように、融合チャンバーにおいて手動で並べた。これを、胚を取り扱うガラスのピペットを用いて行った。
トランスジェニック体細胞および除核した卵母細胞を、融合する膜が電極に平行であるように、融合チャンバーにおいて手動で並べた。これを、胚を取り扱うガラスのピペットを用いて行った。
15μsの180ボルト/cmの1回の電気パルスを用いて融合を行い(BTX Electro Cell Manipulator 200(BTX Inc.、San Diego、Ca、USA))、そしてBTX Optimizer−Graphic Pulse Analyzerによってモニターした。胚をパルスするためのチャンバーは、ガラスの顕微鏡スライド上に0.5mm離して設置された、2本の0.5mmのステンレススチールワイア電極から成る。融合の3時間後、5μMのイオノマイシンを含むTL−HEPES中で4分間、および2mMの6−DMAPを含むTCM−199中で3時間インキュベートすることによって、活性化を誘発した。
次いで活性化した卵母細胞を、SOF培地中で、5%CO2+5%O2+90%N2の雰囲気下で、6.5日間、胚盤胞の発達まで培養した。
その後、代理ウシへの胎芽移植が行われた。一般的に、レシピエントのウシあたり2つの胚盤胞を、非外科的に移植し、そして30−35日における妊娠を、超音波検査によって決定した。
移植されたウシを、自然な分娩まで、正常に妊娠を経過させた。最終的に、外科的アプローチ(帝王切開)を、分娩のために使用し得た。新生仔に、最初の48時間はIgを多く含む初乳を与え、そして次いで合成、後には天然の(それらは全て動物由来の化合物を含まない)食物を使用した。
実施例4
トランスジェニック仔ウシに行った試験
本実施例において、本発明者らは、実施例1から3において記載された手順の結果として得られた、特定のトランスジェニック仔ウシに行った試験の完全な説明を提示する。それでも、同じセットのアッセイを、トランスジェニックメスのサブクローニング、トランスジェニックメスの過剰排卵に続く人工授精、またはトランスジェニックまたは非トランスジェニックメスの、望ましいタンパク質に関してトランスジェニックである雄ウシ由来の精液による人工授精のような、トランスジェニック仔ウシを得るための他の方法の結果として産まれたウシに対して行い得たことが、明らかなままであるべきである。
トランスジェニック仔ウシに行った試験
本実施例において、本発明者らは、実施例1から3において記載された手順の結果として得られた、特定のトランスジェニック仔ウシに行った試験の完全な説明を提示する。それでも、同じセットのアッセイを、トランスジェニックメスのサブクローニング、トランスジェニックメスの過剰排卵に続く人工授精、またはトランスジェニックまたは非トランスジェニックメスの、望ましいタンパク質に関してトランスジェニックである雄ウシ由来の精液による人工授精のような、トランスジェニック仔ウシを得るための他の方法の結果として産まれたウシに対して行い得たことが、明らかなままであるべきである。
ウシβカゼインプロモーターおよび修飾ヒトインスリン前駆体をコードする配列が、トランスジェニック仔ウシの細胞ゲノムに含まれていることが、ネガティブコントロールとして非トランスジェニックジャージー種仔ウシ由来のDNAを用いて、仔ウシの白血球から精製したDNAに対して行ったPCR反応によって証明された。仔ウシのホモログβカゼイン遺伝子と異なる、独特のDNA断片として、それらは一緒に見出され得る。
Pharmacia自動配列決定装置を用いることによって、挿入された配列が、クローニングプラスミドに含まれた修飾ヒトインスリン前駆体をコードする配列に対応することが実証された。挿入配列は、分泌シグナルおよびターミネーターを含む。本発明者らの仔ウシにおいて、修飾ヒトインスリン前駆体配列の発現を調節するウシβカゼインプロモーターも配列決定した。それらの要素は全て、クローンが産生された細胞を形質転換するために使用した遺伝的構築物から予測された理論的配列に正確に一致する。
実施例5
乳からの組換えmhuIPの精製、mhuIPのヒトインスリンへの変換、およびヒトインスリンの精製
乳からの前駆体の精製手順の展開に必要な、ある量の組換えmhuIPタンパク質を、形質転換したPhichia pastorisの発酵から得た。この目的のために、mhuIPをコードする配列を、発現ベクターの酵母分泌シグナル配列の下流に、メタノールによって誘導されるプロモーターのコントロール下にサブクローニングし、そして酵母細胞において形質転換した。
乳からの組換えmhuIPの精製、mhuIPのヒトインスリンへの変換、およびヒトインスリンの精製
乳からの前駆体の精製手順の展開に必要な、ある量の組換えmhuIPタンパク質を、形質転換したPhichia pastorisの発酵から得た。この目的のために、mhuIPをコードする配列を、発現ベクターの酵母分泌シグナル配列の下流に、メタノールによって誘導されるプロモーターのコントロール下にサブクローニングし、そして酵母細胞において形質転換した。
その後、適当なクローンの選択を行い、そして選択したクローンから液体培養物を作製した。
形質転換した酵母クローンの発酵を、炭素源、オリゴエレメントとしてグリセロールを含む培地中で行った。誘導のためにメタノールを使用した。この発酵は、培養物1リットルあたり0.5グラムのmhuIPを生じた。
発酵が終了したら、純粋な産物を得るために、精製工程を行った。
最初の目的は、酵母培養物から純粋な組換えmhuIPを得ることであった。従って、形質転換したPhichia pastoris培養の上清を、精製水で10倍に希釈し、そして氷酢酸を用いてそのpHを3.0に調整した。この溶液の伝導率を、それが7mS/cmより高い値を示さないように実証した。その後トランスジェニック哺乳動物の乳からの組換えmhuIPの精製過程、およびその後の組換えヒトインスリンへの変換の展開のための開始材料を得るために、精製過程を行った。
最初に、前述の溶液を、100cm/hの流速で、SPセファロースFF樹脂(Amersham)を採用する陽イオン交換クロマトグラフィ工程にかけた。添加(樹脂1mLあたり10mLの上清を添加した)およびカラムの平衡化を、5%酢酸を採用して行った。タンパク質の溶出のために、全容量がカラムの25容量に達するまでに、100:0の溶液比から始まって0:100の溶液比まで、pH3において5%酢酸:1MのNaClの勾配を適用した。
第二の精製工程において、陽イオン交換クロマトグラフィからの溶出物を、逆相クロマトグラフィにかけた。前の溶出物を、精製水で5倍に希釈し、そしてトリフルオロ酢酸(TFA)によってpHを3に調整した。
できた溶液を、C4 Baker Wide Pore樹脂を含むカラムに添加した。流速を、100cm/hに設定した。添加および平衡化のために、0.1%のTFA/水を使用した。溶出のために、全容量がカラムの50容量に達するまでに、100:0の溶液比から始まって0:100比までの、0.1%TFA/水−アセトニトリルの勾配を適用した。
前の精製工程の全体的な収率は約42%であり、そして95%より高い純度を有するmhuIPを得た。
乳からの組換えmhuIPの精製(そのトランスジェニック哺乳動物はその乳中に前駆体を分泌するため)、組換えmhuIPの組換えヒトインスリンへの変換、および組換えヒトインスリンの最終的な精製を含む過程を展開した。この展開の開始材料を、純粋な組換えmhuIP(上記で記載したようにPhichia pastorisから得た)を、通常のウシ乳と混合することによって得た。
徹底的な精製過程を展開した。この過程は、最終的にカゼインのミセル中に保持された組換えmhuIPのより良い可溶性を達成するために、得た溶出物のタンジェンシャルろ過および希釈によって脱脂乳を得る工程(清澄化)、およびこの溶液を陽イオン交換クロマトグラフィカラムに通す工程を含んでいた。できた溶液を、逆相クロマトグラフィ(C4)工程にかけ、そして組換えmhuIPが豊富な画分に、その後トリプシン分解およびペプチド転移を行った。最後に、生物製剤製品を製造する場合、製品中の潜在的な混入物の存在を回避するために、目的のタンパク質を均一に精製しなければならないのは必須であるので、組換えヒトインスリンの精製を行った。
乳からの組換えmhuIPの精製、後の組換えヒトインスリンへの変換、および最終的な組換えヒトインスリンの精製の手順は、以下の工程を順番に含む:(a)タンジェンシャルフローろ過(清澄化)、(b)陽イオン交換クロマトグラフィ、(c)逆相クロマトグラフィ(C4)、(d)トリプシン分解およびペプチド転移、(e)逆相クロマトグラフィ(C4)、(f)逆相クロマトグラフィ(C4)、および(g)逆相クロマトグラフィ(C18)。
清澄化
新鮮な乳を、前に記載したようにP.pastorisで産生した、十分な量の純粋な組換えmhuIPと混合した。その後、その産物をタンジェンシャルフローろ過工程にかけた。フィルターのポアサイズは0.1μmであり、そしてその過程の収率は80%であった。
新鮮な乳を、前に記載したようにP.pastorisで産生した、十分な量の純粋な組換えmhuIPと混合した。その後、その産物をタンジェンシャルフローろ過工程にかけた。フィルターのポアサイズは0.1μmであり、そしてその過程の収率は80%であった。
陽イオン交換クロマトグラフィ
前の工程から生じた材料を、陽イオン交換マトリクスを採用するクロマトグラフィにかけた。クロマトグラフィにかける溶液のpHを、氷酢酸で3.0に調整した。伝導率を、7mS/cmより高くないように確認した。
前の工程から生じた材料を、陽イオン交換マトリクスを採用するクロマトグラフィにかけた。クロマトグラフィにかける溶液のpHを、氷酢酸で3.0に調整した。伝導率を、7mS/cmより高くないように確認した。
このクロマトグラフィ工程を、SPセファロースFF樹脂(Amersham)を採用して、100cm/hの流速で行った。添加およびカラムの平衡化を、5%酢酸を採用して行った。タンパク質の溶出のために、全容量がカラムの25容量に達するまでに、100:0の溶液比から始まって、0:100の溶液比までの、pH3における5%酢酸−1MのNaClの勾配を適用した。
そのクロマトグラフィ工程は、90%の収率を有していた。選択した組換えmhuIPを含む画分を、全タンパク質に関して(Bradford法によって)、および目的のタンパク質に関して(ウェスタンブロットによって)アッセイし、そして2−8℃で保存した。
逆相クロマトグラフィ(1)
前の工程からできた材料を、次いでC4 Baker Wide Pore樹脂を採用する逆相クロマトグラフィにかけた。流速を100cm/hに設定した。添加および平衡化のために、0.1%のTFA/水を用いた。溶出のために、全容量がカラムの50容量に達するまでに、100:0の溶液比から始まって、0:100の溶液比までの、0.1%TFA/水−アセトニトリルの勾配を適用した。
前の工程からできた材料を、次いでC4 Baker Wide Pore樹脂を採用する逆相クロマトグラフィにかけた。流速を100cm/hに設定した。添加および平衡化のために、0.1%のTFA/水を用いた。溶出のために、全容量がカラムの50容量に達するまでに、100:0の溶液比から始まって、0:100の溶液比までの、0.1%TFA/水−アセトニトリルの勾配を適用した。
この工程は、68%の収率を有していた。
トリプシン分解およびペプチド転移
前の工程からできた材料を、トリプシンで処理した。
前の工程からできた材料を、トリプシンで処理した。
トリプシン分解のために、10mMのmhuIP溶液を、トリプシンと(200μMの濃度で)、12℃で24時間インキュベートした。
インキュベーションが終了したら、ヒトインスリンのB鎖の位置30にスレオニンを加えるために、ペプチド転移反応を行った。この目的のために、0.8MのThr−Obu、50%のDMF/EtOH(1:1)、26%のH2O、酢酸、10mMのmhuIP、および200μMのトリプシンを含む溶液を調製し、そしてペプチド転移反応を、完了まで進ませた。
ペプチド転移工程が終了したら、純粋な組換えヒトインスリンを得るために、できた溶液を3つの連続する逆相クロマトグラフィ工程にかけた。
逆相クロマトグラフィ(2)
前の工程からできた材料を、逆相クロマトグラフィにかけた。
前の工程からできた材料を、逆相クロマトグラフィにかけた。
最初に、前の消化の材料を、50mMのNaH2PO4、pH5.0を用いて、0.125mg/mLまで希釈した。その後、溶液100mLあたり50μLの酢酸を加えた。サンプルは次いで透明であり、pHは約4.5であり、そしてサンプルは添加する用意ができた。
緩衝液の組成を下記に記載する:
移動相A(MPA):210mLの硫酸塩緩衝液+790mLの精製水(約48mSの伝導率)
移動相B(MPB):105mLの硫酸塩緩衝液+40%のアセトニトリル、精製水1Lまでq.s.p.。
移動相A(MPA):210mLの硫酸塩緩衝液+790mLの精製水(約48mSの伝導率)
移動相B(MPB):105mLの硫酸塩緩衝液+40%のアセトニトリル、精製水1Lまでq.s.p.。
1Lの硫酸塩緩衝液は、132.1グラムのNH4SO4、14mLのH2SO4を含み、そしてそのpHを2.00に調整する。
添加後、以下のように100cm/hの流速で溶出を行った:最初に、全容量が135mLに達するまでに、100:0の溶液比から始まって55:45の溶液比まで、MPA−MPBの勾配を適用した;その後、全容量が360mLに達するまでに、55:45の溶液比から始まって、25:75の溶液比まで、別のMPA−MPBの勾配を適用した;ならびに最後に、全容量が50mLに達するまでに、25:75の溶液比から始まって、0:100の溶液比まで、最終的なMPA−MPBの勾配を適用した。
得た画分は、98%以上の純度で組換えヒトインスリンを含み、そしてこの工程の収率は約85%である。
逆相クロマトグラフィ(3)
前の工程からできた材料を、そのpHを7.4に調整することによって、この工程のために調節した。
前の工程からできた材料を、そのpHを7.4に調整することによって、この工程のために調節した。
できた溶液を、次いでC4 Baker Wide Poreマトリクスを採用してクロマトグラフィにかけた。流速を、100cm/hに設定した。添加および平衡化のために、0.1%のTFA/水を使用した。溶出のために、全容量がカラムの50容量に達するまでに、100:0の溶液比から始まって、0:100の溶液比まで、0.1%TFA/水−アセトニトリルの勾配を適用した。
この工程は、約65%の収率を有していた。
逆相クロマトグラフィ(4)
前の工程で得た材料を、そのpHを3.0に調整することによって、最終的な逆相クロマトグラフィ工程のために調節した。
前の工程で得た材料を、そのpHを3.0に調整することによって、最終的な逆相クロマトグラフィ工程のために調節した。
次いで調節した材料を、C18逆相マトリクスを採用してクロマトグラフィにかけた。流速を、100cm/hに設定した。添加および平衡化のために、0.1%のTFA/水を使用した。溶出のために、全容量がカラムの50容量に達するまでに、100:0の溶液比から始まって、0:100の溶液比まで、0.1%TFA/水−アセトニトリルの勾配を適用した。
この工程は、約61%の収率を有していた。
実施例6
発現プラスミドpNJK IPの構築
ニワトリβグロビンインスレーターのコーディング配列の断片に融合した、ヤギβカゼイン遺伝子プロモーターの大きな部分を含む、トランスジェニックウシ乳腺においてmhuIPを発現するための、代替構築物を産生した。インスレーターは、遺伝子発現を阻害する付近のサイレンシング配列を含む、付近の調節性エレメントからプロモーターを保護するDNA配列エレメントである。ニワトリβグロビンインスレーターを含むこの代替構築物を、あらゆる付近のサイレンシング配列による、βカゼインプロモーターの阻害を防ぐために産生した。
発現プラスミドpNJK IPの構築
ニワトリβグロビンインスレーターのコーディング配列の断片に融合した、ヤギβカゼイン遺伝子プロモーターの大きな部分を含む、トランスジェニックウシ乳腺においてmhuIPを発現するための、代替構築物を産生した。インスレーターは、遺伝子発現を阻害する付近のサイレンシング配列を含む、付近の調節性エレメントからプロモーターを保護するDNA配列エレメントである。ニワトリβグロビンインスレーターを含むこの代替構築物を、あらゆる付近のサイレンシング配列による、βカゼインプロモーターの阻害を防ぐために産生した。
最初に、Invitrogen Co.(Carlsbad、CA)から入手可能な市販のベクターであるpBC1から、ニワトリβグロビンインスレーターの2.4kbの断片、ヤギβカゼイン遺伝子からのイントロンおよび非翻訳エキソンを含む、3.1kbのヤギβカゼインプロモーター配列、ヤギβカゼイン遺伝子からのイントロンおよび非翻訳エキソンの間のXhoIクローニング部位、および3’βカゼインゲノム配列からのポリAシグナルおよび隣接する領域を含む、15kbの断片を切除することによって、この代替プラスミドの構築を行った。
この15kbの断片を、pβmhuIPのバックボーンにクローニングした。最初に、pβmhuIPから3.8kbのウシβカゼインプロモーターおよび、mhuIP断片を切除した。SalIおよびNotI制限部位を用いて、15kbの断片をこのベクターに挿入した。次いで、410bpのmhuIPf16断片を、15kbの断片に存在するXhoIクローニング部位にクローニングした(上記で記載したように、ヤギβカゼイン遺伝子からのイントロンおよび非翻訳エキソンの間)。
その対応する挿入物と共にクローニングベクターをさらに増幅するために、できたベクター(pNJK IP、図3)を、コンピテントE.coli細菌細胞に形質転換した。
増幅後、mhuIPf16断片挿入物の方向を確認するために、制限部位分析を行った。最終的な確認を、配列決定によって達成した。
実施例7
発現プラスミドpβKLE IPの構築
ウシαラクトアルブミン遺伝子の大きな部分のコーディング配列、続いてエンテロキナーゼ切断部位、それに続いて修飾ヒトインスリン前駆体(mhuIP)のコーディング配列に融合した、βカゼイン遺伝子の第一エキソンの短い非翻訳断片を含むウシβカゼイン遺伝子プロモーターの大きな部分を含む、トランスジェニックウシ乳腺においてmhuIPを発現するための、代替構築物を産生した。この代替構築物は、αラクトアルブミン−mhuIP融合タンパク質を発現する。そのより大きな配列のために、この代替構築物は、より高い安定性でmRNAを生じる。それに加えて、αラクトアルブミンは、ウシ乳腺において天然に発現するタンパク質であるので、この代替構築物は、mhuIPの分解を最小にし、そしてmhuIPの発現を増加させるはずである。
発現プラスミドpβKLE IPの構築
ウシαラクトアルブミン遺伝子の大きな部分のコーディング配列、続いてエンテロキナーゼ切断部位、それに続いて修飾ヒトインスリン前駆体(mhuIP)のコーディング配列に融合した、βカゼイン遺伝子の第一エキソンの短い非翻訳断片を含むウシβカゼイン遺伝子プロモーターの大きな部分を含む、トランスジェニックウシ乳腺においてmhuIPを発現するための、代替構築物を産生した。この代替構築物は、αラクトアルブミン−mhuIP融合タンパク質を発現する。そのより大きな配列のために、この代替構築物は、より高い安定性でmRNAを生じる。それに加えて、αラクトアルブミンは、ウシ乳腺において天然に発現するタンパク質であるので、この代替構築物は、mhuIPの分解を最小にし、そしてmhuIPの発現を増加させるはずである。
この構築物を産生するために、最初に、αラクトアルブミン遺伝子の大きな部分をクローニングするために、鋳型としてウシ末梢血の白血球由来のDNAを用いてPCR反応を行った。そのPCR産物は、第二のエキソンの終わりまで、約700bpのαラクトアルブミンを含んでおり、そしてαラクトアルブミンシグナル配列を含んでいた。
最初のPCR反応は、以下のオリゴヌクレオチドを採用した:
以下のオリゴヌクレオチドを用いて、所内(in−house)IPクローニングプラスミドからPCRによってmhuIP遺伝子を有する断片を得た:
pUCαラクトアルブミンプラスミドを、最初にEcoRIで消化し、そしてできた付着末端をクレノウ処理した。それに加えて、NotI消化を行い、そしてできた遺伝子断片を単離した。αラクトアルブミン遺伝子融合物をライゲーションするために、βカゼインプロモーターを有するpBKプラスミドを、当該プロモーター領域の3’末端に位置する独特のBamHI部位で消化した。従って、断片由来のEcoRI平滑末端にライゲーションするために、BamHI部位も平滑末端にしたが、挿入物のNotI末端に相同の末端を提供するために、pBKプラスミドのNotI消化を前に行った。
その対応する挿入物と共にクローニングベクターをさらに増幅するために、pβKLE IPを次いでコンピテントE.coli細菌細胞に形質転換した。
増幅後、最終的な確認を配列決定によって達成した。
いまや本発明を完全に説明したので、当業者によって、本発明の範囲またはそのあらゆる実施態様に影響を与えることなく、広くそして同等の範囲の条件、処方、および他のパラメーターの範囲内で、同じことを行い得ることが理解される。本明細書中で引用された全ての特許および出版物は、その全体として、本明細書中で完全に参考文献に組み込まれる。
Claims (91)
- インスリンを産生する方法であって、該方法は:
a)その乳中に修飾インスリン前駆体を産生する非ヒトトランスジェニック哺乳動物を作製する工程;
b)該非ヒトトランスジェニック哺乳動物から該乳を得る工程;
c)該乳から該修飾インスリン前駆体を精製して、純粋な修飾インスリン前駆体を得る工程;
d)該純粋な修飾インスリン前駆体を該インスリンに変換する工程;ならびに
e)該インスリンを精製する工程、
を包含する、方法。 - 前記非ヒトトランスジェニック哺乳動物が、以下:
a)前記修飾インスリン前駆体をコードする核酸配列をプラスミドにクローニングし、それによって、該配列を、乳腺細胞において該配列の発現を誘導するプロモーターに作動可能に連結し、発現プラスミドを得る工程;
b)該発現プラスミドが体細胞のゲノムに組み込まれるように該体細胞を該プラスミドでトランスフェクトして、トランスジェニック体細胞を得る工程;
c)成熟卵母細胞を除核し、除核した卵母細胞を得る工程;
d)該トランスジェニック体細胞のうちの1つを該除核した卵母細胞と融合して、単一細胞の胚を得る工程;
e)該胚を受容性の哺乳動物の子宮に移植する工程;ならびに
f)該トランスジェニック哺乳動物の出産まで妊娠をモニターする工程
を含む過程によって作製される、請求項1に記載の方法。 - 前記プロモーターがβカゼインプロモーターであり、前記修飾インスリン前駆体が修飾哺乳動物インスリン前駆体である、請求項2に記載の方法。
- 前記修飾哺乳動物インスリン前駆体が、修飾ヒトインスリン前駆体、修飾ウシインスリン前駆体、修飾ブタインスリン前駆体、修飾ヒツジインスリン前駆体、修飾ヤギインスリン前駆体または修飾げっ歯類インスリン前駆体である、請求項3に記載の方法。
- 前記修飾哺乳動物インスリン前駆体が修飾ヒトインスリン前駆体である、請求項4に記載の方法。
- 前記発現プラスミドがネオマイシン耐性遺伝子をさらに含む、請求項5に記載の方法。
- 前記発現プラスミドがpβmhuIPである、請求項6に記載の方法。
- 前記発現プラスミドがpNJK IPである、請求項6に記載の方法。
- 前記発現プラスミドがpβKLE IPである、請求項6に記載の方法。
- 前記哺乳動物が、その乳中に修飾ヒトインスリン前駆体を産生するウシであり、該哺乳動物のゲノムは組み込まれたプラスミドを含み、該プラスミドは、該修飾ヒトインスリン前駆体をコードする配列および該哺乳動物の乳腺細胞において該配列の発現を誘導するβカゼインプロモーターを含む、請求項2に記載の方法。
- 前記プラスミドがネオマイシン耐性遺伝子をさらに含む、請求項10に記載の方法。
- 前記プラスミドがpβmhuIPである、請求項11に記載の方法。
- 前記プラスミドがpNJK IPである、請求項11に記載の方法。
- 前記哺乳動物が、その乳中にαラクトアルブミンの断片、エンテロキナーゼ切断部位および修飾ヒトインスリン前駆体を含む融合タンパク質を産生するウシであり、該哺乳動物のゲノムは組み込まれたプラスミドを含み、該プラスミドは、該融合タンパク質をコードする配列および該哺乳動物の乳腺細胞において該配列の発現を誘導するβカゼインプロモーターを含む、請求項2に記載の方法。
- 前記プラスミドがネオマイシン耐性遺伝子をさらに含む、請求項14に記載の方法。
- 前記プラスミドがpβKLE IPである、請求項15に記載の方法。
- 前記体細胞が線維芽細胞である、請求項2に記載の方法。
- 前記トランスジェニック体細胞が、その乳中において前記修飾インスリン前駆体を産生するためのメストランスジェニック動物(female transgenic)からの単離によって得られる、請求項2に記載の方法。
- 前記トランスジェニック体細胞が線維芽細胞である、請求項18に記載の方法。
- 前記哺乳動物が、ウシ種、ブタ種、ヒツジ種、ヤギ種またはげっ歯類種である、請求項1、2または18に記載の方法。
- 前記哺乳動物がウシ種である、請求項20に記載の方法。
- 前記インスリンおよび前記修飾インスリン前駆体が、それぞれ哺乳動物インスリンおよび修飾哺乳動物インスリン前駆体である、請求項1、2または18に記載の方法。
- 前記哺乳動物インスリンおよび前記修飾哺乳動物インスリン前駆体が、それぞれヒトインスリンおよび修飾ヒトインスリン前駆体、ウシインスリンおよび修飾ウシインスリン前駆体、ブタインスリンおよび修飾ブタインスリン前駆体、ヒツジインスリンおよび修飾ヒツジインスリン前駆体、ヤギインスリンおよび修飾ヤギインスリン、またはげっ歯類インスリンおよび修飾げっ歯類インスリン前駆体である、請求項22に記載の方法。
- 前記哺乳動物インスリンおよび前記修飾哺乳動物インスリン前駆体が、それぞれヒトインスリンおよび修飾ヒトインスリン前駆体である、請求項23に記載の方法。
- 前記修飾インスリン前駆体が、前記非ヒトトランスジェニック動物において低血糖を引き起こさない、請求項1、2または18に記載の方法。
- 前記修飾インスリン前駆体が修飾Cペプチドを含む、請求項25に記載の方法。
- 前記修飾Cペプチドが、天然に存在するプロインスリンには通常に見出されないアミノ酸を含む、請求項26に記載の方法。
- 前記修飾Cペプチドが、以下の3アミノ酸:Ala−Ala−Lysを含む、請求項27に記載の方法。
- 前記修飾インスリン前駆体が修飾B鎖をさらに含む、請求項26に記載の方法。
- 前記修飾B鎖が、天然に存在するB鎖のC末端アミノ酸以外は全て含む、請求項29に記載の方法。
- 乳腺細胞において前記核酸配列の発現を誘導するプロモーターに作動可能に連結された、前記修飾インスリン前駆体をコードする配列が、前記哺乳動物の体細胞および生殖細胞において見出される、請求項1、2または18に記載の方法。
- その乳中に修飾インスリン前駆体を産生する非ヒトトランスジェニック哺乳動物の乳から修飾インスリン前駆体を精製する方法であって、該方法は:
a)該非ヒトトランスジェニック哺乳動物の乳を清澄化し、清澄化した乳を得る工程;ならびに
b)該清澄化した乳をクロマトグラフィに供し、純粋な修飾インスリン前駆体を得る工程、
を包含する、方法。 - 前記クロマトグラフィが、イオン交換クロマトグラフィまたは逆相クロマトグラフィである、請求項32に記載の方法。
- 複数のクロマトグラフィ工程を実行する、請求項33に記載の方法。
- 前記イオン交換クロマトグラフィが陽イオン交換クロマトグラフィである、請求項33に記載の方法。
- その乳中に修飾インスリン前駆体を産生する非ヒトトランスジェニック哺乳動物の乳から修飾インスリン前駆体を精製する方法であって、該方法は:
a)該非ヒトトランスジェニック哺乳動物の乳を清澄化し、清澄化した乳を得る工程;
b)該清澄化した乳を陽イオン交換クロマトグラフィに供し、陽イオン交換クロマトグラフィにかけた材料を得る工程;ならびに
c)該陽イオン交換クロマトグラフィにかけた材料を逆相クロマトグラフィに供し、純粋な修飾インスリン前駆体を得る工程、
を包含する、方法。 - 前記修飾インスリン前駆体が修飾哺乳動物インスリン前駆体である、請求項32または36に記載の方法。
- 前記修飾哺乳動物インスリン前駆体が、修飾ヒトインスリン前駆体、修飾ウシインスリン前駆体、修飾ブタインスリン前駆体、修飾ヒツジインスリン前駆体、修飾ヤギインスリン前駆体または修飾げっ歯類インスリン前駆体である、請求項37に記載の方法。
- 前記修飾哺乳動物インスリン前駆体が修飾ヒトインスリン前駆体である、請求項38に記載の方法。
- 前記非ヒトトランスジェニック哺乳動物がウシ種である、請求項32または36に記載の方法。
- 前記非ヒトトランスジェニック哺乳動物が、ブタ、ヒツジ、ヤギまたはげっ歯類である、請求項32または36に記載の方法。
- 前記修飾インスリン前駆体が、前記非ヒトトランスジェニック動物において低血糖を引き起こさない、請求項32または36に記載の方法。
- 前記修飾インスリン前駆体が修飾Cペプチドを含む、請求項42に記載の方法。
- 前記修飾Cペプチドが、天然に存在するプロインスリンには通常に見出されないアミノ酸を含む、請求項43に記載の方法。
- 前記修飾Cペプチドが、以下の3アミノ酸:Ala−Ala−Lysを含む、請求項44に記載の方法。
- 前記修飾インスリン前駆体が修飾B鎖をさらに含む、請求項43に記載の方法。
- 前記修飾B鎖が、天然に存在するB鎖のC末端アミノ酸以外は全て含む、請求項46に記載の方法。
- 修飾インスリン前駆体をインスリンに変換し、該インスリンを精製する方法であって、該方法は:
a)該修飾インスリン前駆体を酵素的切断およびペプチド転移に供し、切断およびペプチド転移した材料を得る工程、
b)該切断およびペプチド転移した材料をクロマトグラフィに供し、純粋なインスリンを得る工程、
を包含する、方法。 - 前記酵素的切断がトリプシン分解である、請求項48に記載の方法。
- 前記クロマトグラフィが逆相クロマトグラフィである、請求項48に記載の方法。
- 複数のクロマトグラフィ工程を実行する、請求項50に記載の方法。
- 3つのクロマトグラフィ工程を実行する、請求項51に記載の方法。
- 前記クロマトグラフィ工程が逆相マトリクスの使用を含む、請求項52に記載の方法。
- 前記逆相マトリクスがC4またはC18逆相マトリクスである、請求項53に記載の方法。
- 修飾インスリン前駆体をインスリンに変換し、該インスリンを精製する方法であって、該方法は:
a)該修飾インスリン前駆体をトリプシン分解およびペプチド転移に供し、トリプシン分解およびペプチド転移した材料を得る工程;
b)該トリプシン分解およびペプチド転移した材料を第一の逆相クロマトグラフィに供し、第一の逆相クロマトグラフィにかけた材料を得る工程;
c)該第一の逆相クロマトグラフィにかけた材料を第二の逆相クロマトグラフィに供し、第二の逆相クロマトグラフィにかけた材料を得る工程;ならびに
d)該第二の逆相クロマトグラフィにかけた材料を第三の逆相クロマトグラフィに供し、純粋なインスリンを得る工程、
を包含する、方法。 - 前記逆相クロマトグラフィ工程が逆相マトリクスの使用を含む、請求項55に記載の方法。
- 前記逆相マトリクスがC4またはC18逆相マトリクスである、請求項56に記載の方法。
- 前記インスリンおよび前記修飾インスリン前駆体が、それぞれ哺乳動物インスリンおよび修飾哺乳動物インスリン前駆体である、請求項48または55に記載の方法。
- 前記哺乳動物インスリンおよび前記修飾哺乳動物インスリン前駆体が、それぞれヒトインスリンおよび修飾ヒトインスリン前駆体、ウシインスリンおよび修飾ウシインスリン前駆体、ブタインスリンおよび修飾ブタインスリン前駆体、ヒツジインスリンおよび修飾ヒツジインスリン前駆体、ヤギインスリンおよび修飾ヤギインスリン前駆体、またはげっ歯類インスリンおよび修飾げっ歯類インスリン前駆体である、請求項58に記載の方法。
- 前記哺乳動物インスリンおよび前記修飾哺乳動物インスリン前駆体が、それぞれヒトインスリンおよび修飾ヒトインスリン前駆体である、請求項59に記載の方法。
- 前記修飾インスリン前駆体が、前記非ヒトトランスジェニック動物において低血糖を引き起こさない、請求項48または55に記載の方法。
- 前記修飾インスリン前駆体が修飾Cペプチドを含む、請求項61に記載の方法。
- 前記修飾Cペプチドが、天然に存在するプロインスリンには通常に見出されないアミノ酸を含む、請求項62に記載の方法。
- 前記修飾Cペプチドが、以下の3アミノ酸:Ala−Ala−Lysを含む、請求項63に記載の方法。
- 前記修飾インスリン前駆体が修飾B鎖をさらに含む、請求項62に記載の方法。
- 前記修飾B鎖が、天然に存在するB鎖のC末端アミノ酸以外は全て含む、請求項65に記載の方法。
- 乳からの前記修飾インスリン前駆体の精製が、以下:
a)該非ヒトトランスジェニック哺乳動物の乳を清澄化し、清澄化した乳を得る工程;ならびに
b)該清澄化した乳をクロマトグラフィに供し、純粋な修飾インスリン前駆体を得る工程、
を包含する、請求項1に記載の方法。 - 前記クロマトグラフィが、イオン交換クロマトグラフィまたは逆相クロマトグラフィである、請求項67に記載の方法。
- 複数のクロマトグラフィ工程を実行する、請求項68に記載の方法。
- 前記イオン交換クロマトグラフィが陽イオン交換クロマトグラフィである、請求項68に記載の方法。
- 前記インスリンへの前記修飾インスリン前駆体の変換が、以下:
a)該修飾インスリン前駆体を酵素的切断およびペプチド転移に供し、切断およびペプチド転移した材料を得る工程;
b)該切断およびペプチド転移した材料をクロマトグラフィに供し、純粋なインスリンを得る工程、
を包含する、請求項1に記載の方法。 - 前記酵素的切断がトリプシン分解である、請求項71に記載の方法。
- 前記クロマトグラフィが逆相クロマトグラフィである、請求項71に記載の方法。
- 複数のクロマトグラフィ工程を実行する、請求項73に記載の方法。
- 3つのクロマトグラフィ工程を実行する、請求項74に記載の方法。
- 前記クロマトグラフィ工程が逆相マトリクスの使用を含む、請求項75に記載の方法。
- 前記逆相マトリクスがC4またはC18逆相マトリクスである、請求項76に記載の方法。
- インスリンを産生する方法であって、該方法は:
a)その乳中に修飾インスリン前駆体を産生する非ヒトトランスジェニック哺乳動物を作製する工程;
b)該非ヒトトランスジェニック哺乳動物から該乳を得る工程;
c)該乳を清澄化し、清澄化した乳を得る工程;
d)該清澄化した乳を陽イオン交換クロマトグラフィに供し、陽イオン交換クロマトグラフィにかけた材料を得る工程;
e)該陽イオン交換クロマトグラフィにかけた材料を逆相クロマトグラフィに供し、純粋な修飾インスリン前駆体を得る工程;
f)該純粋な修飾インスリン前駆体をトリプシン分解およびペプチド転移に供し、トリプシン分解およびペプチド転移した材料を得る工程;
g)該トリプシン分解およびペプチド転移した材料を第一の逆相クロマトグラフィに供し、第一の逆相クロマトグラフィにかけた材料を得る工程;
h)該第一の逆相クロマトグラフィにかけた材料を第二の逆相クロマトグラフィに供し、第二の逆相クロマトグラフィにかけた材料を得る工程;ならびに
i)該第二の逆相クロマトグラフィにかけた材料を第三の逆相クロマトグラフィに供し、純粋なインスリンを得る工程、
を包含する、方法。 - 前記逆相クロマトグラフィ工程が逆相マトリクスの使用を含む、請求項78に記載の方法。
- 前記逆相マトリクスがC4またはC18逆相マトリクスである、請求項79に記載の方法。
- 前記インスリンおよび前記修飾インスリン前駆体が、それぞれ哺乳動物インスリンおよび修飾哺乳動物インスリン前駆体である、請求項78に記載の方法。
- 前記哺乳動物インスリンおよび前記修飾哺乳動物インスリン前駆体が、それぞれヒトインスリンおよび修飾ヒトインスリン前駆体、ウシインスリンおよび修飾ウシインスリン前駆体、ブタインスリンおよび修飾ブタインスリン前駆体、ヒツジインスリンおよび修飾ヒツジインスリン前駆体、ヤギインスリンおよび修飾ヤギインスリン前駆体、またはげっ歯類インスリンおよび修飾げっ歯類インスリン前駆体である、請求項81に記載の方法。
- 前記哺乳動物インスリンおよび前記修飾哺乳動物インスリン前駆体が、それぞれヒトインスリンおよび修飾ヒトインスリン前駆体である、請求項82に記載の方法。
- 前記非ヒトトランスジェニック哺乳動物がウシ種である、請求項78に記載の方法。
- 前記非ヒトトランスジェニック哺乳動物が、ブタ、ヒツジ、ヤギまたはげっ歯類である、請求項78に記載の方法。
- 前記修飾インスリン前駆体が、前記非ヒトトランスジェニック動物において低血糖を引き起こさない、請求項78に記載の方法。
- 前記修飾インスリン前駆体が修飾Cペプチドを含む、請求項86に記載の方法。
- 前記修飾Cペプチドが天然に存在するプロインスリンには通常に見出されないアミノ酸を含む、請求項87に記載の方法。
- 前記修飾Cペプチドが、以下の3アミノ酸:Ala−Ala−Lysを含む、請求項88に記載の方法。
- 前記修飾インスリン前駆体が修飾B鎖をさらに含む、請求項87に記載の方法。
- 前記修飾B鎖が、天然に存在するB鎖のC末端アミノ酸以外は全て含む、請求項90に記載の方法。
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US92909507P | 2007-06-13 | 2007-06-13 | |
| US92909807P | 2007-06-13 | 2007-06-13 | |
| PCT/US2008/007400 WO2008156670A1 (en) | 2007-06-13 | 2008-06-13 | Process for producing exogenous protein in the milk of transgenic mammals |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2010528678A true JP2010528678A (ja) | 2010-08-26 |
Family
ID=40156522
Family Applications (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2010512197A Withdrawn JP2010528678A (ja) | 2007-06-13 | 2008-06-13 | トランスジェニック哺乳動物の乳中に外因性タンパク質を産生させるための方法 |
| JP2010512195A Withdrawn JP2010528677A (ja) | 2007-06-13 | 2008-06-13 | 乳中に外因性タンパク質を産生するトランスジェニック哺乳動物 |
Family Applications After (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2010512195A Withdrawn JP2010528677A (ja) | 2007-06-13 | 2008-06-13 | 乳中に外因性タンパク質を産生するトランスジェニック哺乳動物 |
Country Status (11)
| Country | Link |
|---|---|
| US (2) | US20090187999A1 (ja) |
| EP (2) | EP2061895A1 (ja) |
| JP (2) | JP2010528678A (ja) |
| CN (2) | CN101755054A (ja) |
| AU (2) | AU2008266995A1 (ja) |
| BR (1) | BRPI0811390A2 (ja) |
| CA (2) | CA2690564A1 (ja) |
| CO (2) | CO6300794A2 (ja) |
| MX (2) | MX2009013371A (ja) |
| RU (2) | RU2010100910A (ja) |
| WO (2) | WO2008156668A1 (ja) |
Families Citing this family (8)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CA2766571A1 (en) * | 2009-07-09 | 2011-02-24 | Biocon Limited | A preparative non-linear gradient based chromatographic method and purified products thereof |
| CN102816819B (zh) * | 2012-08-13 | 2014-10-29 | 山东阿华生物药业有限公司 | 提高人胰岛素前体融合蛋白酶切转换成b30缺苏氨酸人胰岛素产率的方法 |
| EP2956003A2 (en) * | 2013-02-13 | 2015-12-23 | Laboratoire Français du Fractionnement et des Biotechnologies | Proteins with modified glycosylation and methods of production thereof |
| KR20160002713A (ko) | 2013-02-13 | 2016-01-08 | 라보라토이레 프란카이즈 듀 프락티온네먼트 에트 데스 바이오테크놀로지스 | 고도로 갈락토실화된 항-tnf-알파 항체 및 이의 용도 |
| WO2016080399A1 (ja) | 2014-11-20 | 2016-05-26 | 国立大学法人京都大学 | 哺乳動物の標的ゲノム領域にdnaをノックインする方法及び細胞 |
| FR3038517B1 (fr) | 2015-07-06 | 2020-02-28 | Laboratoire Francais Du Fractionnement Et Des Biotechnologies | Utilisation de fragments fc modifies en immunotherapie |
| CN105219774B (zh) * | 2015-10-10 | 2019-04-30 | 广西大学 | 猪胰岛素特异性表达启动子pip2及其应用 |
| CN117327681B (zh) * | 2022-12-31 | 2024-06-18 | 义翘神州(泰州)科技有限公司 | 促进哺乳动物细胞表达蛋白正确折叠的分子伴侣质粒及其应用 |
Family Cites Families (13)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US4654324A (en) * | 1981-08-27 | 1987-03-31 | Eli Lilly And Company | Human proinsulin pharmaceutical formulations |
| US5366894A (en) * | 1986-06-30 | 1994-11-22 | Pharmaceutical Proteins Limited | Peptide production |
| US5633076A (en) * | 1989-12-01 | 1997-05-27 | Pharming Bv | Method of producing a transgenic bovine or transgenic bovine embryo |
| US5831141A (en) * | 1991-01-11 | 1998-11-03 | United States Of America As Represented By The Department Of Health And Human Services | Expression of a heterologous polypeptide in mammary tissue of transgenic non-human mammals using a long whey acidic protein promoter |
| US6011197A (en) * | 1997-03-06 | 2000-01-04 | Infigen, Inc. | Method of cloning bovines using reprogrammed non-embryonic bovine cells |
| CN1058972C (zh) * | 1997-08-15 | 2000-11-29 | 中国农业大学 | 用动物乳房生产人的生长激素 |
| US6451527B1 (en) * | 1997-08-29 | 2002-09-17 | Selective Genetics, Inc. | Methods using genetic package display for selecting internalizing ligands for gene delivery |
| US20030005468A1 (en) * | 1998-06-19 | 2003-01-02 | Meade Harry M. | Methods and vectors for improving nucleic acid expression |
| EP1090132A1 (en) * | 1998-06-26 | 2001-04-11 | PPL Therapeutics (Scotland) Limited | Methods for production of recombinant polypeptides |
| JP2003511048A (ja) * | 1999-10-14 | 2003-03-25 | ジェンジム トランスジェニックス コーポレイション | 遺伝子導入された動物中において標的分子を産生する方法および該標的分子を精製する方法 |
| US7105314B2 (en) * | 2001-04-02 | 2006-09-12 | Novo Nordisk A/S | Method for making human insulin precursors |
| CN1930287A (zh) * | 2003-09-30 | 2007-03-14 | 斯特林贝尔德生物技术北美公司 | 在奶中产生外源蛋白的转基因哺乳动物的制造方法以及因此所产生的转基因哺乳动物 |
| CA2540667A1 (en) * | 2003-09-30 | 2005-04-14 | Sterrenbeld Biotechnologie North America, Inc. | A process for producing exogenous protein in the milk of trangenic mammals and a process for purifying proteins therefrom |
-
2008
- 2008-06-13 JP JP2010512197A patent/JP2010528678A/ja not_active Withdrawn
- 2008-06-13 CN CN200880022856A patent/CN101755054A/zh active Pending
- 2008-06-13 RU RU2010100910/10A patent/RU2010100910A/ru unknown
- 2008-06-13 AU AU2008266995A patent/AU2008266995A1/en not_active Abandoned
- 2008-06-13 US US12/138,529 patent/US20090187999A1/en not_active Abandoned
- 2008-06-13 EP EP08768438A patent/EP2061895A1/en not_active Withdrawn
- 2008-06-13 MX MX2009013371A patent/MX2009013371A/es not_active Application Discontinuation
- 2008-06-13 CA CA2690564A patent/CA2690564A1/en not_active Abandoned
- 2008-06-13 CA CA2690565A patent/CA2690565A1/en not_active Abandoned
- 2008-06-13 EP EP08768440A patent/EP2061896A1/en not_active Withdrawn
- 2008-06-13 CN CN200880022998.8A patent/CN101802210A/zh active Pending
- 2008-06-13 US US12/138,526 patent/US20090228999A1/en not_active Abandoned
- 2008-06-13 WO PCT/US2008/007398 patent/WO2008156668A1/en not_active Ceased
- 2008-06-13 JP JP2010512195A patent/JP2010528677A/ja not_active Withdrawn
- 2008-06-13 WO PCT/US2008/007400 patent/WO2008156670A1/en not_active Ceased
- 2008-06-13 MX MX2009013421A patent/MX2009013421A/es not_active Application Discontinuation
- 2008-06-13 AU AU2008266993A patent/AU2008266993A1/en not_active Abandoned
- 2008-06-13 BR BRPI0811390-4A2A patent/BRPI0811390A2/pt not_active IP Right Cessation
- 2008-06-13 RU RU2010100911/10A patent/RU2010100911A/ru unknown
-
2010
- 2010-01-13 CO CO10002774A patent/CO6300794A2/es not_active Application Discontinuation
- 2010-01-13 CO CO10002779A patent/CO6300796A2/es not_active Application Discontinuation
Also Published As
| Publication number | Publication date |
|---|---|
| CN101802210A (zh) | 2010-08-11 |
| EP2061896A1 (en) | 2009-05-27 |
| MX2009013421A (es) | 2010-03-22 |
| WO2008156668A1 (en) | 2008-12-24 |
| WO2008156670A1 (en) | 2008-12-24 |
| US20090187999A1 (en) | 2009-07-23 |
| US20090228999A1 (en) | 2009-09-10 |
| CA2690565A1 (en) | 2008-12-24 |
| MX2009013371A (es) | 2010-01-25 |
| RU2010100910A (ru) | 2011-07-20 |
| AU2008266993A1 (en) | 2008-12-24 |
| CN101755054A (zh) | 2010-06-23 |
| AU2008266995A1 (en) | 2008-12-24 |
| CO6300794A2 (es) | 2011-07-21 |
| JP2010528677A (ja) | 2010-08-26 |
| RU2010100911A (ru) | 2011-07-20 |
| EP2061895A1 (en) | 2009-05-27 |
| CO6300796A2 (es) | 2011-07-21 |
| BRPI0811390A2 (pt) | 2014-12-30 |
| CA2690564A1 (en) | 2008-12-24 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| AU2004278747B2 (en) | A process for producing exogenous protein in the milk of transgenic mammals and a process for purifying proteins therefrom | |
| JP2010528677A (ja) | 乳中に外因性タンパク質を産生するトランスジェニック哺乳動物 | |
| US20130131317A1 (en) | Expression of secreted human alpha-fetoprotein in transgenic animals | |
| CN1402781A (zh) | 克隆和转基因哺乳动物的生产方法 | |
| RU2360002C2 (ru) | Способ продуцирования экзогенного белка в молоке трансгенных млекопитающих и способ очистки белков из молока | |
| DEYKIN et al. | RESEARCH RESULTS IN PHARMACOLOGY | |
| MXPA06003480A (en) | A process of making transgenic mammals that produce exogenous proteins in milk and transgenic mammals produced thereby | |
| HK1121342A (en) | Expression of secreted human alpha-fetoprotein in transgenic animals |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A300 | Application deemed to be withdrawn because no request for examination was validly filed |
Free format text: JAPANESE INTERMEDIATE CODE: A300 Effective date: 20110906 |