JP2016521701A - 成熟インスリンポリペプチドを作製するための方法 - Google Patents

成熟インスリンポリペプチドを作製するための方法 Download PDF

Info

Publication number
JP2016521701A
JP2016521701A JP2016517616A JP2016517616A JP2016521701A JP 2016521701 A JP2016521701 A JP 2016521701A JP 2016517616 A JP2016517616 A JP 2016517616A JP 2016517616 A JP2016517616 A JP 2016517616A JP 2016521701 A JP2016521701 A JP 2016521701A
Authority
JP
Japan
Prior art keywords
insulin
precursor
human insulin
analog
amino acid
Prior art date
Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
Withdrawn
Application number
JP2016517616A
Other languages
English (en)
Inventor
フランティセク・ヒューバレック
アネッテ・フロスト・ペッターソン
トーマス・ベーグルム・ケルセン
アッサー・スロス・アンデルセン
Current Assignee (The listed assignees may be inaccurate. Google has not performed a legal analysis and makes no representation or warranty as to the accuracy of the list.)
Novo Nordisk AS
Original Assignee
Novo Nordisk AS
Priority date (The priority date is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the date listed.)
Filing date
Publication date
Application filed by Novo Nordisk AS filed Critical Novo Nordisk AS
Publication of JP2016521701A publication Critical patent/JP2016521701A/ja
Withdrawn legal-status Critical Current

Links

Images

Classifications

    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
    • C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
    • C07K14/575—Hormones
    • C07K14/62—Insulins
    • C—CHEMISTRY; METALLURGY
    • C07—ORGANIC CHEMISTRY
    • C07K—PEPTIDES
    • C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
    • C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
    • C07K14/575—Hormones
    • C07K14/62—Insulins
    • C07K14/625—Extraction from natural sources

Landscapes

  • Health & Medical Sciences (AREA)
  • Chemical & Material Sciences (AREA)
  • Organic Chemistry (AREA)
  • Life Sciences & Earth Sciences (AREA)
  • Biochemistry (AREA)
  • Genetics & Genomics (AREA)
  • Gastroenterology & Hepatology (AREA)
  • Toxicology (AREA)
  • Endocrinology (AREA)
  • Biophysics (AREA)
  • General Health & Medical Sciences (AREA)
  • Zoology (AREA)
  • Medicinal Chemistry (AREA)
  • Molecular Biology (AREA)
  • Proteomics, Peptides & Aminoacids (AREA)
  • Diabetes (AREA)
  • Preparation Of Compounds By Using Micro-Organisms (AREA)
  • Peptides Or Proteins (AREA)
  • Micro-Organisms Or Cultivation Processes Thereof (AREA)

Abstract

本発明は、ヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を培養することによって成熟ヒトインスリン又はそのアナログを作製するための改善された方法に関し、その前駆体は小さい連結ペプチドを含む。

Description

本発明は、成熟インスリンポリペプチドを作製する組換えタンパク質発現及びタンパク質化学に関する。
インスリンは、ランゲルハンス島のベータ細胞において産生されるポリペプチドホルモンである。活性なインスリン分子は、二つのジスルフィド架橋によって連結されるB鎖及びA鎖からなる二鎖分子である。インスリンは、C-ペプチド鎖がB鎖中のC末端アミノ酸残基とA鎖中のN末端アミノ酸残基とで連結する、B-C-A構造を有する前駆体分子プロインスリンとして合成される。成熟二鎖インスリンは、A鎖とB鎖の接合部に位置する塩基性アミノ酸残基の対でのC-ペプチドのインビボ切断によって形成される。A鎖及びB鎖は、それぞれ、A7及びB7並びにA20及びB19のCys残基の間の二つのジスルフィド架橋によって一緒に維持される。更に、生物学的に活性なインスリン分子は、A6位及びA11位におけるCys残基の間に内部ジスルフィド架橋を有する。
多くの方法が、遺伝子改変宿主細胞、例えば、大腸菌(E.coli)及び酵母において、インスリン及びその前駆体を産生することを記載してきた。酵母プロセスの大部分において、天然C-ペプチド又は改変されたC-ペプチドのいずれかを伴うインスリンの前駆体が発現され、酵母細胞から分泌される。WO90/10075は、C-ペプチドAAKを有するインスリン前駆体を開示している。WO01/49742は、芳香族アミノ酸残基を含むC-ペプチドを有するインスリン前駆体を開示している。WO02/079251は、Gly残基を含むC-ペプチドを有するインスリン前駆体を開示している。WO02/079250は、Pro残基を含むC-ペプチドを有するインスリン前駆体を開示している。WO02/100887は、グリコシル化部位を含むC-ペプチドを有するインスリン前駆体を開示している。WO2008/037735は、kex2p切断部位を含むC-ペプチドを有するインスリン前駆体を開示している。WO2011/099028は、ピキア種(Pichia sp)において産生されるインスリン又はインスリンアナログ前駆体分子のO-グリコシル化レベルを減少させるための方法を開示している。
成熟インスリン又はインスリンアナログ産物が直接的に得られない場合、それは、C-ペプチド及びおそらくN末端伸長の切断による一つ以上の続いて起こるインビトロ酵素ステップにおいて得られる。これらの酵素ステップは、時間がかかり、しばしばコストがかかる傾向があり、その上、付加的な関連する不純物(すなわち、成熟したインスリンポリペプチドに類似する不純物)が導入されるリスクを有する。インスリンポリペプチドの酵母発現の別の挑戦は、インスリンポリペプチドのO-グリコシル化である。O-グリコシル化インスリンポリペプチドも、関連する不純物である。全ての関連する不純物に共通することは、それらの除去が技術的に困難なので、市販の精製プロセスにおける除去が高価であることである。これは、追加の精製ステップ(典型的には、クロマトグラフィーステップ)の必要性又は経済的に好ましくない条件で操作されるクロマトグラフィーステップの必要性に起因する。このようなクロマトグラフィーステップは、長期間のサイクル時間、低いカラム負荷、又は関連する不純物の結果として更に低い収率で操作される可能性がある。
医薬産業において、インスリン製品はインスリンポリペプチドの誘導体によって構成されることが増加しており、このような薬物製品は非注射送達用であることが増加している。それ故、インスリン市場は、既に競争的な市場であり、投薬ごとにより多くのインスリンポリペプチドを必要とする製品に向かっており、インスリンポリペプチドを作製するための、より費用効果の高い方法が必要とされている。
WO90/10075 WO01/49742 WO02/079251 WO02/079250 WO02/100887 WO2008/037735 WO2011/099028 WO95/34666 US5,726,038 US4,870,00 US4,546,082 US4,870,008 US5,395,922 US5,795,746 US5,162,498 WO98/32867 US4,882,279 US4,879,231 WO00/04172 欧州特許第765,395A号 米国特許明細書第4,343,898号 米国特許明細書第4,916,212号 US5,714,377 EP171,142 米国特許第5,871,957号
Egel-Mitaniら(1990) YEAST 6:127〜137頁 Thorner (1981), The Molecular Biology of the Yeast Saccharomyces cerevisiae, Strathernら編, 143〜180頁, Cold Spring Harbor Laboratory, NY Beaucageら(1981) Tetrahedron Letters 22:1859〜1869頁 Matthesら(1984) EMBO Journal 3:801〜805頁 Russell(1985) Gene 40:125〜130頁 Alberら(1982) J. Mol. Appl. Genet. 1:419〜434頁 Hawksworthら, Ainsworth and Bisby's Dictionary of The Fungi, 第8版, 1995, CAB International, University Press, Cambridge, UK Skinner, F.A., Passmore, S.M.及びDavenport, R.R.編, Soc. App. Bacteriol. Symposium Series No.9, 1980 Biochemistry and Genetics of Yeast, Bacil, M., Horecker, B.J.及びStopani, A.O.M.編, 第2版, 1987 The Yeasts, Rose, A.H.及びHarrison, J.S.編, 第2版, 1987 The Molecular Biology of the Yeast Saccharomyces, Strathernら編, 1981 Gleesonら, J. Gen. Microbiol. 132, 1986, 3459〜3465頁 Gentzschら, FEBS Lett 1995, 18, 128〜130頁 Girrbach及びStrahl, J. Biol. Chem. 2003, 278, 12554〜62頁 Shermanら(1982) Methods in Yeast Genetics, Cold Spring Harbor Laboratory Sambrookら(1989) Molecular Cloning, Cold Spring Harbor Laboratory Press Kjeldsenら, 1999. Biotechnol. Appl. Biochem 29, 79〜86頁 Kjeldsenら1999b. J. Biotechnology, 75, 195〜208頁 Markussenら(1987), 「Peptides 1986」 (Theodoropoulos, D.編), 189〜194頁, Walter de Gruyter & Co., Berlin
したがって、低減したインスリン前駆体分子のO-グリコシル化を有する産業用プロセスにおいて、真菌によってヒトインスリン又はそのアナログを作製する必要がある。有効且つ単純なプロセスによるC-ペプチドのタンパク分解性切除に適合する、インスリン前駆体並びにインスリン前駆体のより高い収率を有する産業用プロセスも必要とされている。
本発明は、形質転換された微生物(特に、酵母)において発現される場合に、高収率のインスリン前駆体分子をもたらす、新規連結ペプチド(C-ペプチド)を提供する。新規連結ペプチドはまた、真菌(例えば、酵母)において発現された場合に、一般に低レベルのO-グリコシル化を促進する。O-グリコシル化について減少した能力を有する真菌株において新規インスリン前駆体を発現させることにより、O-グリコシル化される発現インスリン前駆体の比率が更に減少する。このようなインスリン前駆体を、次に、一つ以上の適切な周知の転換ステップによって、ヒトインスリン、desB30ヒトインスリン、他のインスリンアナログ又は特定のインスリン誘導体に転換することができる。
本発明の第一の態様によると、配列Z-B-X-Y-Aを有する、ヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を培養することによって成熟ヒトインスリン又はそのアナログを作製するための方法が提供され、式中、
- Zは、任意選択の伸長配列であり、
- Bは、ヒトインスリン又はそのアナログのB鎖であり、
- Xは、X1M、EA、AE、AD、DA、及びAPから選択される配列であり、ここで、X1は、1〜3アミノ酸残基を含む配列であり、
- Yは、K又はRであり、
- Aは、ヒトインスリン又はそのアナログのA鎖である。
本発明の第二の態様によると、配列Z-B-X-Y-Aを含むインスリン前駆体が提供され、式中、
- Zは、任意選択の伸長配列であり、
- Bは、ヒトインスリン又はそのアナログのB鎖であり、
- Xは、X1M、EA、AE、AD、DA、及びAPから選択される配列であり、ここで、X1は、1〜3アミノ酸残基を含む配列であり、
- Yは、K又はRであり、
- Aは、ヒトインスリン又はそのアナログのA鎖である。
本発明の第三の態様によると、真菌細胞における発現の間のヒトインスリン又はヒトインスリンのアナログの前駆体のO-グリコシル化を減少させるための方法であって、(i)配列Z-B-X-Y-Aを有する、ヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程を含む方法が提供され、式中、
- Zは、任意選択の伸長配列であり、
- Bは、ヒトインスリン又はそのアナログのB鎖であり、
- Xは、X1M、EA、AE、AD、DA、及びAPから選択される配列であり、ここで、X1は、1〜3アミノ酸残基を含む配列であり、
- Yは、K又はRであり、
- Aは、ヒトインスリン又はそのアナログのA鎖である。
本発明の第四の態様によると、真菌細胞における発現の間のヒトインスリン又はヒトインスリンのアナログの前駆体の収率を増加させるための方法であって、(i)配列Z-B-X-Y-Aを有する、ヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程を含む方法が提供され、式中、
- Zは、任意選択の伸長配列であり、
- Bは、ヒトインスリン又はそのアナログのB鎖であり、
- Xは、X1M、EA、AE、AD、DA、及びAPから選択される配列であり、ここで、X1は、1〜3アミノ酸残基を含む配列であり、
- Yは、K又はRであり、
- Aは、ヒトインスリン又はそのアナログのA鎖である。
本発明の方法は、以前に記載された、真菌細胞を培養することによって成熟ヒトインスリン又はそのアナログを作製する方法に対して多くの利点を提供する。例えば、本発明によるインスリン前駆体は、非常に高収率で真菌において発現されることが見出された。驚くべきことに、この新規インスリン前駆体は、O-グリコシル化インスリン前駆体の形態における関連する不純物の低量化をもたらすことも見出された。O-グリコシル化インスリン前駆体の低量化を、異なるタンパク質マンノシルトランスフェラーゼ(Protein Mannosyl Transferasse)ノックアウト株を用いて、更に2〜4倍減少させることができることが更に発見された。それ故、本発明の目的は、真菌において高い発現レベルを示し、発現されるインスリン前駆体が低レベルのO-グリコシル化を有する、インスリン前駆体を提供することである。高い発現収率は重要であるので、O-グリコシル化レベルをインスリン前駆体におけるC-ペプチドの選択並びにPMTモジュレート(変異)株の使用の両方によって減少し得ることは驚くべき知見である。
より低いO-グリコシル化により、あらゆるO-グリコシル化形態が最終的に排除されなければならない、上流の発酵プロセスの最適化と同時に、下流の転換及び精製プロセスの同時最適化が可能となる。本発明のインスリン前駆体は、アクロモバクターライチカス(Acromobacter lyticus)プロテアーゼ(ALP)等のプロテアーゼによる切断によって効率的な成熟化が更に促進される。それ故、この発酵収率、O-グリコシル化、及びALP切断の最適化の組み合わせの結果、非常に高い発酵収率、非常に高い精製カラムへの充填、及び、更に現在使用される方法からの精製ステップの排除並びに合理化したALP切断反応ステップが可能となる。したがって、結果として全体のプロセスは、製造する植物の能力を増加させ、同時にインスリンポリペプチドの産生に必要とされる原材料の量を減少させる。これらの結果の両方により、インスリンポリペプチドのコストダウンがもたらされる。
ヒトインスリン又はヒトインスリンのアナログの前駆体を発現させるための宿主細胞として用いられる真菌細胞は、O-グリコシル化についてのその能力を減少させる少なくとも一つの遺伝子改変を有し得る。本発明の連結ペプチドX-Yは、真菌細胞から排出されるインスリン前駆体の低O-グリコシル化を引き起こす。しかしながら、C-ペプチドのいくつかのものに関しては、O-グリコシル化について減少した能力を有する真菌細胞における発現によってO-グリコシル化の更に低いレベルが得られる。一実施形態において、O-グリコシル化についての真菌細胞能力を減少させる前記遺伝子改変は、PMT1又はPMT2の遺伝子内の少なくとも一つの遺伝子改変である。
本発明の一実施形態において、配列Z-B-X-Y-Aにおける連結ペプチドX-Yは、X1M-Yであり、ここで、X1は1〜3アミノ酸残基を含む配列である。したがって、一態様において、本発明は、A鎖及びB鎖から切断可能である連結ペプチド(X-Y)を含み、少なくとも一つのM及びA鎖と連結ペプチドの間のペプチド結合の切断を可能とする切断部位を含むインスリン前駆体に関し、ここで、一つのMは、前記切断部位に対してすぐN末端にある。
別の態様において、本発明は、A鎖及びB鎖から切断可能である連結ペプチド(C-ペプチド)を含み、その少なくとも一つがM残基である3〜5アミノ酸残基からなるインスリン前駆体に関する。
本発明は、特許請求するインスリン前駆体をコードする、ポリヌクレオチド配列にも関する。更なる態様において、本発明は、このようなポリヌクレオチド配列を含有するベクター及びこのようなポリヌクレオチド配列又はベクターを含有する宿主細胞に関する。
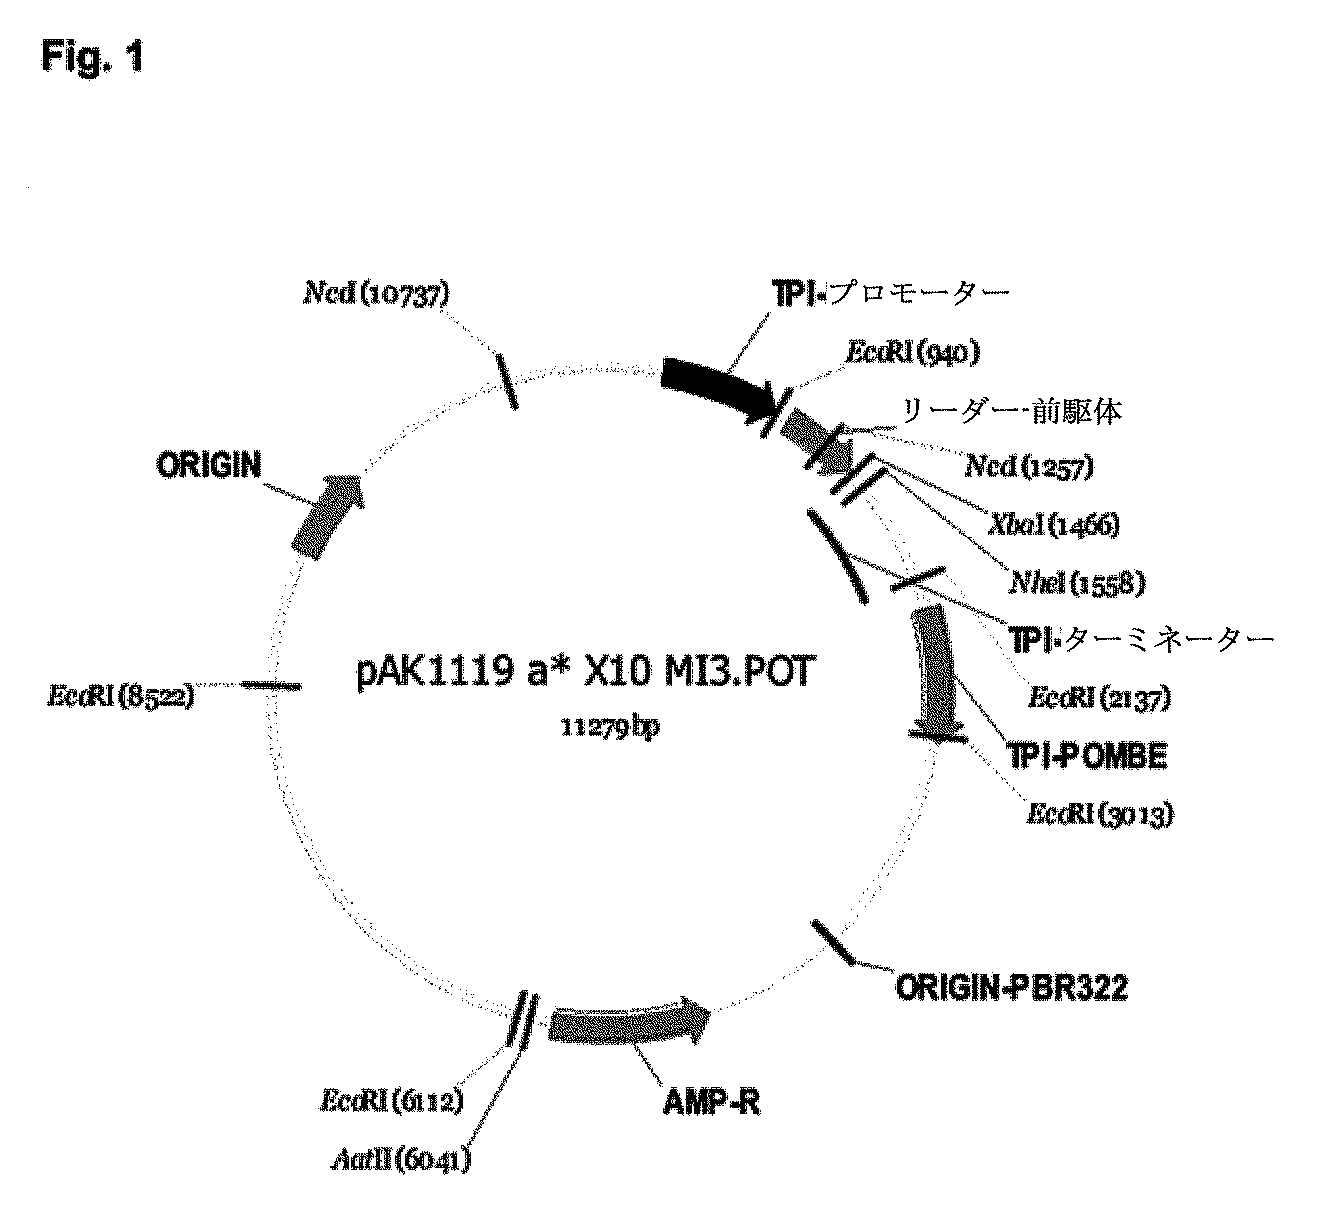
アルファ*-リーダー(BglII-部位なし)(配列番号1)-EEGEPK(配列番号2)-インスリン前駆体融合タンパク質を発現するpAK1119S.セレビシエ(S.cerevisiae、出芽酵母、サッカロマイセス・セレビシエ)発現プラスミドを示す図である。 pAK1119DNA発現カセットのヌクレオチド配列(配列番号5)及びコード融合タンパク質(pAK1119のアルファ*-リーダー-EEGEPK-インスリン前駆体(配列番号6))の推定アミノ酸を示す図である。 アルファ2-リーダー-EEGEPK-B(1-29)-AlaXLys-A(1-21)前駆体を発現するpAK3768S.セレビシエ発現プラスミドを示す図である。 pAK3768DNA発現カセットのヌクレオチド配列(配列番号9)及びコード融合タンパク質(pAK3768のアルファ2-リーダー-EEGEPK-インスリン前駆体(配列番号10))の推定アミノ酸を示す図である。 TA39-リーダー-EEGEPK-B(1-29)-AlaMetLys-A(1-21)前駆体を発現するpAK4053S.セレビシエ発現プラスミドを示す図である。 pAK4053DNA発現カセットのヌクレオチド配列(配列番号11)及びコード融合タンパク質(pAK4053のTA39-リーダー-EEGEPK-インスリン前駆体(配列番号12))の推定アミノ酸を示す図である。
本発明の第一の態様によると、配列Z-B-X-Y-Aを有する、ヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を培養することによって成熟ヒトインスリン又はそのアナログを作製するための方法が提供され、式中、
- Zは、任意選択の伸長配列であり、
- Bは、ヒトインスリン又はそのアナログのB鎖であり、
- Xは、X1M、EA、AE、AD、DA、及びAPから選択される配列であり、ここで、X1は、1〜3アミノ酸残基を含む配列であり、
- Yは、K又はRであり、
- Aは、ヒトインスリン又はそのアナログのA鎖である。
本明細書で用いられる用語「インスリンアナログ」は、改変されたヒトインスリンを意味し、ここで前記インスリンの一つ以上のアミノ酸残基が他のアミノ酸残基で置換されており、及び/又は一つ以上のアミノ酸残基が前記インスリンから欠失している及び/又は一つ以上のアミノ酸残基が前記インスリンに付加及び/又は挿入されている。インスリンアナログは、ヒトインスリンと比較して、典型的には約7つの突然変異を超えて含まない、より典型的には5つ以下、更により典型的には多くとも3つの突然変異を含む。一つの実施形態において、インスリンアナログは、ヒトインスリンに比べて10未満のアミノ酸改変[置換、欠失、付加(挿入を含む)及びそれらの任意の組合せ]、或いはヒトインスリンに比べて9、8、7、6、5、4、3、2又は1未満の改変を含む。
前記インスリン分子における改変は、鎖(A又はB)、位置及びネイティブ(天然型の)のアミノ酸残基を置換するアミノ酸残基の一文字コードを指定することで表される。ここで、「A1」、「A2」及び「A3」等のような用語は、それぞれインスリンのA鎖における(N末端の終わりから数えて)1、2及び3位等におけるアミノ酸を示す。同様に、B1、B2及びB3等は、それぞれインスリンのB鎖における(N末端の終わりから数えて)1、2及び3位等におけるアミノ酸を示す。アミノ酸の一文字コードを用いて、A21A、B28K及びB29Pのような用語は、A21位におけるアミノ酸がAであり、28位及び29位におけるアミノ酸がそれぞれリシン及びプロリンであることを指定する。
したがって、例えばB28K、B29Pヒトインスリンは、B鎖における28位のアミノ酸がリシンで置換され、B鎖における29位のアミノ酸がプロリンで置換され、A鎖がA(1-21)である、ヒトインスリンのアナログである。
「desB30」又は「B(1-29)」によって、B30アミノ酸を欠いた天然インスリンB鎖B(1-30)が意味され、「A(1-21)」は天然インスリンA鎖を意味する。
本明細書において、用語「A(0)」又は「B(0)」は、それぞれA1又はB1に対してN末端のアミノ酸の位置を示す。用語「A(-1)」又は「B(-1)」は、それぞれA(0)又はB(0)に対してN末端の最初のアミノ酸の位置を示す。したがって、A(-2)及びB(-2)は、それぞれA(-1)及びB(-1)に対してN末端のアミノ酸の位置を示す、A(-3)及びB(-3)は、それぞれA(-2)及びB(-2)に対してN末端のアミノ酸の位置を示す、以下同様。用語A22又はB31は、それぞれA21又はB30に対してC末端のアミノ酸の位置を示す。用語A23又はB32は、それぞれA22又はB31に対してC末端の最初のアミノ酸の位置を示す。したがって、A24及びB33は、それぞれA23及びB32に対してC末端のアミノ酸の位置を示す、以下同様。
本発明の一実施形態において、インスリン前駆体はヒトインスリン前駆体である、すなわち配列Z-B-X-Y-AにおいてAはA(1-21)であり、BはB(1-30)である。別の実施形態において、インスリン前駆体はdesB30ヒトインスリン前駆体である、すなわちAはA(1-21)であり、BはB(1-29)である。本発明の更なる別の実施形態において、インスリン前駆体がB28Dヒトインスリン(アスパルト)、B28K,B29Pヒトインスリン(リスプロ)、B3K,B29Eヒトインスリン(グルリジン)、又はA21G,B31R,B32Rヒトインスリン(グラルギン)の前駆体であるように、A及びBが選択される構造をインスリン前駆体は有する。
本明細書において、用語「アミノ酸残基」は、形式上、カルボキシル基から一つのヒドロキシル基が除去されている、及び/又は、形式上、アミノ基から一つの水素原子が除去されているアミノ酸である。本テキスト内において、アミノ酸残基は、IUPAC命名法に従ってそれらの三文字略語又はそれらの一文字略語に従って呼ばれる。例えば、Gly及びG両方はアミノ酸残基グリシンを指定し、Lys及びK両方はアミノ酸残基リシンを指定する。
インスリンアナログの例は、B鎖の28位におけるProがAsp、Lys、Leu、Val、又はAlaで置換される及び/又はB29位でのLysがPro、Glu又はAspで置換されるようなものである。更に、B3位でのAsnは、Thr、Lys、Gln、Glu又はAspで置換されていてもよい。A21位におけるアミノ酸残基は、Glyで置換されていてもよい。A鎖及び/又はB鎖のC末端、例えばLysに一つ以上のアミノ酸が付加されていてもよい。B1位におけるアミノ酸は、Gluで置換されていてもよい。B16位におけるアミノ酸は、Glu又はHisで置換されていてもよい。インスリンアナログの更なる例は、欠失アナログであり、例えば、ヒトインスリンにおけるB30アミノ酸が欠失したアナログ(desB30ヒトインスリン)、ヒトインスリンのB1アミノ酸が欠失したインスリンアナログ(desB1ヒトインスリン)、desB28-B30ヒトインスリン及びdesB27ヒトインスリンである。A鎖及び/又はB鎖にN末端伸長を有するインスリンアナログ並びにA鎖及び/又はB鎖がB鎖のC末端に二つのアルギニン残基が付加されている等のC末端伸長を有するインスリンアナログもインスリンアナログの例である。更なる例は、言及された突然変異の組合せを含むインスリンアナログである。A14位のアミノ酸がAsn、Gln、Glu、Arg、Asp、Gly又はHisであり、B25位のアミノ酸がHisであり、任意選択で一つ以上の付加的な突然変異を更に含むインスリンアナログは、インスリンアナログの更なる例である。A21位におけるアミノ酸残基がGlyであるヒトインスリンのインスリンアナログであって、インスリンアナログはC末端において二つのアルギニン残基で更に伸長されているものもまた、インスリンアナログの例である。
本明細書で用いられる「インスリン誘導体」によって、天然に存在するインスリン、或いは、例えば、インスリン骨格の一つ以上の位置に側鎖を導入すること、又はインスリンのアミノ酸残基の基を酸化若しくは還元すること、又は遊離のアミノ基若しくはヒドロキシル基をアシル化することによって、化学的に修飾されているインスリンアナログを意味すると理解される。インスリン誘導体の非限定的な例は、例えば、NεB29-テトラデカノイルdes(B30)ヒトインスリン、NεB29-リトコロイル-γ-グルタミルdes(B30)ヒトインスリン、NεB29-(Nα-(HOOC(CH2)14CO)-γ-Glu)des(B30)ヒトインスリン及びNεB29-(Nα-(HOOC(CH2)16CO)-γ-Glu)des(B30)ヒトインスリンである。
本明細書で用いられる「インスリン前駆体」は、一つ以上の引き続く化学的及び/又は酵素的プロセスによってヒトインスリン又はそのアナログに変換することができる単一鎖ポリペプチドを意味すると理解される。
「連結ペプチド」又は「C-ペプチド」によって、単鎖プロインスリン分子のB-C-Aポリペプチド配列の連結部分「C」が意味される。ヒトインスリン鎖において、C-ペプチドは、B鎖の30位とA鎖の1位を連結し、35アミノ酸長である。より小さいC-ペプチドの非限定的な例は、例えば、AAK、AAR及びDKAAKである。
本明細書で用いられる「成熟ヒトインスリン又はそのアナログ」は、インスリン活性を有し、正確なアミノ酸残基組成並びに天然インスリン分子と同じ構造上のコンホメーション、すなわち、A7-B7、A20-B19及びA6-A11位の間にジスルフィド架橋を伴う、二鎖インスリンを意味すると理解される。それ故、C-ペプチドを含むヒトインスリン又はそのアナログ前駆体は、少なくとも切除されて成熟ヒトインスリン又はそのアナログとしての資格を与えるC-ペプチドを有するであろう。成熟ヒトインスリン又はそのアナログの非限定的な例は、ヒトインスリン、DesB30ヒトインスリン及びB3K,B29Eヒトインスリンである。
本発明は、B鎖のC末端をA鎖のN末端と連結する新規C-ペプチドを特徴とし、これが真菌細胞における発現による収率を増加させる。収率増加は、公知のC-ペプチドを用いる発酵の消費される培養上清中のインスリン前駆体の濃度と比べた、消費される培養上清中に存在するインスリン前駆体の濃度によって評価される。
本発明の一実施形態において、配列Z-B-X-Y-AにおけるXは、EA、AE、AD、DA、及びAPから選択される。
本発明の別の実施形態において、XはX1Mであり、ここで、X1は1〜3アミノ酸残基を含む配列である。X1は、一つのアミノ酸残基、二つのアミノ酸残基又は三つのアミノ酸残基からなり得る。好ましくは、X1における全てのアミノ酸残基は、直鎖又は分岐鎖脂肪族である側鎖及びヒドロキシル基、カルボキシル基又はアミド基を有する側鎖を有するアミノ酸残基から選択される。一実施形態において、X1は、D、SDD、及びAから選択される。別の実施形態において、X1は、D、SDD、A、T、GD、TD、SD、ADD、DDA、N、S、GN、TS、DD、GT、GA、AD、GS、Q、ND、STD、DA、TN、SGD、TT、M、L、R、V、GDD、DTD、ST、I、TA、DGD、K、H、SS、TGD、E、TDD、G、AGD、AA、SA及びASから選択される。別の実施形態において、X1は、D、SDD、A、T、GD、TD、SD、ADD、DDA及びNから選択される。更なる別の実施形態において、X1は、S、GN、TS、DD、GT、GA、AD、GS、Q、ND、STD、DA、TN、SGD、TT、M、L、R及びVから選択される。別の実施形態において、X1は、GDD、DTD、ST、I、TA、DGD、K、H、SS、TGD、E、TDD、G、AGD、AA、SA及びASから選択される。更なる別の実施形態において、X1は、Pであるアミノ酸残基を含まない。更なる別の実施形態において、X1は、Cであるアミノ酸残基を含まない。更なる別の実施形態において、X1は、H、Y、W及びFから選択されるアミノ酸残基を含まない。更なる別の実施形態において、X1は、K及びRから選択されるアミノ酸残基を含まない。更なる別の実施形態において、X1は、P、C、K、R、H、Y、W、及びFから選択されるアミノ酸残基を含まない。したがって、一実施形態において、X1に存在する全てのアミノ酸は、G、A、V、L、I、M、Q、N、E、D、S及びTから選択される。
別の実施形態において、Xは、EA、AE、AD、DA、及びAPから選択される。
別の実施形態において、配列Z-B-X-Y-AにおけるYは、Kである。真菌細胞における発現により、YはRであることも可能となる。
更なる実施形態において、配列Z-B-X-Y-AにおけるX-Yは、SDDMK、DMK及びAMKから選択される。別の実施形態において、配列Z-B-X-Y-AにおけるX-Yは、SDDMK、SDMK、DMK及びAMKから選択される。更なる別の実施形態において、配列Z-B-X-Y-AにおけるX-Yは、SDDMR、SDMR、DMR及びAMRから選択される。
更なる実施形態において、配列Z-B-X-Y-AにおけるX-YはDMKであり、A及びBは前記インスリン前駆体がB28Dヒトインスリン(アスパルト)、すなわちAがA(1-21)及びBが28D-B(1-29)の前駆体であるように選択される。更なる実施形態において、配列Z-B-X-Y-AにおけるX-YはAMKであり、A及びBは前記インスリン前駆体がB28Dヒトインスリン(アスパルト)、すなわちAがA(1-21)及びBが28D-B(1-29)の前駆体であるように選択される。
本発明のインスリン前駆体は、配列Z-B-X-Y-Aにおいて、任意選択の伸長配列Zを含んでもよい。一実施形態において、Zは不在である、すなわちインスリン前駆体は配列B-X-Y-Aを有する。別の実施形態において、Zは配列Z1PKを有し、ここで、Z1は0〜10アミノ酸残基を有する配列である。一実施形態において、Zは、EEGEPKである。別の実施形態において、ZはEEAEPK、EEAEAEPK、EEAEAPK及びEEAEAEAPKから選択される。
本明細書で用いられる「POT」は、シゾサッカロミセス・ポンベ(Schizosaccharomyces pombe、分裂酵母、S.ポンベ)トリオースリン酸イソメラーゼ遺伝子を意味すると理解される。本明細書で用いられる「TPI1」は、サッカロマイセス・セレビシエ(Saccharomyces cerevisiae、出芽酵母)トリオースリン酸イソメラーゼ遺伝子を意味すると理解される。
本明細書で用いられる「リーダー配列」は、プレペプチド(シグナルペプチド)及びプロペプチドからなるアミノ酸配列を意味すると理解される。リーダー配列の非限定的な例は、例えば、S.セレビシエ由来のアルファ因子シグナルリーダー及びWO95/34666に記載の酵母についての合成リーダー配列である。
本明細書で用いられる「プレペプチド」は、タンパク質の前駆体形態のN末端配列として存在するシグナルペプチドを意味すると理解される。シグナルペプチドの機能は、異種タンパク質の小胞体への移行を促進させることである。シグナルペプチドは、このプロセスの過程で通常は切断除去される。シグナルペプチドは、前記タンパク質を産生する真菌生物に対して異種性又は同種性であってもよい。本発明のDNA構築物と共に使用し得る、いくつかのシグナルペプチドには、酵母アスパラギン酸プロテアーゼ3(YAP3)シグナルペプチド又は任意の機能的なアナログ(Egel-Mitaniら(1990) YEAST 6:127-137及びUS5,726,038)及びMFα1遺伝子のα因子シグナル(Thorner (1981), The Molecular Biology of the Yeast Saccharomyces cerevisiae, Strathernら編, 143〜180頁, Cold Spring Harbor Laboratory, NY及びUS4,870,00)が含まれる。
本明細書で用いられる「プロペプチド」は、ポリペプチド配列の機能によって、発現されたポリペプチドが小胞体からゴルジ体へと、更に培養培地への分泌に関連する分泌小胞へと方向付けられること(すなわち、ポリペプチドの細胞壁を横切った輸送又は少なくとも細胞膜を通した酵母細胞の細胞膜周辺腔への輸送)を可能にするポリペプチドを意味すると理解される。プロペプチドは、酵母α因子のプロペプチドであってもよい(US4,546,082及び4,870,008を参照されたい)。或いは、プロペプチドは合成プロペプチドであってもよく、つまり自然界には見出されないプロペプチドであってもよい。適切な合成プロペプチドは、US5,395,922;5,795,746;5,162,498及びWO98/32867に開示されたものである。プロペプチドは、好ましくは、Lys-Arg配列又はその任意の機能的なアナログ等のエンドペプチダーゼプロセッシング部位をC末端端に含有する。
本発明のポリヌクレオチド配列は、Beaucageら(1981) Tetrahedron Letters 22:1859〜1869頁によって記載された亜リン酸アミダイト法又はMatthesら(1984) EMBO Journal 3:801〜805頁によって記載された方法等の確立された標準方法によって合成により調製されてもよい。亜リン酸アミダイト法に従って、オリゴヌクレオチドを(例えば、自動DNAシンセサイザーにおいて)合成し、精製し、二本鎖化し、ライゲーションして合成DNA構築物を形成する。DNA構築物を調製する一様式は、ポリメラーゼ連鎖反応法(PCR)によるものである。
本発明のポリヌクレオチド配列はまた、ゲノム、cDNA、及び合成に由来する混合性のものであってもよい。例えば、リーダーペプチドをコードするゲノム又はcDNA配列はA鎖及びB鎖をコードするゲノム又はcDNA配列に連結されてもよく、その後にDNA配列はある部位で、周知の手順に基づいて相同的組換えのための所望のアミノ酸配列をコードする合成オリゴヌクレオチドを挿入することによって又は好ましくは所望の配列を適切なオリゴヌクレオチドを用いたPCRにより生成することによって、改変されてもよい。
本発明は、選択された微生物又は宿主細胞中で複製可能であり、本発明のインスリン前駆体又はインスリン前駆体アナログをコードするポリヌクレオチド配列を保有するベクターを包含する。組換えベクターは、自律的に複製するベクター、すなわち、染色体外の実体として存在し、その複製が染色体複製に非依存性であるベクターであり、例えばプラスミド、染色体外因子、ミニ染色体、又は人工染色体である。ベクターは、自己複製を保証するための任意の手段を含み得る。或いは、ベクターは、宿主細胞に導入された場合に、ゲノムに統合され、それが統合された染色体と共に複製されるベクターであってもよい。更に、宿主細胞のゲノムに導入される全DNAを一緒に含有する、単一ベクター若しくはプラスミド又は2以上のベクター若しくはプラスミド、或いはトランスポゾンが、使用されてもよい。ベクターは、直鎖状又は閉鎖環状のプラスミドであってもよく、好ましくは宿主細胞のゲノムへのベクターの安定的な統合又はゲノム非依存的に細胞におけるベクターの自律複製を可能とするエレメントを含有する。
好適な実施形態において、組換え発現ベクターは、酵母において複製することが可能なものである。酵母においてベクターを複製可能にする配列の例は、酵母プラスミド2μ複製遺伝子REP1-3及び複製起点である。
本発明のベクターは、好ましくは、形質転換した細胞の容易な選択を可能にする、一つ又は複数の選択可能なマーカーを含有する。選択可能なマーカーは、その産物が殺生剤又はウイルス抵抗性、重金属への抵抗性、栄養要求に対する原栄養体性、等を提供する遺伝子である。細菌性の選択可能なマーカーの例は、枯草菌(Bacillus subtilis)若しくはリケニホルミス菌(Bacillus licheniformis)に由来するdal遺伝子、又はアンピシリン、カナマイシン、クロラムフェニコール若しくはテトラサイクリン耐性等の抗生物質耐性を付与するマーカーである。糸状菌(filamentous fungal)宿主細胞における使用のための選択可能なマーカーは、amdS(アセトアミダーゼ)、argB(オルニチンカルバミルトランスフェラーゼ)、pyrG(オロチジン-5'-リン酸デカルボキシラーゼ)及びtrpC(アントラニル酸シンターゼ)を含む。酵母宿主細胞のための適切なマーカーの例は、ADE2、HIS3、LEU2、LYS2、MET3、TRP1、及びURA3である。酵母のための好適な選択可能なマーカーは、シゾサッカロミセス・ポンベ裂酵母TPI遺伝子である(Russell(1985) Gene 40:125〜130頁)。
ベクターにおいて、ポリヌクレオチド配列は、適切なプロモーター配列に作動可能に連結される。プロモーターは、選択された宿主細胞において転写活性を示す任意の核酸配列であってもよく、変異型、短縮型、及びハイブリッド型のプロモーターを含み、宿主細胞に対して同種性又は異種性のいずれかの細胞外又は細胞内ポリペプチドをコードする遺伝子から取得し得る。
細菌性の宿主細胞における転写を方向付けるための適切なプロモーターの例は、大腸菌lacオペロン、ストレプトマイセスセリカラー(Streptomyces coelicolor)アガラーゼ遺伝子(dagA)、枯草菌レバンスクラーゼ遺伝子(sacB)、リケニホルミス菌アルファ-アミラーゼ遺伝子(amyL)、バチルスステアロサーモファイラス(Bacillus stearothermophilus)マルトジェニックアミラーゼ遺伝子(amyM)、デンプン液化バチルス(Bacillus amyloliquefaciens)アルファ-アミラーゼ遺伝子(amyQ)、及びリケニホルミス菌ペニシリナーゼ遺伝子(penP)から取得されたプロモーターである。糸状菌宿主細胞における転写を方向付けるための適切なプロモーターの例は、コウジカビ(Aspergillus oryzae)TAKAアミラーゼ、リゾムコールミーヘイ(Rhizomucor miehei)アスパルティックプロテイナーゼ、アスペルギルスニガー(Aspergillus niger)中性アルファ-アミラーゼ、及びアスペルギルスニガー酸耐性アルファ-アミラーゼの遺伝子から取得されたプロモーターである。酵母宿主において、有用なプロモーターの例は、サッカロマイセス・セレビシエMFα1、TPI1、ADH、TDH3又はPGKプロモーターである。
本発明のポリヌクレオチド構築物はまた、典型的には適切なターミネーターに作動可能に連結される。酵母において、適切なターミネーターは、TPI1ターミネーターである(Alberら(1982) J. Mol. Appl. Genet. 1:419〜434頁)。
それぞれ本発明のポリヌクレオチド配列、プロモーター及びターミネーターのライゲーション並びにそれらの酵母複製に必要な情報を含有する適切な酵母ベクターへの挿入に使用される手順は、当業者に周知である。ベクターは、最初に本発明のインスリン前駆体又はインスリン前駆体アナログをコードする総DNA配列を含有するDNA構築物を調製すること、続いて、この断片を適切な発現ベクターに挿入すること、或いは個々の因子(例えば、シグナル、プロペプチド、ミニC-ペプチド、A及びB鎖)に関する遺伝情報を含有するDNA断片を連続的に挿入することのいずれか(続いてライゲーション)により構築されることが理解される。
本発明はまた、本発明のインスリン前駆体又はインスリン前駆体アナログをコードするポリヌクレオチド配列を含む、組換え宿主細胞に関する。このようなポリヌクレオチド配列を含むベクターは、そのベクターが、染色体統合体(chromosomal integrant)として又は自己複製する染色体外ベクターとして維持されるように宿主細胞に導入される。
本明細書で用いられる「宿主細胞」は、所望のポリペプチドの発現のため用いられる微生物を意味すると理解される。「宿主細胞」は、複製の間に生じる突然変異により親細胞と同一ではない親細胞の任意の子孫を包含する。
本発明のための適切な宿主細胞は、真菌細胞である。本明細書で用いられる「真菌」は、子嚢菌門、担子菌門、ツボカビ門、及び接合菌門(Hawksworthら, Ainsworth and Bisby's Dictionary of The Fungi, 第8版, 1995, CAB International, University Press, Cambridge, UKによって規定されるような)並びに卵菌門(Hawksworthら, 1995, supra, 171頁に引用されるような)並びに全ての栄養胞子形成真菌(mitosporic fungi)(Hawksworthら, 1995, supra)を含むと理解される。
一実施形態において、宿主細胞は、酵母細胞である。本明細書で用いられる「酵母」は、有子嚢胞子酵母(エンドミセス目)、担子胞子形成酵母(basidiosporogenous yeast)、及び不完全真菌(不完全酵母菌綱)に属する酵母を含む。有子嚢胞子酵母は、スペルモフトラ科(Spermophthoraceae)及びサッカロマイセス科(Saccharomycetaceae)に分けられる。後者は、シゾサッカロマイセス(Schizosaccharomycoideae)亜科[例えば、シゾサッカロマイセス(Schizosaccharomyces)属]、ナドソニオイデ亜科(Nadsonioideae)、リポミコイデアエ亜科(Lipomycoideae)、及びサッカロマイセス亜科(Saccharomycoideae)[例えば、ピキア属、クリベロマイセス属(Kluyveromyces)及びサッカロマイセス属]の四つの亜科から構成される。担子胞子形成酵母は、ロイコスポリジウム(Leucosporidim)、ロドスポリジウム(Rhodosporidium)、スポリジオボラス(Sporidiobolus)、フィロバシジウム(Filobasidium)、及びフィロバシジエラ(Filobasidiella)属を含む。不完全真菌に属する酵母は、スポロボロマイセス科[例えば、スポロボロマイセス(Sorobolomyces)属及びブレラ(Bullera)属]及びクリプトコックス科(例えば、カンジダ属)の二つの科に分けられる。酵母の分類は将来において変化し得るので、本発明の目的のために、酵母は、Biology and Activities of Yeast(Skinner, F.A., Passmore, S.M.及びDavenport, R.R.編, Soc. App. Bacteriol. Symposium Series No. 9, 1980)に記載のように規定される。酵母の生物学及び酵母遺伝学の操作は、当該技術分野において周知である(例えば、Biochemistry and Genetics of Yeast, Bacil, M., Horecker, B.J.及びStopani, A.O.M.編, 第2版, 1987; The Yeasts, Rose, A.H.及びHarrison, J.S.編, 第2版, 1987及びThe Molecular Biology of the Yeast Saccharomyces, Strathernら編, 1981を参照されたい)。
本発明の方法に使用される酵母宿主細胞は、培養において、大量の本発明のインスリン前駆体及びインスリン前駆体アナログを産生する任意の適切な酵母生物体であってもよい。
適切な酵母生物体の例は、カンジダ属、クリベロマイセス属、サッカロマイセス属、シゾサッカロマイセス属、ピキア属、ハンゼヌラ属(Hansenula)、及びヤロウイア属(Yarrowia)の種の細胞から選択される株である。一実施形態において、酵母宿主細胞は、サッカロマイセスカールスベルゲンシス(Saccharomyces carlsbergensis)、サッカロマイセス・セレビシエ(出芽酵母)、サッカロマイセスディアスタティクス(Saccharomyces diastaticus)、サッカロマイセスドウグラシー(Saccharomyces douglasii)、サッカロマイセスクルイベリ(Saccharomyces kluyveri)、サッカロマイセスノルベンシス(Saccharomyces norbensis)、サッカロマイセスオビフォルミス(Saccharomyces oviformis)、シゾサッカロミセス・ポンベ(分裂酵母)、サッカロマイセスウバルム(Sacchoromyces uvarum)、ピキアクルイベリ(Pichia kluyveri)、ヤロウイアリポリティカ(Yarrowia lipolytica)、カンジダユティリス(Candida utilis)、カンジダカカオイ(Candida cacaoi)、及びジオトリカムファメンタンス(Geotrichum fermentans)から選択される。他の有用な酵母宿主細胞は、クリベロマイセスラクティス(Kluyveromyces lactis)、クリベロマイセスフラギリス(Kluyveromyces fragilis)、ハンゼヌラポリモルファ(Hansenula polymorpha)、ピキアパストリス(Pichia pastoris)、ヤロウイアリポリティカ、シゾサッカロミセス・ポンベ(分裂酵母)、ウスティルゴメイリス(Ustilgo maylis)、カンジダマルトース(Candida maltose)、ピキアグイリエルモンデ(Pichia guillermondii)及びピキアメタノリオール(Pichia methanoliol)(Gleesonら, J. Gen. Microbiol. 132, 1986, 3459〜3465頁;US4,882,279及びUS4,879,231を参照されたい)である。酵母細胞の形質転換は、例えば、それ自体は既知の様式のプロトプラスト形成と続く形質転換とによって達成されてもよい。
一実施形態において、宿主細胞は、糸状菌細胞である。「糸状菌」は、細区分(subdivision) 真菌植物門及び卵菌門の全ての糸状形態を含む(Hawksworthら, 1995, supraによって規定されるような)。糸状菌宿主細胞は、アクレモニウム属(Acremonium)、コウジカビ属(Aspergillus)、フザリウム属(Fusarium)、フミコラ属(Humicola)、ムコール属(Mucor)、ミセリオフトラ属(Myceliophthora)、パンカビ属、アオカビ属、チエラビア属(Thielavia)、トリポクラジウム属(Tolypocladium)、及びトリコデルマ属からなる群から選択されてもよい。
インスリン前駆体を発現させるための宿主細胞は、好ましくは、任意の機能的な抗生物質耐性遺伝子から束縛されない細胞である。このような抗生物質耐性遺伝子は例えば大腸菌における初期クローニングステップの間に有用であるが、抗生物質耐性遺伝子は非機能的に作製することができる又は周知の手順によって宿主細胞から除去することができる(例えば、WO00/04172を参照されたい)。
本明細書で用いられる「培地」は、宿主細胞を培養する、真菌の成長及び産物形成を支持するための液体溶液を意味すると理解される。真菌に適切な培地は、例えば、YPD又はWO2008/037735に記載されているようなものである。培地は、少なくとも一つの炭素源、一つ又は幾つかの窒素源、カリウム、ナトリウム、マグネシウム、リン酸及び硫酸の塩を含む必須な塩、微量金属、水溶性ビタミン、並びに消泡剤、プロテアーゼインヒビター、安定化剤、リガンド及びインデューサーを含むが、それらに限定されないプロセスエイド(process aid)を含有する。典型的な炭素源は、例えば、単糖又は二糖である。典型的な窒素源は、例えば、アンモニア、尿素、アミノ酸、酵母抽出物、コーンスティープリカー(corn steep liquor)及び完全に又は部分的に加水分解されたタンパク質である。典型的な微量金属は、例えば、Fe、Zn、Mn、Cu、Mo及びH3BO3である。典型的な水溶性ビタミンは、例えば、ビオチン、パントテン酸、ナイアシン、チアミン、p-アミノ安息香酸、コリン、ピリドキシン、葉酸、リボフラビン及びアスコルビン酸である。
本明細書で用いられる「発酵」により、液体培地に浸漬される微生物を増殖させるため使用される無菌的なプロセスが意味されると理解される。発酵は、限定されないが、空気、酸素及びアンモニアからなる圧縮された無菌のガスの付加のための供給ラインを有する無菌的な撹拌タンクにおいて好ましくは行われる。発酵タンクは、pH、温度、圧力、撹拌率、溶存酸素レベル、液体量、気泡レベル、供給添加速度並びに添加される酸及び塩基の割合をモニターするためのセンサー及び装置を含有できる。更に、発酵タンクは、細胞密度のレベル、代謝産物及び産物の濃度を、それらの物理化学的な形態に関係なく、モニターするための光学的なデバイスを備えることができる。
発酵中に産生された所望の産物は、可溶性の細胞外物質として又は可溶性物質の形態において若しくは凝集物質を含む不溶性物質としてのいずれかの細胞内物質として存在する。発酵プロセスは、典型的には、100mL〜200.000Lの範囲の作業容量を有するタンク中で行われる。発酵プロセスを、バッチプロセス、フェッド-バッチプロセス、反復フェッド-バッチプロセス又は連続的なプロセスとして操作することができる。
分泌されたインスリン前駆体又はインスリンアナログ前駆体(その多くの比率は、正確にプロセスされた形態で培地に存在する)は、培地から従来の手順により回収され、この手順には酵母細胞を培地から遠心分離により分離すること、ヒトインスリン又はそのアナログの前駆体をイオン交換マトリックスにより又は逆相吸着マトリックスにより濾過又は捕獲すること、上清又は濾過物のタンパク性成分を塩(例えば、硫酸アンモニウム)により沈殿させること、続いて様々なクロマトグラフィー手順(例えば、イオン交換クロマトグラフィー、アフィニティークロマトグラフィー)により精製すること、等が含まれる。
本発明のヒトインスリン又はそのアナログの前駆体は、米国特許第5,395,922号及び欧州特許第765,395A号に記載されるように、N末端アミノ酸残基伸長を伴って発現されてもよい。その伸長は、本発明のヒトインスリン又はそのアナログの前駆体に発酵中に安定的に付着することが見出され、インスリン前駆体又はインスリン前駆体アナログのN末端をDPAP等の酵母プロテアーゼのタンパク分解活性に対して保護する。ヒトインスリン又はそのアナログの前駆体におけるN末端伸長の存在は、タンパク質の化学的なプロセシングの間のN末端アミノ基の保護としても働き得る、すなわちBOC(t-ブチル-オキシカルボニル)又は類似する保護基についての代替として働き得る。N末端伸長は、末端伸長がLys残基で切断除去されるように、塩基性アミノ酸(例えば、Lys)について特異的なタンパク質分解酵素により、回収されるインスリン前駆体又はインスリン前駆体アナログから除去されてもよい。このようなタンパク分解酵素の例は、トリプシン及びアクロモバクターライチカスプロテアーゼである。
培養培地に分泌され回収した後、本発明のインスリン前駆体又はインスリン前駆体アナログは、種々のインビトロ手順に供されて、存在可能なN末端伸長配列及びC-ペプチドが除去されて、インスリン又は所望のインスリンアナログが与えられる。このような方法は、参照により本明細書内に組み込まれる、米国特許明細書第4,343,898号又は第4,916,212号又はResearch Disclosure, September 1994/487に記載されているように、L-トレオニンエステルの存在下でトリプシン又はアクロモバクターライチカスプロテアーゼにより、続いてインスリン又はインスリンアナログのトレオニンエステルを塩基性又は酸性加水分解によりインスリン又はインスリンアナログに転換する、酵素転換を含む。
以下に記載されるように、合成C-ペプチドを有するインスリン前駆体又はインスリン前駆体アナログを構築した(実施例1)。
特許請求されるインスリン前駆体又はインスリンアナログ前駆体をコードするポリヌクレオチド配列を含有するサッカロマイセス・セレビシエ発現プラスミドを、PCRによって構築し、S.セレビシエ宿主細胞を形質転換するのに使用した。インスリンアナログ等の発現される産物の量を、yAK1220、すなわちアルファリーダーを有する前駆体EEAEAEAPK-(B(1-29)-AAK-A(1-21)における発現から関連する対照レベルのパーセンテージとして測定した。本発明の新規C-ペプチドは300%までの収率増加をもたらし、それらはO-グリコシル化レベルにおける全般的な減少を引き起こした。また、新規C-ペプチドを含むインスリン前駆体は、アクロモバクターライチカスプロテアーゼ等によってC-ペプチドの良好な切除を示す。
本発明によるインスリン前駆体を切断するため使用される場合に、アクロモバクターライチカスプロテアーゼの切断効率は、単純なアッセイによって以下のように決定され得る:インスリン前駆体の適切な水溶液がA.ライチカスプロテアーゼに好ましいpH及び温度でインキュベートされ、試料は時間が経てば反応混合物から取り出される。試料が取り出されしだい、酵素活性が不活化される。所望のタイムスパンをカバーする全ての試料を収集した後、対応する成熟インスリンポリペプチドの濃度がHPLC分析等によって測定される。時間の関数として成熟インスリンポリペプチドの濃度を表すことにより、反応の進行が示される。同一の反応条件下で切断される異なるインスリン前駆体について、このような反応トレースを比較することにより、A.ライチカスプロテアーゼの作用によって成熟される能力に基づいてインスリン前駆体のランク付けが可能となる。類似する手順を、インスリン前駆体の対応する成熟インスリンポリペプチドへの転換について選択し得る他のプロテアーゼに適用することができる。
本発明の新規C-ペプチドはまた、真菌細胞における発現の間のヒトインスリン又はそのアナログの前駆体のO-グリコシル化の減少を示す。本発明によるヒトインスリン又はそのアナログの前駆体それ自体が、真菌細胞において成熟ヒトインスリン又はそのアナログを作製するための改善された方法に使用することができる。O-グリコシル化について減少した能力を有する真菌細胞において本発明によるヒトインスリン又はそのアナログの前駆体を発現させることにより、前記前駆体の改善された収率が維持され得、同時に、発現の間にO-グリコシル化される前記前駆体分子の割合を更に減少させる。
タンパク質O-マンノシルトランスフェラーゼ(PMT)は、真菌において必須のタンパク質修飾であるO-マンノシルグリカンの組立を開始させる。PMTは真菌において保存されており、PMTファミリーはタンパク質基質特異性において異なるPMT1、PMT2及びPMT4サブファミリーに系統的に分類される。タンパク質O-マンノシルトランスフェラーゼPmt1p及びPmt2pは、マンノシル残基をDolichylリン酸-D-マンノースから転移することによって、酵母の小胞体中でタンパク質中のセリン及びスレオニン残基のO-グリコシル化を触媒している(Gentzschら, FEBS Lett 1995, 18, 128〜130頁)。サッカロマイセス・セレビシエにおいて並びに多くの他の真菌において、PMTファミリーは、高度に重複性であり、PMT1/PMT2及びPMT4サブファミリーメンバーの同時欠失のみが致死的である(Girrbach及びStrahl, J. Biol. Chem. 2003, 278, 12554〜62頁)。US5,714,377は、PMT1/PMT2改変から減少したO-グリコシル化能力を有する真菌細胞が、なお生存可能であり、産業上の発酵条件において特徴的な良好な成長を示すことを記載する。
本発明は、更に以下の非限定的な実施形態によって記載される:
1.配列Z-B-X-Y-Aを含むインスリン前駆体であって、式中、
- Zは、任意選択の伸長配列であり、
- Bは、ヒトインスリン又はそのアナログのB鎖であり、
- Xは、X1M、EA、AE、AD、DA、AP、AW及びLAから選択される配列であり、ここで、X1は、1〜3アミノ酸残基を含む配列であり、
- Yは、K又はRであり、
- Aは、ヒトインスリン又はそのアナログのA鎖である、インスリン前駆体。
2.Xが、X1M、EA、AE、AD、DA、及びAPから選択される配列であり、ここで、X1が、1〜3アミノ酸残基を含む配列である、 実施形態1に記載のインスリン前駆体。
3.Xが、X1Mである、実施形態1又は2に記載のインスリン前駆体。
4.X1が、D、SDD、A、T、GD、TD、SD、ADD、DDA、N、S、GN、TS、DD、GT、GA、AD、GS、Q、ND、STD、DA、TN、SGD、TT、M、L、R、V、GDD、DTD、ST、I、TA、DGD、K、H、SS、TGD、E、TDD、G、AGD、AA、SA及びASから選択される、実施形態3に記載のインスリン前駆体。
5.X1が、D、SDD、A、T、GD、TD、SD、ADD、DDA及びNから選択される、実施形態1〜4のいずれかに記載のインスリン前駆体。
6.X1が、D、SDD及びAから選択される、実施形態5に記載のインスリン前駆体。
7.X1が、S、GN、TS、DD、GT、GA、AD、GS、Q、ND、STD、DA、TN、SGD、TT、M、L、R及びVから選択される、実施形態1〜4のいずれかに記載のインスリン前駆体。
8.X1が、GDD、DTD、ST、I、TA、DGD、K、H、SS、TGD、E、TDD、G、AGD、AA、SA及びASから選択される、実施形態1〜4のいずれかに記載のインスリン前駆体。
9.X1における全てのアミノ酸残基が、直鎖又は分岐鎖脂肪族であり、ヒドロキシル基、カルボキシル基又はアミド基を有する側鎖を有するアミノ酸残基から選択される、実施形態1〜8のいずれかに記載のインスリン前駆体。
10.X1が、Pであるアミノ酸残基を含まない、実施形態1〜9のいずれかに記載のインスリン前駆体。
11.X1が、Cであるアミノ酸残基を含まない、実施形態1〜10のいずれかに記載のインスリン前駆体。
12.X1が、H、Y、W及びFから選択されるアミノ酸残基を含まない、実施形態1〜11のいずれかに記載のインスリン前駆体。
13.X1が、K及びRから選択されるアミノ酸残基を含まない、実施形態1〜12のいずれかに記載のインスリン前駆体。
14.X1が、P、C、K、R、H、Y、W及びFから選択されるアミノ酸残基を含まない、実施形態1〜13のいずれかに記載のインスリン前駆体。
15.X1における全てのアミノ酸残基が、G、A、V、L、I、M、Q、N、E、D、S及びTから選択される、実施形態1〜14のいずれかに記載のインスリン前駆体。
16.Xが、EA、AE、AD、DA、AP、AW、及びLAから選択される、実施形態1又は2に記載のインスリン前駆体。
17.Xが、EA、AE、AD、DA及びAPから選択される、実施形態16に記載のインスリン前駆体。
18.X1が、一つのアミノ酸残基からなる、実施形態1〜15のいずれかに記載のインスリン前駆体。
19.X1が、二つのアミノ酸残基からなる、実施形態1〜15のいずれかに記載のインスリン前駆体。
20.X1が、三つのアミノ酸残基からなる、実施形態1〜15のいずれかに記載のインスリン前駆体。
21.Yが、Kである、実施形態1〜20のいずれかに記載のインスリン前駆体。
22.Yが、Rである、実施形態1〜20のいずれかに記載のインスリン前駆体。
23.X-Yが、AMK、DMK、SDDMK及びSDMKから選択される、実施形態1〜21のいずれかに記載のインスリン前駆体。
24.X-Yが、AMR、DMR、SDDMR及びSDMRから選択される、実施形態1〜20のいずれかに記載のインスリン前駆体。
25.ヒトインスリン前駆体である、すなわちAがA(1-21)であり、BがB(1-30)である、実施形態1〜24のいずれかに記載のインスリン前駆体。
26.desB30ヒトインスリン前駆体である、すなわちAがA(1-21)であり、BがB(1-29)である、実施形態1〜24のいずれかに記載のインスリン前駆体。
27.前記インスリン前駆体が、B28Dヒトインスリン(アスパルト)、B28K,B29Pヒトインスリン(リスプロ)、B3K,B29Eヒトインスリン(グルリジン)、又はA21G,B31R,B32Rヒトインスリン(グラルギン)であるように、A及びBが選択される、実施形態1〜24のいずれかに記載のインスリン前駆体。
28.Zが、不在である、実施形態1〜27のいずれかに記載のインスリン前駆体。
29.Zが、約3〜約20アミノ酸残基からなるペプチドである、実施形態1〜27のいずれかに記載のインスリン前駆体。
30.Zが、約5〜約15アミノ酸残基からなるペプチドである、実施形態29に記載のインスリン前駆体。
31.ZのC末端が、EPK又はAPKである、実施形態1〜27及び実施形態29〜30のいずれかに記載のインスリン前駆体。
32.Zが配列Z1PKを有し、ここで、Z1が0〜10アミノ酸残基を有する配列である、 実施形態1〜27及び実施形態29〜30のいずれかに記載のインスリン前駆体。
33.Z1が、Eである少なくとも二つのアミノ酸残基を含む、実施形態32に記載のインスリン前駆体。
34.Z1が、Aである少なくとも二つのアミノ酸残基を含む、実施形態32又は33に記載のインスリン前駆体。
35.Z1が、EAである少なくとも一つの部分配列を含む、実施形態32〜34のいずれかに記載のインスリン前駆体。
36.Zが、EEGEPKである、実施形態29に記載のインスリン前駆体。
37.Zが、EEAEPK、EEAEAEPK、EEAEAPK及びEEAEAEAPKから選択される、実施形態29に記載のインスリン前駆体。
38.成熟ヒトインスリン又はそのアナログを作製するための方法であって、(i)実施形態1〜37のいずれかに記載のヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程;及び(ii)発現した前駆体を単離する工程を含む方法。
39.真菌細胞における発現の間のヒトインスリン又はヒトインスリンのアナログの前駆体のO-グリコシル化を減少させるための方法であって、(i)実施形態1〜37のいずれかに記載のヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程を含む方法。
40.真菌細胞における発現の間のヒトインスリン又はヒトインスリンのアナログの前駆体の収率を増加させるための方法であって、(i)実施形態1〜37のいずれかに記載のヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程を含む方法。
41.前記真菌細胞が、O-グリコシル化についてのその能力を減少させる少なくとも一つの遺伝子改変を有する、実施形態38〜40のいずれかに記載の方法。
42.対応する未改変遺伝子を保有する真菌細胞と比較して、タンパク質O-マンノシルトランスフェラーゼ1(PMT1)によるアルファリーダーを伴って発現される場合に、前記真菌細胞が、そのdes-B30ヒトインスリン前駆体EEAEAEAPK-B(1-29)-AAK-A(1-21)のO-グリコシル化についての能力を減少させる少なくとも一つの遺伝子改変を保有する、実施形態41に記載の方法。
43.対応する未改変遺伝子を保有する真菌細胞と比較して、タンパク質O-マンノシルトランスフェラーゼ2(PMT2)によるアルファリーダーを伴って発現される場合に、前記真菌細胞が、そのdes-B30ヒトインスリン前駆体EEAEAEAPK-B(1-29)-AAK-A(1-21)のO-グリコシル化についての能力を減少させる少なくとも一つの遺伝子改変を保有する、実施形態41に記載の方法。
44.O-グリコシル化についての前記能力が、少なくとも2倍減少される、実施形態41〜43のいずれかに記載の方法。
45.O-グリコシル化についての前記能力が、少なくとも4倍減少される、実施形態41〜44のいずれかに記載の方法。
46.前記少なくとも一つの遺伝子改変が、PMT1又はPMT2のコード領域に位置する、実施形態41〜45のいずれかに記載の方法。
47.前記真菌細胞が、O-グリコシル化についてのその能力を減少させる、PMT1又はPMT2の遺伝子内の少なくとも一つの遺伝子改変を保有する、実施形態41〜45のいずれかに記載の方法。
48.前記少なくとも一つの遺伝子改変が、PMT1若しくはPMT2の発現及び/又は転写調節を担う又はそれに関与する領域に位置する、実施形態41〜45のいずれかに記載の方法。
49.前記真菌細胞におけるPMT1及びPMT2遺伝子が両方欠失する、実施形態41〜48のいずれかに記載の方法。
50.ヒトインスリン又はヒトインスリンのアナログの前駆体をコードする前記DNA配列が、リーダー配列を含む、実施形態38〜49のいずれかに記載の方法。
51.前記リーダー配列が、アルファ-因子シグナルリーダー、アルファ2、アルファ4、LA19及びTA39からなる群から選択される、実施形態50に記載の方法。
52.前記真菌細胞が、酵母である、実施形態38〜51のいずれかに記載の方法。
53.前記酵母が、サッカロマイセス・セレビシエ(出芽酵母)である、実施形態52に記載の方法。
54.前記酵母が、ピキアパストリスである、実施形態52に記載の方法。
55.前記酵母が、ハンゼヌラポリモルファである、実施形態52に記載の方法。
56.実施形態1〜37のいずれかに記載のヒトインスリン又はヒトインスリンのアナログの前駆体をコードするポリヌクレオチド配列。
57.実施形態56に記載のポリヌクレオチド配列を含む発現ベクター。
58.実施形態57に記載のベクターで形質転換された宿主細胞。
本発明は、いかなる点でも特許請求される発明の範囲を限定すると理解されない以下の実施例において更に詳細に記載される。添付される図面は、本発明の明細書及び記載と一体としてみなされる。引用される全ての参照は、その参照に記載される全てに関して、参照によって本明細書に具体的に組み込まれる。
一般的な手順
発現プラスミド
全ての発現プラスミドは、EP171,142に記載されるものと類似するC-POTタイプのものである。これらは、S.セレビシエにおけるプラスミド選択及び安定化の目的のため、シゾサッカロミセス・ポンベトリオースリン酸イソメラーゼ遺伝子(POT)を含有することにより特徴付けられる2μ-ベース発現ベクターである。プラスミドはまた、S.セレビシエトリオースリン酸イソメラーゼプロモーター及びターミネーターを含む(図1)。これらの配列は、以下を除き全ての配列が、プラスミドpKFN1003(WO90/10075に記載)における対応する配列と類似する:1)リーダー及びインスリン産物の融合タンパク質をコードするEcoRI-Xbal断片の配列並びに2)サイレント突然変異が導入されていて、発現ベクター中の2μ-領域においてNcoI-部位の除去をもたらしている。異なる融合タンパク質のクローニングを促進するため、MFα1プレ-プロリーダーをコードするDNA配列は、NcoI部位が導入されるように変更されて(図2を参照されたい)、MFα1*プレ-プロリーダーと呼ばれる。したがって、NcoI-Xbal断片は、所望のインスリン構築物をコードするNcoI-Xbal断片によって単純に置き換えられる。このようなNcoI-Xbal断片は、標準的な技術により合成オリゴヌクレオチド及びPCRを用いて合成し得る。アルファリーダーに加えて、以下の実施例に記載されるように、他のリーダーを使用することができる。
酵母形質転換
酵母形質転換体を、宿主株 サッカロマイセス・セレビシエ株MT663の形質転換によって調製した。酵母株MT663(MATa/MATα pep4-3/pep4-3 HIS4/his4 Δtpi1::LEU2/Δtpi1::LEU2 Cir')を、WO92/11378の出願に関連して、ドイツ微生物細胞培養コレクション(Deutsche Sammlung von Mikroorganismen und Zellkulturen)に寄託し、受託番号DSM6278が付与された。
MT663を、YPGGE(1%Bacto酵母抽出物、2% Bactoペプトン、2%ガラクトース、1%EtOH、2%グリセロール)で、O.D.600nmが0.2になるまで成長させた。100mlの培養物を、遠心分離で収穫し、10mlの水で洗浄し、再遠心分離し、10mlの溶液(1Mソルビトール、25mM Na2EDTA pH=8.0及び6.7mg/mlジチオスレイトールを含有)中に再懸濁した。懸濁液を30℃で15分間インキュベートし、遠心分離し、細胞を1.2 Mソルビトール、10mM Na2EDTA, 0.1Mクエン酸ナトリウム、pH= 5.8、及び2mg NovozymC3234を含有する溶液10mlに再懸濁した。懸濁液を30℃で30分間インキュベートし、細胞を遠心分離で収集し、10mlの1.2Mソルビトール及び10mlのCAS [1.2Mソルビトール、10mM CaCl2、10mM Tris HCl(Tris=Tris(ヒドロキシメチル1)-アミノメタン)pH=7.5]中で洗浄し、2mlのCAS中に再懸濁させた。形質転換に関して、1mlのCAS-懸濁細胞をおよそ0.1μgのプラスミドDNAと混合し、室温で15分間放置した。1mlの(20%ポリエチレングリコール4000、10mM CaCl2、10mM Tris HCl、pH=7.5)を添加し、混合物を更に30分間室温で放置した。混合物を遠心分離し、ペレットを0.1mlのSOS(1.2Mソルビトール、50% YPGGE、6.7mM CaCl2)に再懸濁し、30℃で2時間インキュベートした。懸濁液を次に遠心分離し、ペレットを0.5mlの1.2Mソルビトールに再懸濁した。52℃で、6mlの上層寒天[2%グルコース、プラス2.5%寒天を含有する、Shermanら(1982) Methods in Yeast Genetics, Cold Spring Harbor LaboratoryのSC培地]を添加し、懸濁液を同じ寒天凝固させたソルビトール含有培地を含有するプレートの上部に注いだ。
酵母発酵
発現プラスミドで形質転換したサッカロマイセス・セレビシエ株MT663を、YPD培地で72h、30℃で成長させた。
グリコシル化レベルの定量
培養上清中のインスリン前駆体のグリコシル化レベルを、オートサンプラー(Model Acq-SM)、ポンプ(Model Acq-BSM)、カラムオーブン(Model Acq-SM)及びLTQ Orbitrap XL(Thermo Fisher社, Waltham, MA, USA)を備える検出器(Model Acq-TUV)からなるWaters Acquity UPLCシステム(Waters社, Milford, MA, USA)を連結するLC-MSシステムを用いて測定した。RP-HPLC分離を、0.1%ギ酸中のアセトニトリルの直線濃度勾配(0分の12%アセトニトリル、10分の15%アセトニトリル、27分の40%アセトニトリル、27.5分の90%アセトニトリル)を用いてCSH C18カラム(Waters社, 1x150mm)を用いて、0.1ml/分の流量で45℃で達成した。LTQ Orbitrapを、製造者の指示書に従って調整し、ESI供給源(4000VのSource Voltage、325℃のCapillary Temp、40のSheath Gas Flow、10のAux Gas Flow及び2のSweep Gas Flow)でポジティブモードで操作した。分解度30000のFull FTMSスキャン(m/z=900-2000)を使用してデータを収集した。
酵母培養物を遠心分離(5000rpm、5分)し、上清を直接的に又はA.ライチカスプロテアーゼでの処理後にLC-MSによって分析した。O-グリコシル化レベルを、o-グリコシル化インスリン種(モノ-o-グリコシル化種 M+162Da)の質量に対応する強度と非-グリコシル化種(M)の質量に対応する強度の比として逆重畳積分(デコンボリューション)後に得て、パーセントで表した。この方法を適用して、モノ-o-グリコシル化並びにマルチ-o-グリコシル化産物の濃度を得た。
(実施例1)
プレペプチド(シグナルペプチド)及びプロペプチドからなるリーダー配列に関連する、インスリン前駆体からなる、融合タンパク質をコードする合成遺伝子を、標準条件[Sambrookら(1989) Molecular Cloning, Cold Spring Harbor Laboratory Press]及びE.H.F.ポリメラーゼ(Boehringer Mannheim GmbH, Sandhoefer Strasse 116, Mannheim, Germany)のもとでPCRを用いて構築した。得られたDNA断片を、単離し、エンドヌクレアーゼで消化し、QIAquickゲル抽出キット(QIAGEN社, Hilden, Germany)を用いて精製した。DNAライゲーションについて標準方法を使用し、大腸菌細胞の形質転換をCaCl2法[Sambrookら(1989) supra]によって実施した。プラスミドを、Manual Perfectprep Plasmid 96 Vacキット(5 PRIME社, Hamburg, Germany and Gaithersburg, USA)及びepMotion 5075 VAC[(自動ピペッティングシステム), Eppendorf社, Hamburg, Germany]を用いて、形質転換された大腸菌細胞から精製した。ヌクレオチド配列を、鋳型としての精製二本鎖プラスミドDNAでeurofins MWG/operon(Ebersberg社, Germany)によって測定した。PCRについてのオリゴヌクレオチドプライマーは、DNA technology(Arhus社, Denmark)から得た。
様々な既知の酵母リーダー配列を使用し得るが、アルファ-リーダー又はTA39リーダー(Kjeldsenら, 1999. Biotechnol. Appl. Biochem 29, 79〜86頁)によってインスリン前駆体の分泌を促進させた。
図1及び図2に示されるように、アルファ*-リーダー(BglII-部位なし)(配列番号1)-EEGEPK(配列番号2)-インスリン前駆体融合タンパク質を発現するpAK1119S.セレビシエ発現プラスミドを、S.セレビシエ-大腸菌シャトルPOTプラスミド(米国特許第5,871,957号)に基づいて構築した。図1において、リーダー-前駆体は、リーダー-インスリン前駆体融合タンパク質をコードする融合タンパク質発現カセットを示す;TPI-プロモーターはS.セレビシエTPI1プロモーターであり、TPI-ターミネーターはS.セレビシエTPI1ターミネーターである;TPI-POMBEは、S.セレビシエにおける選択のため使用されるS.ポンベPOT遺伝子を示す;ORIGINは、2μmプラスミドに由来するS.セレビシエ複製起点を示す;AMP-Rは、アンピシリンに対して抵抗性を付与し、大腸菌において選択を促進するβ-ラクタマーゼ遺伝子を示す;並びにORIGIN-PBR322は、大腸菌複製起点を示す。
異なるミニC-ペプチドを有するリーダー配列及びインスリン前駆体の多くの融合タンパク質をコードするDNAを、以下に記載のように、適切なオリゴヌクレオチドをプライマーとしたPCRにより生成した。標準方法を使用して、以下の配置で、リーダー-インスリン前駆体-融合タンパク質をコードするDNA断片をCPOT発現ベクターにサブクローニングした:リーダー-Lys-Arg-スペーサー-インスリン前駆体(ここで、Lys-Argは、潜在的な二塩基性エンドプロテアーゼプロセシング部位であり、スペーサーは、N末端伸長である)。S.セレビシエKex2エンドプロテアーゼによって融合タンパク質のプロセシングを最適化するために、EEGEPK(配列番号2)等のスペーサーペプチド(N末端伸長)をコードするDNAを、リーダー及びインスリン前駆体をコードするDNAの間に挿入した(Kjeldsen, ら1999b. J. Biotechnology, 75, 195〜208頁)。しかしながら、スペーサーペプチドの存在は、必須ではない。LysB29及びGlyA1を連結する、ミニC-ペプチドを有する単一鎖のN末端で伸長したインスリン前駆体として、インスリン前駆体を分泌させた。インスリン前駆体の精製並びにN末端伸長及びミニC-ペプチドのタンパク分解性除去の後に、酵素-媒介性ペプチド転移によって、アミノ酸ThrB30をLysB29に付加して、ヒトインスリンを生成することができる[Markussenら(1987), 「Peptides 1986」(Theodoropoulos, D.編), 189〜194頁, Walter de Gruyter & Co., Berlin]。
合成ミニC-ペプチドの開発を、ミニC-ペプチド中のアミノ酸をコードする一つ以上のコドンのランダム化によって実施した。合成ミニC-ペプチドは、典型的にはC末端での酵素プロセシング部位(Lys)を特色としており、これによって合成ミニC-ペプチドの酵素除去が可能となる。ランダム化をドープしたオリゴヌクレオチドを用いて実施し、これによって合成ミニC-ペプチドの一つ以上のポジションでのコドン変化が導入された。典型的には、PCRに使用される二つのプライマー(オリゴヌクレオチド)の一つが、ドープされた。一般式Ala-Xaa-Lys(AXK)を有する合成ミニC-ペプチドを生成するのに使用されるランダム化合成ミニC-ペプチドを有するリーダー-インスリン前駆体のPCR生成に使用されるオリゴヌクレオチド対の例は、以下の通りである:
プライマーA(BglII部位を導入する):
5'-ATACAGGAATTCCATTCAAGATCTGTTCAAACAAGAAGA -3' (配列番号3)
プライマーB:
5'-AATCTTAGTTTCTAGACTAGTTGCAGTAGTTTTCCAATTGGTACAAGGAGCAGATGGAGGTACAGCATTGTTCGACAATACCCTTMNNAGCCTTAGGAGTGTAGAA -3' (配列番号4)
N=ACTG
M=AC
ポリメラーゼ連鎖反応
PCRを、典型的には、以下に指摘するように実施した:5μlプライマーA(20pmol/μl)、5μlプライマーB(20pmol/μl)、10μl 10XPCR緩衝液、8μl dNTPミックス、0.75μl E.H.F.酵素、鋳型として1μl pAK1119プラスミド(およそ0.2μg DNA)及び70.25μl蒸留水。
典型的には12サイクルを実施し、一サイクルは典型的には95℃を45秒;48℃を1分;72℃を1.5分であった。PCR混合物を続いて2%アガロースゲルに負荷し、電気泳動法を標準的な技術を用いて実施した。生じたDNA断片を、アガロースゲルから切り離し、QIAquickゲル抽出キットによって単離した。
図2は、PCRのための鋳型として使用したpAK1119DNA発現カセットのヌクレオチド配列(配列番号5)及びコード融合タンパク質[pAK1119のアルファ*-リーダー-EEGEPK-インスリン前駆体(配列番号6)]の推定アミノ酸を示す図である。
精製PCR DNA断片を、緩衝液EB(10mM Tris HCl pH 8.5、QIAquickゲル抽出キット中に用意されている)に溶解し、標準的な技術により適切な制限エンドヌクレアーゼ(例えばBglII及びXbaI)で消化した。BglII-XbaI DNA断片を、アガロース電気泳動法に供し、QIAquickゲル抽出キットを用いて精製した。
消化され、単離されたDNA断片を、T4 DNAリガーゼ及び標準的な条件を用いて適切なベクター(例えば、CPOTタイプの)と共にライゲーションした。ライゲーションミックスを、続いてコンピテント大腸菌株に形質転換し、続いてアンピシリン抵抗性で選択した。得られた大腸菌由来のプラスミドを、Manual Perfectprep Plasmid 96 Vacキット及びepMotion 5075 VAC(自動ピペッティングシステム)を用いて単離した。
プラスミドを、続いて、適切なS.セレビシエ宿主株、例えば、MT663(MATa/MATα pep4-3/pep4-3 HIS4/his4 tpi1::LEU2/tpi1::LEU2 Cir+)の形質転換のため使用した。個々の形質転換したS.セレビシエクローンを液体培養において成長させ、培養上清に分泌されたインスリン前駆体の量をRP-HPLCによって測定した。インスリン前駆体の増加量を分泌するS.セレビシエクローン由来の発現プラスミドの合成ミニC-ペプチドをコードするDNA配列を、次に決定した。続いて、同定された合成ミニC-ペプチド配列を、ランダム最適化の別のラウンドに供してもよい。
(実施例2〜84)
本発明によるインスリン前駆体及び発現構築物を、実施例1に記載の方法により生成した。表1は、インスリン前駆体及び対応する産生収率(対照YAK1220のパーセントとして表される)並びにO-グリコシル化レベルを示す。発酵を、30℃で72hを5mlのYPD中で全て行った。インスリン前駆体の収率を、培養上清のRP-HPLCによって測定し、B29残基がミニC-ペプチドAla-Ala-LysによってA1残基に連結されるリーダー-インスリン前駆体融合タンパク質を発現する対照株の収率と比べて表す。YAP3は、YAP3シグナル配列である。
新たに生成されたインスリン前駆体の一例は、pAK3768である。配列EEGEPK(配列番号2)はB鎖に対するN末端伸長であり、アルファ2はプレ-プロ配列
MRFPSIFTAVLFAASSALAAPVNTTTEDETAQIPAEAVIGYSDLEGDFDVAVLPFSNSTNNGLLFINTTIASIAAKEEGVSMAKR (配列番号7)
である。
別の例はpAK4053であり、ここでTA39はプレ-プロ配列
MKLKTVRSAVLSSLFASQVLGQPIDDTESNTTSVNLMADDTESRFATNTTLAGGLDVVNLISMAKR (配列番号8)
である。
実施例において使用される、更なるリーダー配列は、NcoI部位を有するアルファ-リーダー(配列番号13)及びBglII部位を有するアルファ4-リーダー(配列番号14)である。
表1は、インスリン前駆体を産生するための発酵に使用されるインスリン前駆体及び発現構築物を列挙する。各構築物を二又は三つの独立の発酵及び分析に供し、わずか非常に限定的な数の発酵を単一実験として行った。
Figure 2016521701
Figure 2016521701
Figure 2016521701
(実施例85)
更なるインスリン前駆体及び発現構築物を、実施例2〜84に記載されたのと同じ方法によって調製し、検査した。
表2は、インスリン前駆体を産生するための発酵に使用されるインスリン前駆体及び発現構築物を列挙する。表には、各構築物について二回又は三回の発酵によって測定された収率及びグリコシル化レベルも列挙される。
Figure 2016521701
(実施例86〜97)
K又はRである配列Z-B-X-Y-AにおけるYの効果を評価するため、多くのインスリン前駆体及び発現構築物を、実施例2〜84に記載されたのと同じ方法によって調製し、検査した。
表3は、インスリン前駆体を産生するための発酵に使用されるインスリン前駆体及び発現構築物を列挙する。表には、各構築物について二回又は三回の発酵によって測定された収率も列挙される。構造Z-B-X-Y-Aを有するヒトインスリン前駆体について、収率が、K(リシン)又はR(アルギニン)であるY-配列とは無関係に、任意のX-配列について同じレベルであることが観察される。
Figure 2016521701
表4は、インスリンアスパルト前駆体を産生するための発酵に使用されるインスリンアスパルト前駆体及び発現構築物を列挙する。表には、各構築物について二回又は三回の発酵によって測定された、ヒトインスリン前駆体と比べた収率も列挙される。構造Z-B-X-Y-Aを有するインスリンアスパルト前駆体について、収率が、K(リシン)又はR(アルギニン)であるY-配列とは無関係に、任意のX-配列について同じレベルであることが観察される。インスリンアスパルト前駆体の収率が「参照」ヒトインスリン前駆体に対して標準化され、したがって、1.0未満の相対的な収率を説明していることに注意されたい。
Figure 2016521701
(実施例98〜103)
インスリン前駆体を、PMT1又はPMT2の遺伝子が通常の酵母遺伝学的な方法によって破壊されている酵母株における発現によって、実施例2に記載されるようにO-グリコシル化のレベルについて検査し、酵母株MT663において発現されるインスリン前駆体と比較した。
発現構築物を実施例1の手順に従って作り、発酵及びO-グリコシル化分析を実施例2〜84に記載される手順に従って行った。
実施例98において発現されるDMKをC-ペプチドとして有するインスリン前駆体は、例えば表1中のYAK1220構築物(0.6%)等と比較して、0.29%のかなり低レベルのO-グリコシル化を示す。Δpmt1並びにΔpmt2株における正に同じインスリン前駆体の発現が、O-グリコシル化レベルを更に低下させることを実施例99及び100は実証する(すなわち、野性株における0.37%から、二つのタンパク質マンノシルトランスフェラーゼノックアウト株においてそれぞれ0.17%及び0.13%)。それ故、インスリン前駆体のO-グリコシル化は、二つの異なるタンパク質マンノシルトランスフェラーゼノックアウト株における発現によって2.2倍から2.9倍減少される。ここで、O-グリコシル化の減少はΔpmt1株において3.0倍及びΔpmt2株において2.4倍であるが、同じ結論はSDMK C-ペプチドを有する他のインスリン前駆体から得られる。
Figure 2016521701

Claims (15)

  1. 配列Z-B-X-Y-Aを含むインスリン前駆体であって、式中、
    - Zは、任意選択の伸長配列であり、
    - Bは、ヒトインスリン又はそのアナログのB鎖であり、
    - Xは、X1M、EA、AE、AD、DA、及びAPから選択される配列であり、ここで、X1は、1〜3アミノ酸残基を含む配列であり、
    - Yは、K又はRであり、
    - Aは、ヒトインスリン又はそのアナログのA鎖である、インスリン前駆体。
  2. Xが、X1Mである、請求項1に記載のインスリン前駆体。
  3. X1における全てのアミノ酸残基が、G、A、V、L、I、M、Q、N、E、D、S及びTから選択される、請求項2に記載のインスリン前駆体。
  4. X1が、D、SDD及びAから選択される、請求項2又は3に記載のインスリン前駆体。
  5. Xが、EA、AE、AD、DA、及びAPから選択される、請求項1に記載のインスリン前駆体。
  6. Yが、Kである、請求項1から5のいずれか一項に記載のインスリン前駆体。
  7. ヒトインスリン又はDesB30ヒトインスリンの前駆体であって、AがA(1-21)であり、BがB(1-30)又はB(1-29)である、請求項1から6のいずれか一項に記載のインスリン前駆体。
  8. 成熟ヒトインスリン又はそのアナログを作製するための方法であって、(i)請求項1から7のいずれか一項に記載のヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程;及び(ii)発現した前駆体を単離する工程を含む、方法。
  9. 真菌細胞中での発現の間のヒトインスリン又はヒトインスリンのアナログの前駆体のO-グリコシル化を減少させるための方法であって、(i)請求項1から7のいずれか一項に記載のヒトインスリン又はそのアナログの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程を含む、方法。
  10. 真菌細胞中での発現の間のヒトインスリン又はヒトインスリンのアナログの前駆体の収率を増加させるための方法であって、(i)請求項1から7のいずれか一項に記載のヒトインスリン又はそのアナログのインスリンの前駆体をコードするDNA配列を含む真菌細胞を、ヒトインスリン又はヒトインスリンのアナログの前記前駆体の発現に適した培養条件下で培養する工程を含む、方法。
  11. 前記真菌細胞が、O-グリコシル化の能力を減少させる、PMT1又はPMT2の遺伝子内の少なくとも一つの遺伝子改変を有する、請求項8から10のいずれか一項に記載の方法。
  12. 前記真菌細胞が、酵母である、請求項8から11のいずれか一項に記載の方法。
  13. 前記酵母が、サッカロマイセス・セレビシエ、ピキアパストリス及びハンゼヌラポリモルファから選択される、請求項12に記載の方法。
  14. 請求項1から7のいずれか一項に記載のヒトインスリン又はヒトインスリンのアナログの前駆体をコードするポリヌクレオチド配列を含む発現ベクター。
  15. 請求項14に記載のベクターで形質転換された宿主細胞。
JP2016517616A 2013-06-07 2014-06-06 成熟インスリンポリペプチドを作製するための方法 Withdrawn JP2016521701A (ja)

Applications Claiming Priority (5)

Application Number Priority Date Filing Date Title
EP13171029 2013-06-07
EP13171029.5 2013-06-07
US201361833613P 2013-06-11 2013-06-11
US61/833,613 2013-06-11
PCT/EP2014/061812 WO2014195452A1 (en) 2013-06-07 2014-06-06 Method for making mature insulin polypeptides

Publications (1)

Publication Number Publication Date
JP2016521701A true JP2016521701A (ja) 2016-07-25

Family

ID=48570007

Family Applications (1)

Application Number Title Priority Date Filing Date
JP2016517616A Withdrawn JP2016521701A (ja) 2013-06-07 2014-06-06 成熟インスリンポリペプチドを作製するための方法

Country Status (5)

Country Link
US (1) US20160115216A1 (ja)
EP (1) EP3004156A1 (ja)
JP (1) JP2016521701A (ja)
CN (1) CN105308067B (ja)
WO (1) WO2014195452A1 (ja)

Families Citing this family (9)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
RU2016103373A (ru) 2013-07-04 2017-08-10 Новартис Аг Клетки нитчатых грибов с дефицитом о-маннозилтрансферазы и способы их применения
AU2015293949B2 (en) 2014-07-21 2019-07-25 Teknologian Tutkimuskeskus Vtt Oy Production of glycoproteins with mammalian-like N-glycans in filamentous fungi
KR102007930B1 (ko) 2014-12-31 2019-08-06 주식회사 엘지화학 재조합 당단백질의 글리코실화 조절 방법
EP3303380B1 (en) 2015-06-02 2020-01-15 Novo Nordisk A/S Insulins with polar recombinant extensions
WO2017055582A1 (en) 2015-10-01 2017-04-06 Novo Nordisk A/S Protein conjugates
KR102682118B1 (ko) 2016-04-29 2024-07-08 주식회사유한양행 Ccl3 변이체를 포함하는 융합 단백질 및 이의 용도
JP2020513019A (ja) 2017-04-05 2020-04-30 ノヴォ ノルディスク アー/エス オリゴマー伸長インスリン−Fcコンジュゲート
TW202039437A (zh) 2018-12-11 2020-11-01 法商賽諾菲公司 肽黏合劑
CN109851667A (zh) * 2018-12-29 2019-06-07 江苏万邦医药科技有限公司 一种德谷胰岛素前体的纯化方法

Citations (3)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
WO2002079251A2 (en) * 2001-04-02 2002-10-10 Novo Nordisk A/S Method for making human insulin precursors
WO2005047508A1 (en) * 2003-11-14 2005-05-26 Novo Nordisk A/S Processes for making acylated insulin
JP2013519370A (ja) * 2010-02-10 2013-05-30 バイオコン リミテッド タンパク質のグリコシル化を低下させる方法、その産生方法およびタンパク質

Family Cites Families (22)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
US487000A (en) 1892-11-29 Shirt
IE50892B1 (en) 1980-02-11 1986-08-06 Novo Industri As Process for preparing insulin esters
US4546082A (en) 1982-06-17 1985-10-08 Regents Of The Univ. Of California E. coli/Saccharomyces cerevisiae plasmid cloning vector containing the alpha-factor gene for secretion and processing of hybrid proteins
US4870008A (en) 1983-08-12 1989-09-26 Chiron Corporation Secretory expression in eukaryotes
US5871957A (en) 1984-05-25 1999-02-16 Zymogenetics, Inc. Stable DNA constructs
AU600885B2 (en) 1984-05-25 1990-08-30 Zymogenetics Inc. Stable DNA constructs
DK58285D0 (da) 1984-05-30 1985-02-08 Novo Industri As Peptider samt fremstilling og anvendelse deraf
US4879231A (en) 1984-10-30 1989-11-07 Phillips Petroleum Company Transformation of yeasts of the genus pichia
US4882279A (en) 1985-10-25 1989-11-21 Phillips Petroleum Company Site selective genomic modification of yeast of the genus pichia
DK463887D0 (da) 1987-09-07 1987-09-07 Novo Industri As Gaerleader
DK105489D0 (da) 1989-03-03 1989-03-03 Novo Nordisk As Polypeptid
DK300090D0 (da) 1990-12-19 1990-12-19 Novo Nordisk As Fremgangsmaade til fremstilling af leadersekvenser
DE4244915C2 (de) 1992-08-14 1998-12-03 Widmar Prof Dr Tanner DNA-Moleküle codierend Proteine, die an der O-Glykosylierung von Proteinen beteiligt sind
DK82893D0 (da) 1993-07-08 1993-07-08 Novo Nordisk As Peptid
US5639642A (en) 1994-06-16 1997-06-17 Novo Nordisk A/S Synthetic leader peptide sequences
ZA954983B (en) 1994-06-17 1996-02-14 Novo Nordisk As N-terminally extended proteins expressed in yeast
WO1998032867A1 (en) 1997-01-24 1998-07-30 Novo Nordisk A/S Synthetic leader peptide sequences
RU2238323C2 (ru) 1998-07-16 2004-10-20 Ново Нордиск А/С Способ получения белков в трансформированных дрожжевых клетках
RU2283846C2 (ru) * 1999-12-29 2006-09-20 Ново Нордиск А/С Предшественник инсулина, способ его получения и применение
EP1377608B1 (en) 2001-04-02 2009-09-16 Novo Nordisk A/S Insulin precursors and a process for their preparation
AU2002316807A1 (en) 2001-06-08 2002-12-23 Novo Nordisk A/S Method for making insulin precursors and insulin precursor analogs
WO2008037735A1 (en) 2006-09-27 2008-04-03 Novo Nordisk A/S Method for making maturated insulin polypeptides

Patent Citations (3)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
WO2002079251A2 (en) * 2001-04-02 2002-10-10 Novo Nordisk A/S Method for making human insulin precursors
WO2005047508A1 (en) * 2003-11-14 2005-05-26 Novo Nordisk A/S Processes for making acylated insulin
JP2013519370A (ja) * 2010-02-10 2013-05-30 バイオコン リミテッド タンパク質のグリコシル化を低下させる方法、その産生方法およびタンパク質

Non-Patent Citations (1)

* Cited by examiner, † Cited by third party
Title
M.J.BETTS, ET AL., "BIOINFORMATICS FOR GENETICISTS" JOHN WILLEY & SONS, LTD., 2003, P.289-316, JPN6018013528, ISSN: 0003779851 *

Also Published As

Publication number Publication date
US20160115216A1 (en) 2016-04-28
CN105308067B (zh) 2020-07-24
EP3004156A1 (en) 2016-04-13
WO2014195452A1 (en) 2014-12-11
CN105308067A (zh) 2016-02-03

Similar Documents

Publication Publication Date Title
US8518668B2 (en) Method for making maturated insulin polypeptides in a fungal cell
CN105308067B (zh) 制备成熟胰岛素多肽的方法
US7402565B2 (en) Processes for making acylated insulin
US12024542B2 (en) Mating factor alpha pro-peptide variants
JP4855640B2 (ja) インシュリン前駆体及びその調製方法
US7105314B2 (en) Method for making human insulin precursors
JP2013208119A (ja) 成熟インスリンポリペプチドの作製方法
JP5404411B2 (ja) 活性化カルボキシペプチダーゼの製造方法
JP4795599B2 (ja) 酵母において改良された発酵収率を有するインスリン前駆体及びインスリン前駆体類似体の製造方法
WO2002079251A2 (en) Method for making human insulin precursors
WO2004085472A1 (en) Method for making human insulin precursors and human insulin

Legal Events

Date Code Title Description
A621 Written request for application examination

Free format text: JAPANESE INTERMEDIATE CODE: A621

Effective date: 20170518

A977 Report on retrieval

Free format text: JAPANESE INTERMEDIATE CODE: A971007

Effective date: 20180322

A131 Notification of reasons for refusal

Free format text: JAPANESE INTERMEDIATE CODE: A131

Effective date: 20180423

A521 Request for written amendment filed

Free format text: JAPANESE INTERMEDIATE CODE: A523

Effective date: 20180713

A761 Written withdrawal of application

Free format text: JAPANESE INTERMEDIATE CODE: A761

Effective date: 20181109