JP2021514630A - 新規な1−octen−3−olを生産する形質組換え酵母及びその製造方法 - Google Patents
新規な1−octen−3−olを生産する形質組換え酵母及びその製造方法 Download PDFInfo
- Publication number
- JP2021514630A JP2021514630A JP2020544646A JP2020544646A JP2021514630A JP 2021514630 A JP2021514630 A JP 2021514630A JP 2020544646 A JP2020544646 A JP 2020544646A JP 2020544646 A JP2020544646 A JP 2020544646A JP 2021514630 A JP2021514630 A JP 2021514630A
- Authority
- JP
- Japan
- Prior art keywords
- yeast
- gene
- octen
- vector
- lipoxygenase
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Pending
Links
Images





Classifications
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
- C12N15/09—Recombinant DNA-technology
- C12N15/63—Introduction of foreign genetic material using vectors; Vectors; Use of hosts therefor; Regulation of expression
- C12N15/79—Vectors or expression systems specially adapted for eukaryotic hosts
- C12N15/80—Vectors or expression systems specially adapted for eukaryotic hosts for fungi
- C12N15/81—Vectors or expression systems specially adapted for eukaryotic hosts for fungi for yeasts
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12P—FERMENTATION OR ENZYME-USING PROCESSES TO SYNTHESISE A DESIRED CHEMICAL COMPOUND OR COMPOSITION OR TO SEPARATE OPTICAL ISOMERS FROM A RACEMIC MIXTURE
- C12P7/00—Preparation of oxygen-containing organic compounds
- C12P7/02—Preparation of oxygen-containing organic compounds containing a hydroxy group
- C12P7/04—Preparation of oxygen-containing organic compounds containing a hydroxy group acyclic
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/0004—Oxidoreductases (1.)
- C12N9/0069—Oxidoreductases (1.) acting on single donors with incorporation of molecular oxygen, i.e. oxygenases (1.13)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N1/00—Microorganisms; Compositions thereof; Processes of propagating, maintaining or preserving microorganisms or compositions thereof; Processes of preparing or isolating a composition containing a microorganism; Culture media therefor
- C12N1/14—Fungi; Culture media therefor
- C12N1/16—Yeasts; Culture media therefor
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N9/00—Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
- C12N9/88—Lyases (4.)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y113/00—Oxidoreductases acting on single donors with incorporation of molecular oxygen (oxygenases) (1.13)
- C12Y113/11—Oxidoreductases acting on single donors with incorporation of molecular oxygen (oxygenases) (1.13) with incorporation of two atoms of oxygen (1.13.11)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y402/00—Carbon-oxygen lyases (4.2)
- C12Y402/01—Hydro-lyases (4.2.1)
- C12Y402/01092—Hydroperoxide dehydratase (4.2.1.92)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12Y—ENZYMES
- C12Y402/00—Carbon-oxygen lyases (4.2)
- C12Y402/99—Other carbon-oxygen lyases (4.2.99)
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
- C12N1/00—Microorganisms; Compositions thereof; Processes of propagating, maintaining or preserving microorganisms or compositions thereof; Processes of preparing or isolating a composition containing a microorganism; Culture media therefor
- C12N1/14—Fungi; Culture media therefor
- C12N1/16—Yeasts; Culture media therefor
- C12N1/18—Baker's yeast; Brewer's yeast
- C12N1/185—Saccharomyces isolates
-
- C—CHEMISTRY; METALLURGY
- C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
- C12R—INDEXING SCHEME ASSOCIATED WITH SUBCLASSES C12C - C12Q, RELATING TO MICROORGANISMS
- C12R2001/00—Microorganisms ; Processes using microorganisms
- C12R2001/645—Fungi ; Processes using fungi
- C12R2001/85—Saccharomyces
- C12R2001/865—Saccharomyces cerevisiae
Landscapes
- Chemical & Material Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Organic Chemistry (AREA)
- Health & Medical Sciences (AREA)
- Engineering & Computer Science (AREA)
- Zoology (AREA)
- Wood Science & Technology (AREA)
- Genetics & Genomics (AREA)
- Bioinformatics & Cheminformatics (AREA)
- General Engineering & Computer Science (AREA)
- General Health & Medical Sciences (AREA)
- Biochemistry (AREA)
- Biotechnology (AREA)
- Microbiology (AREA)
- Biomedical Technology (AREA)
- Molecular Biology (AREA)
- Medicinal Chemistry (AREA)
- Mycology (AREA)
- Chemical Kinetics & Catalysis (AREA)
- General Chemical & Material Sciences (AREA)
- Physics & Mathematics (AREA)
- Plant Pathology (AREA)
- Biophysics (AREA)
- Botany (AREA)
- Tropical Medicine & Parasitology (AREA)
- Virology (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Preparation Of Compounds By Using Micro-Organisms (AREA)
- Enzymes And Modification Thereof (AREA)
- Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)
Abstract
Description
大韓民国の大邱市隣近の居昌地域で採取した松茸子実体からTotal RNAを分離した。松茸子実体を3乃至5cmの小さな片で切った後、液体窒素を使って乳鉢できれいに摩碎した。摩碎した子実体をTRIZol1mLに完全に溶解させた後クロロホルム(chloroform)を添加したし、15分間遠心分離してRNAを分離した。RNAが含まれた上澄み液を新しいチューブに移して同量のイソプロフィルアルコール(Iso-propyl alcohol)を添加して常温で15分間反応させて10分間12,000rpmで遠心分離してRNAを沈澱させた。次に、上澄み液をとり除いて75%エチルアルコール(ethyl alcohol)を添加して洗滌した後DEPC処理数(DEPC(diethypyrocarbonate)-treated water)を添加してTotal RNAを湧出、分離したし、その結果Total RNA concentrationは992.8ng/μlで確認された(A260/A280=1.886)(図1、一番目のレーンはDNA markerであり、2〜4レーンはTotal RNAを示す)。
前記実施例1で収得したTotal RNAとAccuscript High Fidelity 1st Strand cDNA Synthesis Kit(Stratagene)を使ってFirst strand cDNAを次の方法で合成した。Total RNA1μl、RNA se-freewater11.7μl、AccuScript RT buffer2μl、Oligo dT primer 1μl、dNTP mixture0.8μlを混合して65℃で5分、次の常温で5分間反応させた後DTT100mM、AccuScript RT 1μl、RNase Block ribonuclease 0.5μlをさらに添加して42℃で1時間反応させた後70℃で15分反応させてcDNAを合成した。
前記実施例2で合成、収得したcDNAを鋳型でPrimeSTAR TM HS Polymerase(TaKaRa)を利用して下記のプライマー(primer)(表1)及びPCR条件(表2)を使って遺伝子を増幅させた。SC選択的培地(SC selectable medium)で該当の遺伝子及び制限酵素を使ってPCRを遂行した。

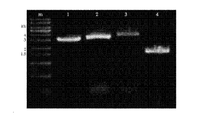
前記実施例3で収得したリポキシゲナーゼ(Lipoxygenase)-1遺伝子、リポキシゲナーゼ(Lipoxygenase)-2遺伝子、リポキシゲナーゼ(Lipoxygenase)-3遺伝子とヒドロペルオキシドリアーゼ(Hydroperoxide lyase)遺伝子のPCR産物を各pGEM TM easy T vector(Promega)にクローニングするためにMighty TA-cloning Reagent Set(TaKaRa)を使ってA-tailing過程を遂行した後、pGEM TM easy T vectorと4℃でオーバーナイト(overnight)してライゲーション(ligation)させた後、ライゲーション(ligation)されたvectorをE.coliDH5α competentcells(TaKaRa)に形質転換した。次に、E.coliはampicillin(100μl/ml)、IPTG(0.1mM)、X-GAL(50μg/ml)を添加したLuriaBroth(LB) medium plateに塗抹して37℃で16乃至18時間の間に培養した後、Higene TM Plasmid Mini Prep Kit(Biofact)を使ってプラスミドを抽出した。抽出したプラスミドに遺伝子が正確に挿入されたかを確認するために電気泳動で遺伝子の大きさを確認した後該当塩基配列シークエンシングを遂行した。
Yeastでの遺伝子発現のためのリポキシゲナーゼ(Lipoxygenase)-1遺伝子、リポキシゲナーゼ(Lipoxygenase)-2遺伝子、リポキシゲナーゼ(Lipoxygenase)-3遺伝子が挿入されたpGEM vectorを各制限酵素HindIIIとKpnIで37℃で反応させて切断したし、ヒドロペルオキシドリアーゼ(Hydroperoxide lyase)遺伝子が挿入されたpGEM vectorを各制限酵素KpnIとEcoRIで37℃で反応させて切断した。切断した遺伝子らはTaKaRa MiniBEST Agarose Gel DNA Extraction Kit(TaKaRa)で精製した後定量した。前記遺伝子を発現させるための微生物モデルとしてSaccharomyces cerevisiae種を選択した後、効率タンパク質発現のためにhostcellに相応しい酵母発現ベクター(Yeast expression vector)であるpYES3ベクター(Invitrogen社)を選択した。本ベクターはpUc ori配列が含まれていてバクテリアで増幅が易しくて、2μorigin配列が含まれていて酵母でも増幅が可能である。また、このベクターには目的遺伝子を切断しない制限酵素席がmultiple cloning siteにおいて、ベクターに遺伝子を正確に挿入することができた。力強いプローモーターであるGAL1プローモーターがあり、T7プローモーターとCYC1配列があって遺伝子の挿入と挿入された配列を遺伝子塩基配列分析で正確に把握することができる。
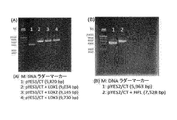
S.C.EasyComp TM Transformation Kit(Invitrogen)を使ってサッカロミセスセレビシエ(Saccharomycescerevisiae)competent cellを製造した。そして、前記実施例5で収得したリポキシゲナーゼ(Lipoxygenase)-1遺伝子、リポキシゲナーゼ(Lipoxygenase)-2遺伝子、リポキシゲナーゼ(Lipoxygenase)-3遺伝子が導入したpYES3/CTvectorとヒドロペルオキシドリアーゼ(Hydroperoxide lyase)が導入されたpYES2/CT vectorを各1:1の割合で混合した後このベクターらをS.cerevisiae competent cell(INVSc1)に形質転換した。そして、トリプトファン(Tryptophan)とユラシル(Uracil)が結実されたSC medium plate(Synthetic complete medium、0.67%yeast nitrogen base、2%glucose、0.192%yeast synthetic drop-out medium supplements、2% agar)に前記S.cerevisiae competent cell(INVSc1)を塗抹して30℃から2乃至3日間培養した(図6(A))。前記 SC medium培地はトリプトファン(Tryptophan)とウラシル(Uracil)が結実された最小培地でTRP1遺伝子があるpYES3とURA3遺伝子があるpYES2ベクターがすべて挿入された形質組換え体酵母を効率的に選別してターゲットタンパク質発現に適合であるので使用されたし、使用されたSC medium培地の組成は次の表3のようである。
前記実施例6から収得した各遺伝子の組合が形質組換えされた酵母での1-OCTEN-3-OLの生合成を確認するためにトリプトファン(Tryptophan)とウラシル(Uracil)が結実された SC selectable medium (Synthetic complete medium, 0.67% yeast nitrogen base, 2% raffinose, 0.192% yeast synthetic drop-out medium supplements)に形質組換え酵母を接種してオーバーナイト(overnight)前培養した後、遠心分離して酵母を集めてトリプトファン(Tryptophan))とユラシル(Uracil))が結実された SC induction medium (Synthetic complete medium, 0.67% yeast nitrogen base, 1% raffinose, 2% galactose, 0.192% yeast synthetic drop-out medium supplements)に接種して、2% Tween-20と1.5mMリノール酸(linoleic acid)を添加して30℃で20時間の間に培養した。遠心分離で培養した酵母とミディアム(medium)を分離して酵母にリン酸ナトリウム溶解緩衝額(sodium Phosphate lysis buffer(50mM sodium Phosphate、1mM PMSF、5% glycerol、2% triton X-100;pH6.5)とacid-washed glass beads(0.4-0.6mm size)を添加してbead beaterでlysisした後、遠心分離で菌体をダウンさせて細胞溶解上澄み液を回収した。次に、生成された1-OCTEN-3-OLを確認するためにライセート(lysates)と培養したミディアム(medium)を70℃で35分間SPME(solid phase microextraction)に揮発性成分を抽出して気体クロマトグラフィー-質量分析法(Gas chromatography-mass spectrometry(Aqilent 789OB GC & 5977B MSD))で分析した。気体クロマトグラフィー質量分析のためにDB-WAX(60m×250μm×0.25μm)とheliumcarrier gasを使ったし、コラム(column)の温度は40℃から120℃まで2℃/minの速度で高めたし、120℃から240℃まで20℃/minの速度で高めた。Injectorの温度は250℃にした。
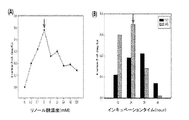
基質の濃度と反応条件による形質組換え酵母の1-OCTEN-3-OL生合成量を確認するためにトリプトファン(Tryptophan))とユラシル(Uracil))が結実されたSC selectable medium(Synthetic complete medium、0.67% yeast nitrogen base、2% raffinose、0.192% yeast synthetic drop-out medium supplements)にリポキシゲナーゼ(Lipoxygenase)-1とヒドロペルオキシドリアーゼ(Hydroperoxide lyase)が形質組換えされた酵母を接種してオーバーナイト(overnight)前培養した後、遠心分離で酵母を集めてトリプトファン(Tryptophan)とウラシル(Uracil)が結実されたSC induction medium(Synthetic complete medium、0.67%yeast nitrogen base、1%raffinose、2%Galactose、0.192%yeast synthetic drop-out mediums upplements)に接種して、2%Tween-20と適切な濃度のリノール酸(linoleic acid)(0〜0.1M)添加して30℃から20時間の間に培養した。また、反応条件による形質組換え酵母で1-OCTEN-3-OL生合成量を確認するために前培養した酵母をトリプトファン(Tryptophan))とユラシル(Uracil))が結実されたSC induction medium(Synthetic complete medium、0.67%yeast nitrogen base、1%raffinose、2%Galactose、0.192%yeast synthetic drop-out medium supplements)に接種して、2% Tween-20と3mMリノール酸(linoleic acid)を添加して15℃と30℃で各12、24、36、48時間の間に培養した。遠心分離で培養した酵母を集めてリン酸ナトリウム溶解緩衝額(sodium Phosphate lysis buffer(50mM sodium Phosphate、1mMPMSF、5%glycerol、2% tritonX-100と、pH6.5))とacid-washed glass beads(0.4-0.6mm size)を添加してbead beaterでlysisした後、遠心分離で菌体をダウンさせて細胞用して上澄み液を回収したし、0.1gのNaCl(タンパク質沈澱のためである)を添加して同量のジエチルエーテル(diethylether)で香り物質を抽出して気体クロマトグラフィー-質量分析法(Gas chromatography-mass spectrometry(Aqilent 789OB GC & 5977B MSD))で分析した。気体クロマトグラフィー質量分析のためにDB-WAX(60m×250μm×0.25μm)とhelium carrier gasを使ったし、columnの温度は40℃から120℃まで2℃/minの速度で高めたし、120℃から240℃まで20℃/minの速度で高めた。Injectorの温度は250℃にした。生合成された1-OCTEN-3-OLの濃度は1-OCTEN-3-OLstandard(Sigma)と比較分析した。実験結果、(A)リノール酸(linoleic acid)添加濃度が3mMである時1-OCTEN-3-OL生合成量はおおよそ0.48mg/Lで一番高かったし、(B)24時間の間に30℃での1-OCTEN-3-OLの生合成量はおおよそ0.35mg/Lで一番高かった(図9)。
寄託機関名:韓国バイオテクノロジー研究院
受託番号:KCTC 13476BP
受託日付け:20180206
寄託機関名:韓国バイオテクノロジー研究院
受託番号:KCTC 13477BP
受託日付け:20180206
寄託機関名:韓国バイオテクノロジー研究院
受託番号:KCTC 13478BP
受託日付け:20180206
Claims (7)
- リポキシゲナーゼ(Lipoxygenase)をコーディングする配列リスト9、10、11のうちで選択される何れか一つの塩基配列とヒドロペルオキシドリアーゼ(Hydroperoxide lyase)をコーディングする配列リスト12の塩基配列を含む再組合ベクターに形質組換えされた1-OCTEN-3-OL生産用形質組換え酵母。
- 松茸のTotal RNAを分離してcDNA合成する段階と、前記合成されたcDNAからリポキシゲナーゼ(Lipoxygenase)遺伝子とヒドロペルオキシドリアーゼ(Hydroperoxide lyase)遺伝子をPCR増幅する段階と、
前記増幅された各リポキシゲナーゼ(Lipoxygenase)遺伝子とヒドロペルオキシドリアーゼ(Hydroperoxide lyase)遺伝子をベクターに遺伝子クローニングする段階と、
前記クローニングされた各リポキシゲナーゼ(Lipoxygenase)遺伝子とヒドロペルオキシドリアーゼ(Hydroperoxide lyase)遺伝子を各酵母発現ベクター(Yeast expression vector)に遺伝子クローニングする段階と、
前記酵母発現ベクター(Yeast expression vector)を酵母に形質組換えして培養して1-OCTEN-3-OLの生合成を確認する段階と、を含む1-OCTEN-3-OL生産用形質組換え酵母の製造方法。 - 前記酵母発現ベクター(Yeast expression vector)は、pYES3/CT vectorまたは、pYES2/CT vectorのうちで選択されるvectorであることを特徴とする請求項2に記載の方法。
- 前記pYES3/CT vectorとpYES2/CT vectorを1:1の割合で使用することを特徴とする請求項3に記載の方法。
- 前記酵母の培養はSC medium培地で0.01乃至100mMのリノール酸(linoleic acid)を利用して15乃至45℃で、12乃至48時間の間に培養することを特徴とする請求項2に記載の方法。
- 前記酵母はサッカロミセスセレビシエ(S.cerevisiae)であることを特徴とする請求項2に記載の方法。
- 請求項1の1-OCTEN-3-OL生産用形質組換え酵母を培地で培養して1-OCTEN-3-OLを生合成する段階と、前記生合成された1-OCTEN-3-OLを収得する段階と、を含む1-OCTEN-3-OLの製造方法。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2022146720A JP2022180459A (ja) | 2018-02-21 | 2022-09-15 | 新規な1-octen-3-olを生産する形質組換え酵母及びその製造方法 |
Applications Claiming Priority (5)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| KR10-2018-0020608 | 2018-02-21 | ||
| KR20180020608 | 2018-02-21 | ||
| KR10-2019-0019496 | 2019-02-19 | ||
| KR1020190019496A KR102318983B1 (ko) | 2018-02-21 | 2019-02-19 | 신규한 1-octen-3-ol을 생산하는 형질전환 효모 및 그 제조방법 |
| PCT/KR2019/002125 WO2019164294A1 (ko) | 2018-02-21 | 2019-02-21 | 신규한 1-octen-3-ol을 생산하는 형질전환 효모 및 그 제조방법 |
Related Child Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2022146720A Division JP2022180459A (ja) | 2018-02-21 | 2022-09-15 | 新規な1-octen-3-olを生産する形質組換え酵母及びその製造方法 |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2021514630A true JP2021514630A (ja) | 2021-06-17 |
Family
ID=67776023
Family Applications (2)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2020544646A Pending JP2021514630A (ja) | 2018-02-21 | 2019-02-21 | 新規な1−octen−3−olを生産する形質組換え酵母及びその製造方法 |
| JP2022146720A Pending JP2022180459A (ja) | 2018-02-21 | 2022-09-15 | 新規な1-octen-3-olを生産する形質組換え酵母及びその製造方法 |
Family Applications After (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2022146720A Pending JP2022180459A (ja) | 2018-02-21 | 2022-09-15 | 新規な1-octen-3-olを生産する形質組換え酵母及びその製造方法 |
Country Status (3)
| Country | Link |
|---|---|
| US (1) | US11371064B2 (ja) |
| JP (2) | JP2021514630A (ja) |
| KR (3) | KR102318983B1 (ja) |
Families Citing this family (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CN118086355A (zh) * | 2024-01-19 | 2024-05-28 | 稀物集(广州)生物科技有限公司 | 一种富集松茸活性成分的菌株及松茸发酵油的制备方法 |
Citations (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US20060156430A1 (en) * | 2005-01-13 | 2006-07-13 | Mcgonigle Brian | Novel cytochrome P450 monooxygenase |
| US20100313309A1 (en) * | 2006-03-15 | 2010-12-09 | Martek Biosciences Corporation | Polyunsaturated fatty acid production in heterologous organisms using pufa polyketide synthase systems |
| KR20140092284A (ko) * | 2014-07-08 | 2014-07-23 | 경북대학교 산학협력단 | 송이버섯의 옥텐올 생합성에 관여하는 리폭시게나아제 코딩 유전자 및 하이드로퍼옥사이드 리아제 코딩 유전자 |
Family Cites Families (4)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| DE69730551T2 (de) | 1996-04-15 | 2005-09-01 | Givaudan S.A. | Hydroxyperoxide Lyasen |
| BR112013004208B1 (pt) | 2010-08-24 | 2019-02-26 | Dsm Ip Assets B.V. | Processos para a fabricação de 3,7-dimetil-l-octeno-3-ol, de fitol ou isofitol, e de vitamina e ou o seu acetato |
| KR101446315B1 (ko) | 2012-12-31 | 2014-09-29 | 경북대학교 산학협력단 | 송이버섯의 옥텐올 생합성에 관여하는 리폭시게나아제 코딩 유전자 및 하이드로퍼옥사이드 리아제 코딩 유전자 |
| CA2949227A1 (en) | 2014-05-16 | 2015-11-19 | Pharmozyme, Inc. | Genetic detection platform |
-
2019
- 2019-02-19 KR KR1020190019496A patent/KR102318983B1/ko active Active
- 2019-02-21 JP JP2020544646A patent/JP2021514630A/ja active Pending
- 2019-02-21 US US16/971,582 patent/US11371064B2/en active Active
- 2019-02-22 KR KR1020190020954A patent/KR102196819B1/ko active Active
- 2019-02-22 KR KR1020190020953A patent/KR102196834B1/ko active Active
-
2022
- 2022-09-15 JP JP2022146720A patent/JP2022180459A/ja active Pending
Patent Citations (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US20060156430A1 (en) * | 2005-01-13 | 2006-07-13 | Mcgonigle Brian | Novel cytochrome P450 monooxygenase |
| US20100313309A1 (en) * | 2006-03-15 | 2010-12-09 | Martek Biosciences Corporation | Polyunsaturated fatty acid production in heterologous organisms using pufa polyketide synthase systems |
| KR20140092284A (ko) * | 2014-07-08 | 2014-07-23 | 경북대학교 산학협력단 | 송이버섯의 옥텐올 생합성에 관여하는 리폭시게나아제 코딩 유전자 및 하이드로퍼옥사이드 리아제 코딩 유전자 |
Also Published As
| Publication number | Publication date |
|---|---|
| KR102318983B1 (ko) | 2021-11-01 |
| US11371064B2 (en) | 2022-06-28 |
| KR102196834B1 (ko) | 2020-12-31 |
| KR20190100871A (ko) | 2019-08-29 |
| KR20190100890A (ko) | 2019-08-29 |
| US20210002674A1 (en) | 2021-01-07 |
| JP2022180459A (ja) | 2022-12-06 |
| KR102196819B1 (ko) | 2020-12-31 |
| KR20190100889A (ko) | 2019-08-29 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| CN108085262B (zh) | 对萜类或含萜精油耐受性提高或萜类产量提高的重组宿主细胞、其产生方法及其用途 | |
| CN110438099B (zh) | 糖基转移酶及其相关材料在构建产人参皂苷Rb1和Rg1的工程菌中的应用 | |
| HUE034245T2 (en) | Methods and preparations for the preparation of squalene using yeast | |
| EP2602329A1 (de) | Biotechnologische Herstellung von 3-Hydroxyisobuttersäure | |
| WO2019154217A1 (zh) | 柳杉二醇合成酶、其编码基因及包含该编码基因的重组酵母菌 | |
| CN107815424A (zh) | 一种产柠檬烯的解脂耶氏酵母基因工程菌及其应用 | |
| JP2009528041A (ja) | 生物変換により芳香族分子を産生するためのシステム | |
| CN110760453B (zh) | 一种高产乙酸苯乙酯的基因工程酵母菌株及其构建方法和生产乙酸苯乙酯的方法 | |
| JP2022180459A (ja) | 新規な1-octen-3-olを生産する形質組換え酵母及びその製造方法 | |
| JP6633535B2 (ja) | 7デヒドロコレステロール及びビタミンd3の製造法 | |
| Morita et al. | Improvement of 2, 3-butanediol production by dCas9 gene expression system in Saccharomyces cerevisiae | |
| JP5992020B2 (ja) | 不快臭を生成しないチゴサッカロミケス属酵母 | |
| JP2018033399A (ja) | 酢酸イソアミル高生産性、酢酸生産性低生産性かつイソアミルアルコール高生産性の醸造酵母の作出方法 | |
| WO2019164294A1 (ko) | 신규한 1-octen-3-ol을 생산하는 형질전환 효모 및 그 제조방법 | |
| US11634718B2 (en) | Production of macrocyclic ketones in recombinant hosts | |
| KR20140092284A (ko) | 송이버섯의 옥텐올 생합성에 관여하는 리폭시게나아제 코딩 유전자 및 하이드로퍼옥사이드 리아제 코딩 유전자 | |
| JP2010220481A (ja) | 酵母に接合能を付与する方法 | |
| JP5430813B2 (ja) | プロリン蓄積型形質転換酵母とその作成方法及び該酵母を用いた清酒の製造方法 | |
| JP5013448B2 (ja) | 出芽酵母の乳酸耐性又は生産性を向上させる多重遺伝子破壊の組み合わせ | |
| JP4288862B2 (ja) | プレニルアルコールの製造方法 | |
| JP4820921B2 (ja) | アミノ酸配列、dna及び酵母の育成方法 | |
| JP2002300896A (ja) | プレニルアルコールの製造方法 | |
| JP6587087B2 (ja) | Fas2タンパク質,fas2遺伝子及びカプリル酸高生産性酵母 | |
| 한숙 | Flavor enhancement by developing CRISPR-Cas9 technology in Saccharomyces cerevisiae | |
| CN121628884A (zh) | 瓦伦烯合酶突变体及其在生物合成瓦伦烯中的应用 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20201030 Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20201102 |
|
| A621 | Written request for application examination |
Free format text: JAPANESE INTERMEDIATE CODE: A621 Effective date: 20201021 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20211014 |
|
| A131 | Notification of reasons for refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A131 Effective date: 20211111 |
|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20220210 |
|
| A02 | Decision of refusal |
Free format text: JAPANESE INTERMEDIATE CODE: A02 Effective date: 20220520 |
|
| C60 | Trial request (containing other claim documents, opposition documents) |
Free format text: JAPANESE INTERMEDIATE CODE: C60 Effective date: 20220915 |
|
| C116 | Written invitation by the chief administrative judge to file amendments |
Free format text: JAPANESE INTERMEDIATE CODE: C116 Effective date: 20220928 |
|
| C22 | Notice of designation (change) of administrative judge |
Free format text: JAPANESE INTERMEDIATE CODE: C22 Effective date: 20220928 |
|
| C27A | Decision to dismiss |
Free format text: JAPANESE INTERMEDIATE CODE: C2711 Effective date: 20221110 |
|
| C032 | Notice prior to dismissal |
Free format text: JAPANESE INTERMEDIATE CODE: C032 Effective date: 20221201 |
|
| C30A | Notification sent |
Free format text: JAPANESE INTERMEDIATE CODE: C3012 Effective date: 20221201 |