JP2004113167A - 細菌表面へ蛋白質を発現させるためのベクター - Google Patents
細菌表面へ蛋白質を発現させるためのベクター Download PDFInfo
- Publication number
- JP2004113167A JP2004113167A JP2002283121A JP2002283121A JP2004113167A JP 2004113167 A JP2004113167 A JP 2004113167A JP 2002283121 A JP2002283121 A JP 2002283121A JP 2002283121 A JP2002283121 A JP 2002283121A JP 2004113167 A JP2004113167 A JP 2004113167A
- Authority
- JP
- Japan
- Prior art keywords
- protein
- terminal
- vector
- heterologous protein
- nucleic acid
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Pending
Links
- 108090000623 proteins and genes Proteins 0.000 title claims abstract description 89
- 102000004169 proteins and genes Human genes 0.000 title claims abstract description 71
- 239000013598 vector Substances 0.000 title claims abstract description 35
- 241000894006 Bacteria Species 0.000 title claims abstract description 26
- 108010063679 ice nucleation protein Proteins 0.000 claims abstract description 46
- 150000007523 nucleic acids Chemical group 0.000 claims abstract description 34
- 239000013604 expression vector Substances 0.000 claims abstract description 28
- 210000004899 c-terminal region Anatomy 0.000 claims abstract description 23
- 241000589615 Pseudomonas syringae Species 0.000 claims abstract description 21
- 241000588724 Escherichia coli Species 0.000 claims description 35
- 108091028043 Nucleic acid sequence Proteins 0.000 claims description 24
- 238000000034 method Methods 0.000 claims description 23
- 230000001580 bacterial effect Effects 0.000 claims description 22
- 102000004882 Lipase Human genes 0.000 claims description 7
- 108090001060 Lipase Proteins 0.000 claims description 7
- 239000004367 Lipase Substances 0.000 claims description 7
- 235000019421 lipase Nutrition 0.000 claims description 7
- 238000010367 cloning Methods 0.000 claims description 6
- 238000012258 culturing Methods 0.000 claims description 5
- 238000012216 screening Methods 0.000 claims description 4
- 210000003000 inclusion body Anatomy 0.000 abstract description 4
- 235000018102 proteins Nutrition 0.000 description 54
- 210000004027 cell Anatomy 0.000 description 10
- XLYOFNOQVPJJNP-UHFFFAOYSA-N water Chemical class O XLYOFNOQVPJJNP-UHFFFAOYSA-N 0.000 description 10
- 239000002609 medium Substances 0.000 description 9
- 230000000694 effects Effects 0.000 description 5
- 230000001717 pathogenic effect Effects 0.000 description 5
- QGZKDVFQNNGYKY-UHFFFAOYSA-N Ammonia Chemical compound N QGZKDVFQNNGYKY-UHFFFAOYSA-N 0.000 description 4
- VTYYLEPIZMXCLO-UHFFFAOYSA-L Calcium carbonate Chemical compound [Ca+2].[O-]C([O-])=O VTYYLEPIZMXCLO-UHFFFAOYSA-L 0.000 description 4
- 230000035772 mutation Effects 0.000 description 4
- QTBSBXVTEAMEQO-UHFFFAOYSA-N Acetic acid Chemical compound CC(O)=O QTBSBXVTEAMEQO-UHFFFAOYSA-N 0.000 description 3
- LFQSCWFLJHTTHZ-UHFFFAOYSA-N Ethanol Chemical compound CCO LFQSCWFLJHTTHZ-UHFFFAOYSA-N 0.000 description 3
- 240000004808 Saccharomyces cerevisiae Species 0.000 description 3
- 238000004458 analytical method Methods 0.000 description 3
- 210000000170 cell membrane Anatomy 0.000 description 3
- BPHPUYQFMNQIOC-NXRLNHOXSA-N isopropyl beta-D-thiogalactopyranoside Chemical compound CC(C)S[C@@H]1O[C@H](CO)[C@H](O)[C@H](O)[C@H]1O BPHPUYQFMNQIOC-NXRLNHOXSA-N 0.000 description 3
- AIHDCSAXVMAMJH-GFBKWZILSA-N levan Chemical compound O[C@H]1[C@H](O)[C@@H](CO)O[C@@]1(CO)OC[C@@H]1[C@@H](O)[C@H](O)[C@](CO)(CO[C@@H]2[C@H]([C@H](O)[C@@](O)(CO)O2)O)O1 AIHDCSAXVMAMJH-GFBKWZILSA-N 0.000 description 3
- 244000005700 microbiome Species 0.000 description 3
- 150000007524 organic acids Chemical class 0.000 description 3
- 238000002360 preparation method Methods 0.000 description 3
- 230000004853 protein function Effects 0.000 description 3
- 239000002344 surface layer Substances 0.000 description 3
- SXOUIMVOMIGLHO-AATRIKPKSA-N (E)-3-(indol-2-yl)acrylic acid Chemical compound C1=CC=C2NC(/C=C/C(=O)O)=CC2=C1 SXOUIMVOMIGLHO-AATRIKPKSA-N 0.000 description 2
- NLXLAEXVIDQMFP-UHFFFAOYSA-N Ammonia chloride Chemical compound [NH4+].[Cl-] NLXLAEXVIDQMFP-UHFFFAOYSA-N 0.000 description 2
- IJGRMHOSHXDMSA-UHFFFAOYSA-N Atomic nitrogen Chemical compound N#N IJGRMHOSHXDMSA-UHFFFAOYSA-N 0.000 description 2
- 108020004414 DNA Proteins 0.000 description 2
- 241000196324 Embryophyta Species 0.000 description 2
- CSNNHWWHGAXBCP-UHFFFAOYSA-L Magnesium sulfate Chemical compound [Mg+2].[O-][S+2]([O-])([O-])[O-] CSNNHWWHGAXBCP-UHFFFAOYSA-L 0.000 description 2
- 244000061176 Nicotiana tabacum Species 0.000 description 2
- 235000002637 Nicotiana tabacum Nutrition 0.000 description 2
- 101000702488 Rattus norvegicus High affinity cationic amino acid transporter 1 Proteins 0.000 description 2
- 102100029341 SERTA domain-containing protein 1 Human genes 0.000 description 2
- 101710135254 SERTA domain-containing protein 1 Proteins 0.000 description 2
- FAPWRFPIFSIZLT-UHFFFAOYSA-M Sodium chloride Chemical compound [Na+].[Cl-] FAPWRFPIFSIZLT-UHFFFAOYSA-M 0.000 description 2
- 235000019764 Soybean Meal Nutrition 0.000 description 2
- 229920002472 Starch Polymers 0.000 description 2
- QAOWNCQODCNURD-UHFFFAOYSA-N Sulfuric acid Chemical compound OS(O)(=O)=O QAOWNCQODCNURD-UHFFFAOYSA-N 0.000 description 2
- 239000004098 Tetracycline Substances 0.000 description 2
- XSQUKJJJFZCRTK-UHFFFAOYSA-N Urea Chemical compound NC(N)=O XSQUKJJJFZCRTK-UHFFFAOYSA-N 0.000 description 2
- 229910021529 ammonia Inorganic materials 0.000 description 2
- 229960000723 ampicillin Drugs 0.000 description 2
- AVKUERGKIZMTKX-NJBDSQKTSA-N ampicillin Chemical compound C1([C@@H](N)C(=O)N[C@H]2[C@H]3SC([C@@H](N3C2=O)C(O)=O)(C)C)=CC=CC=C1 AVKUERGKIZMTKX-NJBDSQKTSA-N 0.000 description 2
- 229910000019 calcium carbonate Inorganic materials 0.000 description 2
- OPQARKPSCNTWTJ-UHFFFAOYSA-L copper(ii) acetate Chemical compound [Cu+2].CC([O-])=O.CC([O-])=O OPQARKPSCNTWTJ-UHFFFAOYSA-L 0.000 description 2
- 238000010586 diagram Methods 0.000 description 2
- XBDQKXXYIPTUBI-UHFFFAOYSA-N dimethylselenoniopropionate Natural products CCC(O)=O XBDQKXXYIPTUBI-UHFFFAOYSA-N 0.000 description 2
- 238000005516 engineering process Methods 0.000 description 2
- 230000006910 ice nucleation Effects 0.000 description 2
- PLVPPLCLBIEYEA-UHFFFAOYSA-N indoleacrylic acid Natural products C1=CC=C2C(C=CC(=O)O)=CNC2=C1 PLVPPLCLBIEYEA-UHFFFAOYSA-N 0.000 description 2
- 230000001939 inductive effect Effects 0.000 description 2
- 235000019626 lipase activity Nutrition 0.000 description 2
- 238000004519 manufacturing process Methods 0.000 description 2
- 150000007522 mineralic acids Chemical class 0.000 description 2
- 239000002773 nucleotide Substances 0.000 description 2
- 125000003729 nucleotide group Chemical group 0.000 description 2
- 235000005985 organic acids Nutrition 0.000 description 2
- 230000007918 pathogenicity Effects 0.000 description 2
- LWIHDJKSTIGBAC-UHFFFAOYSA-K potassium phosphate Substances [K+].[K+].[K+].[O-]P([O-])([O-])=O LWIHDJKSTIGBAC-UHFFFAOYSA-K 0.000 description 2
- 108090000765 processed proteins & peptides Proteins 0.000 description 2
- 235000002639 sodium chloride Nutrition 0.000 description 2
- 239000004455 soybean meal Substances 0.000 description 2
- 239000008107 starch Substances 0.000 description 2
- 235000019698 starch Nutrition 0.000 description 2
- 238000004781 supercooling Methods 0.000 description 2
- 229960002180 tetracycline Drugs 0.000 description 2
- 229930101283 tetracycline Natural products 0.000 description 2
- 235000019364 tetracycline Nutrition 0.000 description 2
- 150000003522 tetracyclines Chemical class 0.000 description 2
- 238000001890 transfection Methods 0.000 description 2
- FWMNVWWHGCHHJJ-SKKKGAJSSA-N 4-amino-1-[(2r)-6-amino-2-[[(2r)-2-[[(2r)-2-[[(2r)-2-amino-3-phenylpropanoyl]amino]-3-phenylpropanoyl]amino]-4-methylpentanoyl]amino]hexanoyl]piperidine-4-carboxylic acid Chemical compound C([C@H](C(=O)N[C@H](CC(C)C)C(=O)N[C@H](CCCCN)C(=O)N1CCC(N)(CC1)C(O)=O)NC(=O)[C@H](N)CC=1C=CC=CC=1)C1=CC=CC=C1 FWMNVWWHGCHHJJ-SKKKGAJSSA-N 0.000 description 1
- 241000589234 Acetobacter sp. Species 0.000 description 1
- USFZMSVCRYTOJT-UHFFFAOYSA-N Ammonium acetate Chemical compound N.CC(O)=O USFZMSVCRYTOJT-UHFFFAOYSA-N 0.000 description 1
- 239000005695 Ammonium acetate Substances 0.000 description 1
- 239000004254 Ammonium phosphate Substances 0.000 description 1
- 244000296825 Amygdalus nana Species 0.000 description 1
- 235000003840 Amygdalus nana Nutrition 0.000 description 1
- 239000004475 Arginine Substances 0.000 description 1
- 125000001433 C-terminal amino-acid group Chemical group 0.000 description 1
- OKTJSMMVPCPJKN-UHFFFAOYSA-N Carbon Chemical group [C] OKTJSMMVPCPJKN-UHFFFAOYSA-N 0.000 description 1
- 229920002307 Dextran Polymers 0.000 description 1
- 108090000790 Enzymes Proteins 0.000 description 1
- 102000004190 Enzymes Human genes 0.000 description 1
- 241000588699 Erwinia sp. Species 0.000 description 1
- 108700024394 Exon Proteins 0.000 description 1
- 229930091371 Fructose Natural products 0.000 description 1
- 239000005715 Fructose Substances 0.000 description 1
- RFSUNEUAIZKAJO-ARQDHWQXSA-N Fructose Chemical compound OC[C@H]1O[C@](O)(CO)[C@@H](O)[C@@H]1O RFSUNEUAIZKAJO-ARQDHWQXSA-N 0.000 description 1
- 230000005526 G1 to G0 transition Effects 0.000 description 1
- WQZGKKKJIJFFOK-GASJEMHNSA-N Glucose Natural products OC[C@H]1OC(O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-GASJEMHNSA-N 0.000 description 1
- 206010020751 Hypersensitivity Diseases 0.000 description 1
- QIVBCDIJIAJPQS-VIFPVBQESA-N L-tryptophane Chemical compound C1=CC=C2C(C[C@H](N)C(O)=O)=CNC2=C1 QIVBCDIJIAJPQS-VIFPVBQESA-N 0.000 description 1
- GUBGYTABKSRVRQ-QKKXKWKRSA-N Lactose Natural products OC[C@H]1O[C@@H](O[C@H]2[C@H](O)[C@@H](O)C(O)O[C@@H]2CO)[C@H](O)[C@@H](O)[C@H]1O GUBGYTABKSRVRQ-QKKXKWKRSA-N 0.000 description 1
- 241000012186 Litura Species 0.000 description 1
- 108010052285 Membrane Proteins Proteins 0.000 description 1
- 102000018697 Membrane Proteins Human genes 0.000 description 1
- 240000000249 Morus alba Species 0.000 description 1
- 235000008708 Morus alba Nutrition 0.000 description 1
- 241000588653 Neisseria Species 0.000 description 1
- 102000004316 Oxidoreductases Human genes 0.000 description 1
- 108090000854 Oxidoreductases Proteins 0.000 description 1
- 108010087702 Penicillinase Proteins 0.000 description 1
- 239000001888 Peptone Substances 0.000 description 1
- 108010080698 Peptones Proteins 0.000 description 1
- 108010009736 Protein Hydrolysates Proteins 0.000 description 1
- 235000011432 Prunus Nutrition 0.000 description 1
- 241000589516 Pseudomonas Species 0.000 description 1
- 241000589774 Pseudomonas sp. Species 0.000 description 1
- 102000007056 Recombinant Fusion Proteins Human genes 0.000 description 1
- 108010008281 Recombinant Fusion Proteins Proteins 0.000 description 1
- 108020005091 Replication Origin Proteins 0.000 description 1
- 241000220286 Sedum Species 0.000 description 1
- 241001116459 Sequoia Species 0.000 description 1
- 244000061456 Solanum tuberosum Species 0.000 description 1
- 235000002595 Solanum tuberosum Nutrition 0.000 description 1
- CZMRCDWAGMRECN-UGDNZRGBSA-N Sucrose Chemical compound O[C@H]1[C@H](O)[C@@H](CO)O[C@@]1(CO)O[C@@H]1[C@H](O)[C@@H](O)[C@H](O)[C@@H](CO)O1 CZMRCDWAGMRECN-UGDNZRGBSA-N 0.000 description 1
- 229930006000 Sucrose Natural products 0.000 description 1
- QIVBCDIJIAJPQS-UHFFFAOYSA-N Tryptophan Natural products C1=CC=C2C(CC(N)C(O)=O)=CNC2=C1 QIVBCDIJIAJPQS-UHFFFAOYSA-N 0.000 description 1
- 241001148118 Xanthomonas sp. Species 0.000 description 1
- 240000008042 Zea mays Species 0.000 description 1
- 235000005824 Zea mays ssp. parviglumis Nutrition 0.000 description 1
- 235000002017 Zea mays subsp mays Nutrition 0.000 description 1
- 238000005273 aeration Methods 0.000 description 1
- 150000001298 alcohols Chemical class 0.000 description 1
- 239000012670 alkaline solution Substances 0.000 description 1
- 235000019257 ammonium acetate Nutrition 0.000 description 1
- 229940043376 ammonium acetate Drugs 0.000 description 1
- 235000019270 ammonium chloride Nutrition 0.000 description 1
- 229910000148 ammonium phosphate Inorganic materials 0.000 description 1
- 235000019289 ammonium phosphates Nutrition 0.000 description 1
- 150000003863 ammonium salts Chemical class 0.000 description 1
- BFNBIHQBYMNNAN-UHFFFAOYSA-N ammonium sulfate Chemical compound N.N.OS(O)(=O)=O BFNBIHQBYMNNAN-UHFFFAOYSA-N 0.000 description 1
- 229910052921 ammonium sulfate Inorganic materials 0.000 description 1
- 235000011130 ammonium sulphate Nutrition 0.000 description 1
- 230000003698 anagen phase Effects 0.000 description 1
- 239000003242 anti bacterial agent Substances 0.000 description 1
- 229940088710 antibiotic agent Drugs 0.000 description 1
- ODKSFYDXXFIFQN-UHFFFAOYSA-N arginine Natural products OC(=O)C(N)CCCNC(N)=N ODKSFYDXXFIFQN-UHFFFAOYSA-N 0.000 description 1
- 244000052616 bacterial pathogen Species 0.000 description 1
- 230000008901 benefit Effects 0.000 description 1
- WQZGKKKJIJFFOK-VFUOTHLCSA-N beta-D-glucose Chemical compound OC[C@H]1O[C@@H](O)[C@H](O)[C@@H](O)[C@@H]1O WQZGKKKJIJFFOK-VFUOTHLCSA-N 0.000 description 1
- 230000003115 biocidal effect Effects 0.000 description 1
- 230000015572 biosynthetic process Effects 0.000 description 1
- 239000001506 calcium phosphate Substances 0.000 description 1
- 229910000389 calcium phosphate Inorganic materials 0.000 description 1
- 235000011010 calcium phosphates Nutrition 0.000 description 1
- 229940041514 candida albicans extract Drugs 0.000 description 1
- 239000004202 carbamide Substances 0.000 description 1
- 150000001720 carbohydrates Chemical class 0.000 description 1
- 235000014633 carbohydrates Nutrition 0.000 description 1
- 229910052799 carbon Inorganic materials 0.000 description 1
- 239000005018 casein Substances 0.000 description 1
- BECPQYXYKAMYBN-UHFFFAOYSA-N casein, tech. Chemical compound NCCCCC(C(O)=O)N=C(O)C(CC(O)=O)N=C(O)C(CCC(O)=N)N=C(O)C(CC(C)C)N=C(O)C(CCC(O)=O)N=C(O)C(CC(O)=O)N=C(O)C(CCC(O)=O)N=C(O)C(C(C)O)N=C(O)C(CCC(O)=N)N=C(O)C(CCC(O)=N)N=C(O)C(CCC(O)=N)N=C(O)C(CCC(O)=O)N=C(O)C(CCC(O)=O)N=C(O)C(COP(O)(O)=O)N=C(O)C(CCC(O)=N)N=C(O)C(N)CC1=CC=CC=C1 BECPQYXYKAMYBN-UHFFFAOYSA-N 0.000 description 1
- 235000021240 caseins Nutrition 0.000 description 1
- 230000010261 cell growth Effects 0.000 description 1
- 238000003889 chemical engineering Methods 0.000 description 1
- 238000006243 chemical reaction Methods 0.000 description 1
- 238000007796 conventional method Methods 0.000 description 1
- 229910000365 copper sulfate Inorganic materials 0.000 description 1
- ARUVKPQLZAKDPS-UHFFFAOYSA-L copper(II) sulfate Chemical compound [Cu+2].[O-][S+2]([O-])([O-])[O-] ARUVKPQLZAKDPS-UHFFFAOYSA-L 0.000 description 1
- 235000005822 corn Nutrition 0.000 description 1
- 229940076286 cupric acetate Drugs 0.000 description 1
- MNNHAPBLZZVQHP-UHFFFAOYSA-N diammonium hydrogen phosphate Chemical compound [NH4+].[NH4+].OP([O-])([O-])=O MNNHAPBLZZVQHP-UHFFFAOYSA-N 0.000 description 1
- ZPWVASYFFYYZEW-UHFFFAOYSA-L dipotassium hydrogen phosphate Chemical compound [K+].[K+].OP([O-])([O-])=O ZPWVASYFFYYZEW-UHFFFAOYSA-L 0.000 description 1
- 229910000396 dipotassium phosphate Inorganic materials 0.000 description 1
- 235000019797 dipotassium phosphate Nutrition 0.000 description 1
- 239000000975 dye Substances 0.000 description 1
- 238000004520 electroporation Methods 0.000 description 1
- 230000007613 environmental effect Effects 0.000 description 1
- 239000000284 extract Substances 0.000 description 1
- 210000003495 flagella Anatomy 0.000 description 1
- 239000007850 fluorescent dye Substances 0.000 description 1
- 238000010230 functional analysis Methods 0.000 description 1
- 239000008103 glucose Substances 0.000 description 1
- 108010033706 glycylserine Proteins 0.000 description 1
- 230000012010 growth Effects 0.000 description 1
- 239000001963 growth medium Substances 0.000 description 1
- 230000007062 hydrolysis Effects 0.000 description 1
- 238000006460 hydrolysis reaction Methods 0.000 description 1
- 230000006872 improvement Effects 0.000 description 1
- 238000010348 incorporation Methods 0.000 description 1
- 239000000411 inducer Substances 0.000 description 1
- 230000006698 induction Effects 0.000 description 1
- 230000000977 initiatory effect Effects 0.000 description 1
- 239000008101 lactose Substances 0.000 description 1
- GVALZJMUIHGIMD-UHFFFAOYSA-H magnesium phosphate Chemical compound [Mg+2].[Mg+2].[Mg+2].[O-]P([O-])([O-])=O.[O-]P([O-])([O-])=O GVALZJMUIHGIMD-UHFFFAOYSA-H 0.000 description 1
- 239000004137 magnesium phosphate Substances 0.000 description 1
- 229910000157 magnesium phosphate Inorganic materials 0.000 description 1
- 229960002261 magnesium phosphate Drugs 0.000 description 1
- 235000010994 magnesium phosphates Nutrition 0.000 description 1
- 229910052943 magnesium sulfate Inorganic materials 0.000 description 1
- 235000019341 magnesium sulphate Nutrition 0.000 description 1
- 229940099596 manganese sulfate Drugs 0.000 description 1
- 239000011702 manganese sulphate Substances 0.000 description 1
- 235000007079 manganese sulphate Nutrition 0.000 description 1
- SQQMAOCOWKFBNP-UHFFFAOYSA-L manganese(II) sulfate Chemical compound [Mn+2].[O-]S([O-])(=O)=O SQQMAOCOWKFBNP-UHFFFAOYSA-L 0.000 description 1
- 239000003550 marker Substances 0.000 description 1
- 235000013372 meat Nutrition 0.000 description 1
- 230000001404 mediated effect Effects 0.000 description 1
- 230000000813 microbial effect Effects 0.000 description 1
- 235000013379 molasses Nutrition 0.000 description 1
- 229910000402 monopotassium phosphate Inorganic materials 0.000 description 1
- 235000019796 monopotassium phosphate Nutrition 0.000 description 1
- 230000004899 motility Effects 0.000 description 1
- 229910052757 nitrogen Inorganic materials 0.000 description 1
- QJGQUHMNIGDVPM-UHFFFAOYSA-N nitrogen group Chemical group [N] QJGQUHMNIGDVPM-UHFFFAOYSA-N 0.000 description 1
- 108020004707 nucleic acids Proteins 0.000 description 1
- 102000039446 nucleic acids Human genes 0.000 description 1
- 230000003071 parasitic effect Effects 0.000 description 1
- 229950009506 penicillinase Drugs 0.000 description 1
- 235000019319 peptone Nutrition 0.000 description 1
- 230000003032 phytopathogenic effect Effects 0.000 description 1
- 239000013600 plasmid vector Substances 0.000 description 1
- GNSKLFRGEWLPPA-UHFFFAOYSA-M potassium dihydrogen phosphate Chemical compound [K+].OP(O)([O-])=O GNSKLFRGEWLPPA-UHFFFAOYSA-M 0.000 description 1
- 102000004196 processed proteins & peptides Human genes 0.000 description 1
- BDERNNFJNOPAEC-UHFFFAOYSA-N propan-1-ol Chemical compound CCCO BDERNNFJNOPAEC-UHFFFAOYSA-N 0.000 description 1
- 235000019260 propionic acid Nutrition 0.000 description 1
- 235000014774 prunus Nutrition 0.000 description 1
- IUVKMZGDUIUOCP-BTNSXGMBSA-N quinbolone Chemical compound O([C@H]1CC[C@H]2[C@H]3[C@@H]([C@]4(C=CC(=O)C=C4CC3)C)CC[C@@]21C)C1=CCCC1 IUVKMZGDUIUOCP-BTNSXGMBSA-N 0.000 description 1
- 238000003259 recombinant expression Methods 0.000 description 1
- PYWVYCXTNDRMGF-UHFFFAOYSA-N rhodamine B Chemical compound [Cl-].C=12C=CC(=[N+](CC)CC)C=C2OC2=CC(N(CC)CC)=CC=C2C=1C1=CC=CC=C1C(O)=O PYWVYCXTNDRMGF-UHFFFAOYSA-N 0.000 description 1
- 150000003839 salts Chemical class 0.000 description 1
- 230000028327 secretion Effects 0.000 description 1
- 239000011780 sodium chloride Substances 0.000 description 1
- 238000003756 stirring Methods 0.000 description 1
- 239000000126 substance Substances 0.000 description 1
- 239000000758 substrate Substances 0.000 description 1
- 239000005720 sucrose Substances 0.000 description 1
- 238000013518 transcription Methods 0.000 description 1
- 230000035897 transcription Effects 0.000 description 1
- 230000009466 transformation Effects 0.000 description 1
- 230000001131 transforming effect Effects 0.000 description 1
- QORWJWZARLRLPR-UHFFFAOYSA-H tricalcium bis(phosphate) Chemical compound [Ca+2].[Ca+2].[Ca+2].[O-]P([O-])([O-])=O.[O-]P([O-])([O-])=O QORWJWZARLRLPR-UHFFFAOYSA-H 0.000 description 1
- 239000012138 yeast extract Substances 0.000 description 1
Images

Landscapes
- Measuring Or Testing Involving Enzymes Or Micro-Organisms (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
Abstract
【課題】細菌を用いたタンパク質の発現時に発現部位を制御することができ、また効率良く発現することができ、かつ高発現時にインクルージョンボディーに取り込まれやすいという欠点を解消した細菌表面発現用ベクター、及び該ベクターを導入した形質転換体を提供すること。
【解決手段】シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含む、細菌表面へ異種蛋白質を発現させるための細菌用発現ベクター。
【選択図】 なし
【解決手段】シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含む、細菌表面へ異種蛋白質を発現させるための細菌用発現ベクター。
【選択図】 なし
Description
【0001】
【発明の属する技術分野】
本発明は、大腸菌などの細菌表面上に異質蛋白質を表現できる氷核形成蛋白質(ice nucleation protein:INP)のN末端及びC末端の核酸配列を含む細菌表面発現用ベクターに関する。さらに、本発明は、上記ベクターを使用した、細菌表面上への異質蛋白質の発現方法及び異種タンパク質の機能の分析方法に関する。
【0002】
【従来技術】
大腸菌などの細菌で組み換えタンパク質を発現する方法は、多く知られているが、タンパク質を位置特異的に発現することは難しい。シュウドモナス・シリンガエの氷核形成タンパク質を用いて形質転換細胞の表層に異種タンパク質を発現する方法が報告されている(特許文献1;非特許文献1〜6)。しかしながら、これらの方法で用いられたものは、表層に発現させる核酸配列が長いため発現が難しく、また発現誘導させるとインクルージョンボディーに取り込まれやすいなどの欠点があった。
【0003】
一方、細菌ではなくファージまたは酵母などの表面にペプチドやタンパク質を発現させ、その機能をスクリーニングすることが知られている(非特許文献7〜10)。しかしながら、ファージに提示されるペプチドは十分な長さのものが得られず、タンパク質の機能を検索することが難しく、取り扱いも煩雑である。一方、酵母の表面に提示する方法は、タンパク質の機能を十分に発揮できることが知られているが、大腸菌などの細菌に比べ増殖に要する期間が長いという決定的な欠点を有する。従って、大腸菌などの細菌の表面に効率良く機能するタンパク質を提示することができれば、これらの欠点を克服した有用なタンパク質機能検索技術を提供することが可能になる。
【0004】
【特許文献1】
米国特許第6,071,725号
【0005】
【非特許文献1】
Heung−Chae Jung et al., Nature Biotechnology Volume 16, 576−560, June 1998
【0006】
【非特許文献2】
E.J.Kim et al., Letters in Applied Microbiology 1999, 29, 292−297
【0007】
【非特許文献3】
Yong−Sung Kim et al., Applied and Environmental Microbiology, Feb.2000, p.788−793
【0008】
【非特許文献4】
Amarjeet S.Bassi et al., Biotechnol. Prog. 2000, 16, 557−563
【0009】
【非特許文献5】
Mark Shimazu et al., Biotechnol. Prog. 2001, 17, 76−80
【0010】
【非特許文献6】
Hee−Sun Jeong et al., Enzyme and Microbial Technology 28 (2001) 155−160
【0011】
【非特許文献7】
植田充美他、現代化学、2001年9月、46〜50頁
【0012】
【非特許文献8】
植田充美他、化学工学、第65巻、第8号(2001)、415〜418頁
【0013】
【非特許文献9】
植田充美他、現代化学、2001年4月、48〜54頁
【0014】
【非特許文献10】
吉村徹他、現代化学、2001年10月、55〜62頁
【0015】
【発明が解決しようとする課題】
本発明は上記した従来技術の問題点を解消することを解決すべき課題とした。即ち、本発明は、氷核形成蛋白質(INP)の特性を利用した細菌表面表現用ベクター、及び該ベクターを導入した形質転換体を提供することを解決すべき課題とした。より具体的には、本発明は、細菌を用いたタンパク質の発現時に発現部位を制御することができ、また効率良く発現することができ、かつ高発現時にインクルージョンボディーに取り込まれやすいという欠点を解消した細菌表面発現用ベクター、及び該ベクターを導入した形質転換体を提供することを解決すべき課題とした。
【0016】
さらに本発明は、この細菌表面発現用ベクターを使用し、異質蛋白質を細菌表面上に発現させ、さらに細菌表面に発現した異種タンパク質の機能を解析する方法を提供することを解決すべき課題とした。より具体的には、本発明は、例えば、工業的に利用価値の高い組み換えリパーゼの活性を容易に検索することを可能にする異種タンパク質の機能解析方法を提供することを解決すべき課題とした。
【0017】
【課題を解決するための手段】
本発明者らは上記課題を解決するために鋭意検討した結果、シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含む発現ベクターに異種タンパク質を組み込むことによって構築した組み換え発現ベクターを用いて大腸菌を形質転換することにより、大腸菌の表面に該異種タンパク質を効率よく発現できることを見出し、本発明を完成するに至った。
【0018】
即ち、本発明によれば、シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含む、細菌表面へ異種蛋白質を発現させるための細菌用発現ベクターが提供される。
【0019】
好ましくは、本発明のベクターは、氷核形成蛋白質(INP)のC末端の下流に異種蛋白質を挿入するためのクローニング部位を有する。
好ましくは、氷核形成蛋白質(INP)のN末端の核酸配列として該蛋白質のN末端の600〜700bpの核酸配列を使用し、C末端の核酸配列として該蛋白質のC末端の500〜600bpの核酸配列を使用する。
【0020】
本発明の別の側面によれば、異種蛋白質をコードする遺伝子を上記した本発明のベクターに宿主内で発現できるように組み込んだ、組み換えベクターが提供される。
好ましくは、異種蛋白質はリパーゼである。
【0021】
本発明のさらに別の側面によれば、上記した本発明の組み換えベクターを導入した形質転換体が提供される。
好ましくは、形質転換体は大腸菌である。
【0022】
本発明のさらに別の側面によれば、上記した本発明の形質転換体を異種蛋白質を発現できる条件下で培養することを含む、細菌の表面に異種蛋白質を発現させる方法が提供される。
本発明のさらに別の側面によれば、上記した本発明の形質転換体を用いて、細菌の表面に発現した異種蛋白質の機能を分析する方法が提供される。
本発明のさらに別の側面によれば、上記した本発明の形質転換体を用いて、細菌の表面に発現した異種蛋白質の機能を分析し、所望の機能を有する異種蛋白質をスクリーニングする方法が提供される。
【0023】
【発明の実施の形態】
以下、本発明の実施の形態を説明する。
(1)細菌用発現ベクター
本発明の細菌表面発現用ベクターは、シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含むことを特徴とするものであり、好ましくは、氷核形成蛋白質(INP)のC末端の下流に異種蛋白質を挿入するためのクローニング部位を有している。
【0024】
シュウドモナス・シリンガエSE1−1株は、特許第3060010号(特開2000−106868号)に記載されている氷核活性細菌の1種である。シュウドモナス・シリンガエSE1−1株の氷核形成蛋白質(INP)の遺伝子は本発明者が今回初めてクローニングし、その遺伝子の塩基配列(配列番号5に記載)が決定された(実施例1の(1)を参照)。本発明では、このシュウドモナス・シリンガエSE1−1株の氷核形成蛋白質(INP)の遺伝子のN末端及びC末端の核酸配列を使用するが、好ましくは、氷核形成蛋白質(INP)のN末端の核酸配列として該蛋白質のN末端の600〜700bpの核酸配列を使用し、C末端の核酸配列として該蛋白質のC末端の500〜600bpの核酸配列を使用することができる。このようなN末端の核酸配列及びC末端の核酸配列の一例としては、本出願の実施例で使用した配列番号6及び7に記載の塩基配列を挙げることができる。
【0025】
シュウドモナス・シリンガエ(Pseudomonas syringae)には、約50の亜種に相当する病原型がある。病原型は、植物に対する寄生性の差異で分けることができる。例えばクワに病原性のあるものはpv. mori,タバコの病原細菌はpv. tabaci等である。このうち特定の病原型(例えばpv. mori)が氷核活性機能を持つことが知られている。シュウドモナス・シリンガエは、基本的な菌学的性質のほか、5つの主要性質で同定するLOPAT法(Lelliottら,J.Appl.Bact.,29巻,470−489頁,1966年)等により同定が可能である。
【0026】
セイタカアワダチソウから分離したシュウドモナス・シリンガエSEI−1株はグラム陰性菌であり、極べん毛をもつ桿菌で運動性のあるのが特徴である。キングB培地(栄研化学製、商品名)で黄緑色蛍光色素を産生するのでPseudomonas属に所属することが容易に確かめられる。さらに、植物病原細菌の簡易同定LOPAT法では、レバン産生(−),オキシダーゼ活性(−),ジャガイモ塊茎腐敗(−),アルギニン加水分解(−),タバコ過敏反応(+)を示し、LOPAT;Ib群に属する。ここで、例えばレバン産生(−)とはレバン活性をもたないことを意味する。従って、本菌株は、Pseudomonas syringaeと同定される。本菌株は、セイタカアワダチソウに病原性を有する。同植物に病原性を示すPseudomonas syringaeはこれまで全く発見されていなかったため、新しい病原型と見なすことができる。菌学的性質のうち、特徴的な性質は、本菌株がLOPAT法に対する極めて特異的反応を示す点である。また、シュウドモナス・シリンガエSEI−1株は、過冷却点(SCP(Super coolingpoint),氷核開始温度)は−1.8℃であり、従来の氷核活性細菌の中にあって氷核活性が最も優れていることが判明している。
【0027】
外側細胞膜蛋白質である氷核形成蛋白質は過冷却した水の中で氷の形成を誘導するという独特の機能を有する。INP遺伝子の中央領域の配列は、氷核形成活性に関与する配列であり、INPのN−及びC−末端のアミノ酸配列は、INPが内側の細胞膜を通過するための分泌シグナル及び標的シグナルであると考えられる。特に、INPのN末端配列は、外側細胞膜上に結合する役割を果たすと考えられる。INPは、細胞表面上に多量に発現し、細胞表面上に発現したINPは、細胞成長の定常期に安定して維持され、INPは外側細胞膜に固定化されて外側表面に露出され、さらにINPは広範なグラム陰性菌で安定的に発現することから、グラム陰性菌の様々な宿主での表面表現用ベクターとして利用することができる。
【0028】
上記した氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を所望のベクター中にクローニングすることにより、本発明の細菌用発現ベクターを構築することができる。本発明で用いるベクターの種類は特に限定されないが、特に好ましくは大腸菌で発現可能な発現ベクターである。
【0029】
本発明で好ましく用いることができるベクターとしては、宿主(好ましくは、大腸菌)に適合した複製開始起点、選択可能なマーカーおよび発現制御配列を含むプラスミドベクターが挙げられる。選択可能なマーカーとしては、アンピシリン耐性遺伝子、テトラサイクリン耐性遺伝子などの抗生物質耐性遺伝子などが挙げられる。
【0030】
発現制御配列とは、DNA配列に適切に連結した場合、このような配列に適合した宿主において、そのDNA配列を発現させることができる配列を意味する。発現制御配列には、少なくともブロモーターが含まれる。例えば、大腸菌を宿主とする場合には、リボソーム結合部位配列、所望により存在するオペレーター、及び転写開始のためのプロモーターを発現制御配列として含むベクターを使用することができる。プロモーターとしては、ラクタマーゼ(ペニシリナーゼ)およびラクトース(lac)プロモータ系、トリプトファン(trp)プロモーター系、ラムダ由来のPLプロモーター、およびN遺伝子リボソーム結合部位、ならびにtrp−lac(trc)プロモーター系、T7プロモーターなどの当分野で常用されるプロモーターを使用することができる。
【0031】
本発明では、市販のベクターを使用することもでき、具体例としては、例えば、大腸菌用としてpTrcHis2B(Invitrogen)、pQE70、pQE60、pQE−9(Qiagen)、pBS、phagescript、psiX174、pBluescript SK、pBsKS、pNH8a、pNH16a、pNH18a、pNH46a(Stratagene)、pTRC99A、pKK223−3、pKK233−3、pDR540、pRIT5(Pharmacia)、pET(NOVAGEN)、pIVEX(Roche)などが挙げられる。
【0032】
(2)本発明の組み換えベクター
上記した本発明の細菌用発現ベクター中に、異種蛋白質をコードする遺伝子を宿主内で発現できるように組み込むことにより組み換えベクターを構築することができる。宿主内で発現できるように組み込むことは、例えば、宿主内で作動可能なプロモーターの下流にシュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列および異種蛋白質をコードする遺伝子を配置し、これらの核酸配列及び遺伝子の発現を該プロモーターの制御下に置くことなどを意味する。
【0033】
本発明で用いる異種タンパク質の種類は特に限定されないが、細菌の表面に発現させることによりその機能を分析することを目的とするタンパク質とすることが好ましい。異種タンパク質の特に好ましい具体例としてはリパーゼが挙げられる。
【0034】
(3)本発明の形質転換体
上記した異種タンパク質を組み込んだ組み換えベクターを導入した形質転換体も本発明の範囲内である。組み換えベクターを導入する宿主としては任意の細菌宿主を挙げることができるが、グラム陰性菌が好ましい。さらに好ましくは、宿主は、大腸菌,アセトバクター(Acetobacter)sp.,シュード(Pseudomonas)sp.,キサンソモナス(Xanthomonas)sp.,エルウイニア(Erwinia)sp.、又はキモモナス(Xymomonas)sp.であり、特に好ましくは大腸菌である。
【0035】
宿主として用いる大腸菌を用いる場合、大腸菌の種類は、組み換えベクター中に挿入した核酸配列を発現できるものであれば特に限定されず、MC1061、DH1、DH5、RR1、B、C600hf1、K803、HB101、JA221、JM101、JM109、BL21など任意の大腸菌株を用いることができる。
形質転換は、当業者に公知の方法に従い行なうことができ、リン酸カルシウムトランスフェクション、DEAE−デキストラン仲介トランスフェクション、又はエレクトロポレーション等によって行なうことができる。
【0036】
(4)本発明の形質転換体を用いた細菌表面への異種蛋白質の発現方法
上記(3)に記載した形質転換体(好ましくは、大腸菌)を適当な条件下で培養することにより、異種タンパク質を細菌表面に発現させることができる。
【0037】
形質転換体を培養する培地は、該微生物が資化し得る炭素源(例えば、グルコース、フラクトース、スクロース、これらを含有する糖蜜、デンプンあるいはデンプン加水分解物等の炭水化物、酢酸、プロピオン酸等の有機酸、エタノール、プロパノールなどのアルコール類が)、窒素源(例えば、アンモニア、塩化アンモニウム、硫酸アンモニウム、酢酸アンモニウム、リン酸アンモニウム、等の各種無機酸や有機酸のアンモニウム塩、その他含窒素化合物、並びに、ペプトン、肉エキス、酵母エキス、コーンスチープリカー、カゼイン加水分解物、大豆粕および大豆粕加水分解物、各種発酵菌体およびその消化物等)、無機塩類(リン酸第一カリウム、リン酸第二カリウム、リン酸マグネシウム、硫酸マグネシウム、塩化ナトリウム、硫酸第一鉄、硫酸マンガン、硫酸銅、炭酸カルシウム等)等を含有し、形質転換体の培養を効率的に行える培地であれば天然培地、合成培地のいずれでもよい。
【0038】
培養は、振盪培養または深部通気撹拌培養などの好気的条件下で行うことが好ましい。培養温度は15〜40℃がよく、培養時間は、通常16時間〜7日間である。培養中pHは、3.0〜9.0に保持する。pHの調整は、無機あるいは有機の酸、アルカリ溶液、尿素、炭酸カルシウム、アンモニアなどを用いて行う。また培養中必要に応じて、アンピシリンやテトラサイクリン等の抗生物質を培地に添加してもよい。
【0039】
プロモーターとして誘導性のプロモーターを用いた発現ベクターで形質転換した細菌を培養するときには、必要に応じてインデューサーを培地に添加してもよい。例えば、lacプロモーターを用いた発現ベクターで形質転換した微生物を培養するときにはイソプロピル−β−D−チオガラクトピラノシド(IPTG)等を、trpプロモーターを用いた発現ベクターで形質転換した微生物を培養するときにはインドールアクリル酸(IAA)等を培地に添加してもよい。
【0040】
(5)細菌表面に発現した異種蛋白質の機能分析方法
本発明では、上記(3)に記載した形質転換体(好ましくは、大腸菌)を適当な条件下で培養することにより異種タンパク質を細菌表面に発現させ、さらに細菌表面に発現した異種蛋白質の機能を分析することができ、さらにこのような分析に基づいて所望の機能を有する異種蛋白質をスクリーニングすることができる。
例えば、異種タンパク質としてリパーゼを使用する場合は、各種のリパーゼを異種タンパク質として細菌に導入して表面に発現させ、培養した形質転換体を用いてリパーゼ活性を酢酸第二銅法などの常法によって測定することができる。所望のリパーゼ活性を有する形質転換体を選択し、該形質転換体から導入したリパーゼをコードする遺伝子を単離・回収することにより、所望の機能を有する異種蛋白質をスクリーニングすることができる。
大腸菌の表層に多様な異種タンパク質を発現し、その機能をスクリーニングすることが出来ると、高活性のタンパク質とその遺伝子配列をスクリーニング中に同時に回収することができる。これは、遺伝型−表現型が一体化されたスクリーニングでありタンパク質の機能改良技術の重要なポイントの一つである。ゲノム解析の進展により遺伝子情報は膨大な量になり多様性も多く知られている。この多様性を有効に利用することは基より、目的とする遺伝子の配列に対して、変異導入、遺伝子・エクソンシャッフリングをする事で、新たなタンパク質を創出することができる。変異導入は、タンパク質の機能の中心となる部分に重点的に変異を入れる場合と全体に渡り変異を入れる場合が有る。また、シャッフリングは、エクソン単位で入れ替える場合とランダムなシャッフリングを行う場合がある。本提示方法ではいずれの変異方法も利用可能である。機能を有する形質転換体を選抜することで、容易に機能タンパク質と遺伝子を入手できる。この際に、ファージや酵母を利用するより迅速な培養かつ取扱いが容易である大腸菌を提示基体に用いるメリットがある。また、大腸菌に突然変異を加えて、より高機能なタンパク質を微生物レベルで研究する事も可能となる。
以下の実施例により本発明をさらに具体的に説明するが、本発明は実施例によって限定されるものではない。
【0041】
【実施例】
実施例1:シュウドモナス・シリンガエSE1−1株に由来する氷核形成タンパク質のN末端及びC末端並びに異種タンパク質(GFP)をコードする核酸配列を含む大腸菌表面発現用ベクターの作成
(1)シュウドモナス・シリンガエSE1−1 由来の氷核活性タンパク質のクローニングと塩基配列の決定
シュウドモナス・シリンガエSE1−1株(特許3060010号)をLB培地中で16時間培養しゲノムDNAをQIAGEN DNeasyキットを用いて回収した。このゲノムDNAに対して、ゲノムPCRを行い(プライマー1及び2を使用)、サブクローニングベクター(pBlueScript II SK−)のNot I , Xho Iサイトへ導入した。サイクルシークエンスのダイターミネイター法で塩基配列を決定した。決定した塩基配列(INA−SE1−1 ORF 4062bp)を配列番号5に記載する。
プライマー1:ATTAGCGGCCGCATGGGAACTCTCGACAAGGC(配列番号1)
プライマー2:ACCGCTCGAGCTACTTTACCTCTATCCAGTCATCG(配列番号2)
【0042】
(2)シュウドモナス・シリンガエSE1−1株に由来する氷核形成タンパク質のN端及びC端のサブクローニング
上記(1)で得られた配列に対してプライマー1及び3を用いてN末端部を、さらにプライマー4及び2を用いてC末端部をサブクローニングベクター(pBlueScript II SK−)のNot I , Xho Iサイトへ導入した。
プライマー3:ACCGCTCGAGGGCAATTAGATCACTGTGGTTGCCA(配列番号3)
プライマー4:ATTAGCGGCCGCGCAAGTTACGGCAGCTCGTTGATTG(配列番号4)
N末端部の核酸配列(INA−NL−651bp)を配列番号6に記載し、C末端部の核酸配列(INA−C−555bp)を配列番号7に記載する。
【0043】
(3)大腸菌表面発現用ベクターの作成
上記(2)で得られたN末端部及びC末端部、並びに異種タンパク質(GFP)をコードする核酸配列を含む大腸菌表面発現用ベクターを以下の通り作成した。
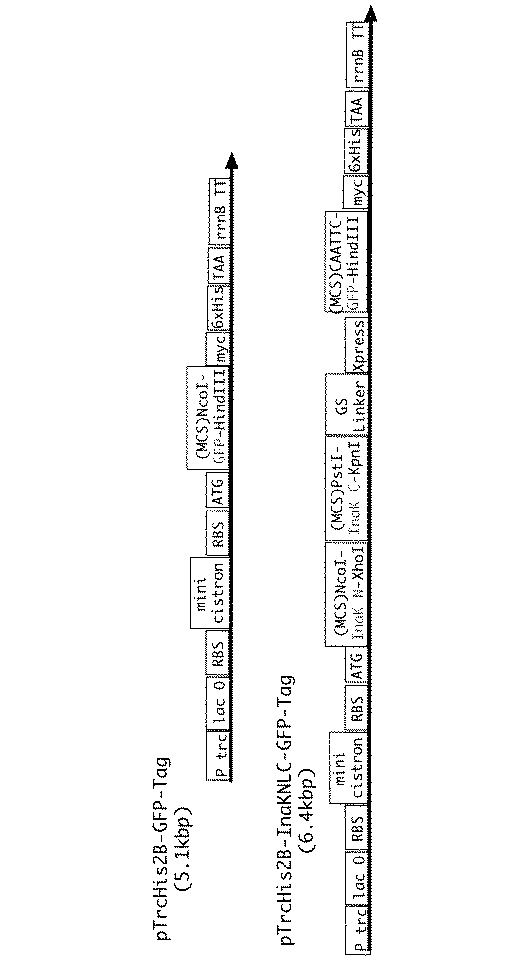
発現ベクターとしてinvitrogen社のpTrcHis2BベクターのNco I−Xho Iサイト間へ氷核活性N末端部、Pst I −Kpn Iサイト間へ氷核活性C末端部、KpnI −EcoR Iサイト間にGlySerリンカー、EcoR I−Hind IIIサイト間にGFPをクローニングした。クローニングする際に翻訳のずれが生じないよう、フレームを合わせる核酸配列を付加した。作成した発現ベクターの核酸配列(INA−NLC−GFP−Tag)を配列番号8に記載する。
【0044】
コントロール発現ベクターとして氷核活性タンパク質のN端、C端部位を含まないベクターを作成した。すなわち、Nco I−Hind IIIサイト間にGFPのみをクローニングした。これは、発現状況の比較に使用した。
構築した発現ベクターの模式図を図1に示す。
【0045】
実施例2:発現ベクターを導入した形質転換体の作成
実施例1で作成したベクターを用いて大腸菌細胞を形質転換し、大腸菌細胞の表面に異種タンパク質(GFP)を発現させた。発現は、JM109コンピテントセルを実施例1の発現ベクターで形質転換し、LB培地で16時間培養した。対数増殖期の大腸菌細胞を希釈しOD0.6になるまで培養した。IPTG 濃度が1mMになるよう添加し発現誘導した。誘導後20時間の発現状況をFACSCANにより観察した。
蛍光観察は、発現したGFPの蛍光、及びHisタグに対し抗His抗体−抗マウスIgG−ローダミン標識抗体の蛍光に対して行った。結果を図2に示す。
氷核活性タンパク質のN末端及びC末端を含む発現ベクターで発現されたGFP連結Hisタグ部は大腸菌細胞の表層に提示されていた。
FACSCAN1:GFP蛍光
FACSCAN2:ローダミン蛍光
【0046】
【発明の効果】
本発明により、大腸菌を用いたタンパク質の発現時に発現部位を制御することができ、また効率良く発現することができ、かつ高発現時にインクルージョンボディーに取り込まれやすいという欠点を解消した大腸菌表面発現用ベクター、及び該ベクターを導入した形質転換大腸菌細胞を提供することが可能になった。
【0047】
【配列表】
【図面の簡単な説明】
【図1】図1は、実施例1で構築した発現ベクターの模式図を示す。
【図2】図2は、シュウドモナス・シリンガエSE1−1株に由来する氷核形成タンパク質のN末端及びC末端並びに異種タンパク質(GFP)をコードする核酸配列を含む大腸菌表面発現用ベクターを導入した大腸菌におけるGFP及びHisの発現状況をFACSCANにより観察した結果を示す。
【発明の属する技術分野】
本発明は、大腸菌などの細菌表面上に異質蛋白質を表現できる氷核形成蛋白質(ice nucleation protein:INP)のN末端及びC末端の核酸配列を含む細菌表面発現用ベクターに関する。さらに、本発明は、上記ベクターを使用した、細菌表面上への異質蛋白質の発現方法及び異種タンパク質の機能の分析方法に関する。
【0002】
【従来技術】
大腸菌などの細菌で組み換えタンパク質を発現する方法は、多く知られているが、タンパク質を位置特異的に発現することは難しい。シュウドモナス・シリンガエの氷核形成タンパク質を用いて形質転換細胞の表層に異種タンパク質を発現する方法が報告されている(特許文献1;非特許文献1〜6)。しかしながら、これらの方法で用いられたものは、表層に発現させる核酸配列が長いため発現が難しく、また発現誘導させるとインクルージョンボディーに取り込まれやすいなどの欠点があった。
【0003】
一方、細菌ではなくファージまたは酵母などの表面にペプチドやタンパク質を発現させ、その機能をスクリーニングすることが知られている(非特許文献7〜10)。しかしながら、ファージに提示されるペプチドは十分な長さのものが得られず、タンパク質の機能を検索することが難しく、取り扱いも煩雑である。一方、酵母の表面に提示する方法は、タンパク質の機能を十分に発揮できることが知られているが、大腸菌などの細菌に比べ増殖に要する期間が長いという決定的な欠点を有する。従って、大腸菌などの細菌の表面に効率良く機能するタンパク質を提示することができれば、これらの欠点を克服した有用なタンパク質機能検索技術を提供することが可能になる。
【0004】
【特許文献1】
米国特許第6,071,725号
【0005】
【非特許文献1】
Heung−Chae Jung et al., Nature Biotechnology Volume 16, 576−560, June 1998
【0006】
【非特許文献2】
E.J.Kim et al., Letters in Applied Microbiology 1999, 29, 292−297
【0007】
【非特許文献3】
Yong−Sung Kim et al., Applied and Environmental Microbiology, Feb.2000, p.788−793
【0008】
【非特許文献4】
Amarjeet S.Bassi et al., Biotechnol. Prog. 2000, 16, 557−563
【0009】
【非特許文献5】
Mark Shimazu et al., Biotechnol. Prog. 2001, 17, 76−80
【0010】
【非特許文献6】
Hee−Sun Jeong et al., Enzyme and Microbial Technology 28 (2001) 155−160
【0011】
【非特許文献7】
植田充美他、現代化学、2001年9月、46〜50頁
【0012】
【非特許文献8】
植田充美他、化学工学、第65巻、第8号(2001)、415〜418頁
【0013】
【非特許文献9】
植田充美他、現代化学、2001年4月、48〜54頁
【0014】
【非特許文献10】
吉村徹他、現代化学、2001年10月、55〜62頁
【0015】
【発明が解決しようとする課題】
本発明は上記した従来技術の問題点を解消することを解決すべき課題とした。即ち、本発明は、氷核形成蛋白質(INP)の特性を利用した細菌表面表現用ベクター、及び該ベクターを導入した形質転換体を提供することを解決すべき課題とした。より具体的には、本発明は、細菌を用いたタンパク質の発現時に発現部位を制御することができ、また効率良く発現することができ、かつ高発現時にインクルージョンボディーに取り込まれやすいという欠点を解消した細菌表面発現用ベクター、及び該ベクターを導入した形質転換体を提供することを解決すべき課題とした。
【0016】
さらに本発明は、この細菌表面発現用ベクターを使用し、異質蛋白質を細菌表面上に発現させ、さらに細菌表面に発現した異種タンパク質の機能を解析する方法を提供することを解決すべき課題とした。より具体的には、本発明は、例えば、工業的に利用価値の高い組み換えリパーゼの活性を容易に検索することを可能にする異種タンパク質の機能解析方法を提供することを解決すべき課題とした。
【0017】
【課題を解決するための手段】
本発明者らは上記課題を解決するために鋭意検討した結果、シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含む発現ベクターに異種タンパク質を組み込むことによって構築した組み換え発現ベクターを用いて大腸菌を形質転換することにより、大腸菌の表面に該異種タンパク質を効率よく発現できることを見出し、本発明を完成するに至った。
【0018】
即ち、本発明によれば、シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含む、細菌表面へ異種蛋白質を発現させるための細菌用発現ベクターが提供される。
【0019】
好ましくは、本発明のベクターは、氷核形成蛋白質(INP)のC末端の下流に異種蛋白質を挿入するためのクローニング部位を有する。
好ましくは、氷核形成蛋白質(INP)のN末端の核酸配列として該蛋白質のN末端の600〜700bpの核酸配列を使用し、C末端の核酸配列として該蛋白質のC末端の500〜600bpの核酸配列を使用する。
【0020】
本発明の別の側面によれば、異種蛋白質をコードする遺伝子を上記した本発明のベクターに宿主内で発現できるように組み込んだ、組み換えベクターが提供される。
好ましくは、異種蛋白質はリパーゼである。
【0021】
本発明のさらに別の側面によれば、上記した本発明の組み換えベクターを導入した形質転換体が提供される。
好ましくは、形質転換体は大腸菌である。
【0022】
本発明のさらに別の側面によれば、上記した本発明の形質転換体を異種蛋白質を発現できる条件下で培養することを含む、細菌の表面に異種蛋白質を発現させる方法が提供される。
本発明のさらに別の側面によれば、上記した本発明の形質転換体を用いて、細菌の表面に発現した異種蛋白質の機能を分析する方法が提供される。
本発明のさらに別の側面によれば、上記した本発明の形質転換体を用いて、細菌の表面に発現した異種蛋白質の機能を分析し、所望の機能を有する異種蛋白質をスクリーニングする方法が提供される。
【0023】
【発明の実施の形態】
以下、本発明の実施の形態を説明する。
(1)細菌用発現ベクター
本発明の細菌表面発現用ベクターは、シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含むことを特徴とするものであり、好ましくは、氷核形成蛋白質(INP)のC末端の下流に異種蛋白質を挿入するためのクローニング部位を有している。
【0024】
シュウドモナス・シリンガエSE1−1株は、特許第3060010号(特開2000−106868号)に記載されている氷核活性細菌の1種である。シュウドモナス・シリンガエSE1−1株の氷核形成蛋白質(INP)の遺伝子は本発明者が今回初めてクローニングし、その遺伝子の塩基配列(配列番号5に記載)が決定された(実施例1の(1)を参照)。本発明では、このシュウドモナス・シリンガエSE1−1株の氷核形成蛋白質(INP)の遺伝子のN末端及びC末端の核酸配列を使用するが、好ましくは、氷核形成蛋白質(INP)のN末端の核酸配列として該蛋白質のN末端の600〜700bpの核酸配列を使用し、C末端の核酸配列として該蛋白質のC末端の500〜600bpの核酸配列を使用することができる。このようなN末端の核酸配列及びC末端の核酸配列の一例としては、本出願の実施例で使用した配列番号6及び7に記載の塩基配列を挙げることができる。
【0025】
シュウドモナス・シリンガエ(Pseudomonas syringae)には、約50の亜種に相当する病原型がある。病原型は、植物に対する寄生性の差異で分けることができる。例えばクワに病原性のあるものはpv. mori,タバコの病原細菌はpv. tabaci等である。このうち特定の病原型(例えばpv. mori)が氷核活性機能を持つことが知られている。シュウドモナス・シリンガエは、基本的な菌学的性質のほか、5つの主要性質で同定するLOPAT法(Lelliottら,J.Appl.Bact.,29巻,470−489頁,1966年)等により同定が可能である。
【0026】
セイタカアワダチソウから分離したシュウドモナス・シリンガエSEI−1株はグラム陰性菌であり、極べん毛をもつ桿菌で運動性のあるのが特徴である。キングB培地(栄研化学製、商品名)で黄緑色蛍光色素を産生するのでPseudomonas属に所属することが容易に確かめられる。さらに、植物病原細菌の簡易同定LOPAT法では、レバン産生(−),オキシダーゼ活性(−),ジャガイモ塊茎腐敗(−),アルギニン加水分解(−),タバコ過敏反応(+)を示し、LOPAT;Ib群に属する。ここで、例えばレバン産生(−)とはレバン活性をもたないことを意味する。従って、本菌株は、Pseudomonas syringaeと同定される。本菌株は、セイタカアワダチソウに病原性を有する。同植物に病原性を示すPseudomonas syringaeはこれまで全く発見されていなかったため、新しい病原型と見なすことができる。菌学的性質のうち、特徴的な性質は、本菌株がLOPAT法に対する極めて特異的反応を示す点である。また、シュウドモナス・シリンガエSEI−1株は、過冷却点(SCP(Super coolingpoint),氷核開始温度)は−1.8℃であり、従来の氷核活性細菌の中にあって氷核活性が最も優れていることが判明している。
【0027】
外側細胞膜蛋白質である氷核形成蛋白質は過冷却した水の中で氷の形成を誘導するという独特の機能を有する。INP遺伝子の中央領域の配列は、氷核形成活性に関与する配列であり、INPのN−及びC−末端のアミノ酸配列は、INPが内側の細胞膜を通過するための分泌シグナル及び標的シグナルであると考えられる。特に、INPのN末端配列は、外側細胞膜上に結合する役割を果たすと考えられる。INPは、細胞表面上に多量に発現し、細胞表面上に発現したINPは、細胞成長の定常期に安定して維持され、INPは外側細胞膜に固定化されて外側表面に露出され、さらにINPは広範なグラム陰性菌で安定的に発現することから、グラム陰性菌の様々な宿主での表面表現用ベクターとして利用することができる。
【0028】
上記した氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を所望のベクター中にクローニングすることにより、本発明の細菌用発現ベクターを構築することができる。本発明で用いるベクターの種類は特に限定されないが、特に好ましくは大腸菌で発現可能な発現ベクターである。
【0029】
本発明で好ましく用いることができるベクターとしては、宿主(好ましくは、大腸菌)に適合した複製開始起点、選択可能なマーカーおよび発現制御配列を含むプラスミドベクターが挙げられる。選択可能なマーカーとしては、アンピシリン耐性遺伝子、テトラサイクリン耐性遺伝子などの抗生物質耐性遺伝子などが挙げられる。
【0030】
発現制御配列とは、DNA配列に適切に連結した場合、このような配列に適合した宿主において、そのDNA配列を発現させることができる配列を意味する。発現制御配列には、少なくともブロモーターが含まれる。例えば、大腸菌を宿主とする場合には、リボソーム結合部位配列、所望により存在するオペレーター、及び転写開始のためのプロモーターを発現制御配列として含むベクターを使用することができる。プロモーターとしては、ラクタマーゼ(ペニシリナーゼ)およびラクトース(lac)プロモータ系、トリプトファン(trp)プロモーター系、ラムダ由来のPLプロモーター、およびN遺伝子リボソーム結合部位、ならびにtrp−lac(trc)プロモーター系、T7プロモーターなどの当分野で常用されるプロモーターを使用することができる。
【0031】
本発明では、市販のベクターを使用することもでき、具体例としては、例えば、大腸菌用としてpTrcHis2B(Invitrogen)、pQE70、pQE60、pQE−9(Qiagen)、pBS、phagescript、psiX174、pBluescript SK、pBsKS、pNH8a、pNH16a、pNH18a、pNH46a(Stratagene)、pTRC99A、pKK223−3、pKK233−3、pDR540、pRIT5(Pharmacia)、pET(NOVAGEN)、pIVEX(Roche)などが挙げられる。
【0032】
(2)本発明の組み換えベクター
上記した本発明の細菌用発現ベクター中に、異種蛋白質をコードする遺伝子を宿主内で発現できるように組み込むことにより組み換えベクターを構築することができる。宿主内で発現できるように組み込むことは、例えば、宿主内で作動可能なプロモーターの下流にシュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列および異種蛋白質をコードする遺伝子を配置し、これらの核酸配列及び遺伝子の発現を該プロモーターの制御下に置くことなどを意味する。
【0033】
本発明で用いる異種タンパク質の種類は特に限定されないが、細菌の表面に発現させることによりその機能を分析することを目的とするタンパク質とすることが好ましい。異種タンパク質の特に好ましい具体例としてはリパーゼが挙げられる。
【0034】
(3)本発明の形質転換体
上記した異種タンパク質を組み込んだ組み換えベクターを導入した形質転換体も本発明の範囲内である。組み換えベクターを導入する宿主としては任意の細菌宿主を挙げることができるが、グラム陰性菌が好ましい。さらに好ましくは、宿主は、大腸菌,アセトバクター(Acetobacter)sp.,シュード(Pseudomonas)sp.,キサンソモナス(Xanthomonas)sp.,エルウイニア(Erwinia)sp.、又はキモモナス(Xymomonas)sp.であり、特に好ましくは大腸菌である。
【0035】
宿主として用いる大腸菌を用いる場合、大腸菌の種類は、組み換えベクター中に挿入した核酸配列を発現できるものであれば特に限定されず、MC1061、DH1、DH5、RR1、B、C600hf1、K803、HB101、JA221、JM101、JM109、BL21など任意の大腸菌株を用いることができる。
形質転換は、当業者に公知の方法に従い行なうことができ、リン酸カルシウムトランスフェクション、DEAE−デキストラン仲介トランスフェクション、又はエレクトロポレーション等によって行なうことができる。
【0036】
(4)本発明の形質転換体を用いた細菌表面への異種蛋白質の発現方法
上記(3)に記載した形質転換体(好ましくは、大腸菌)を適当な条件下で培養することにより、異種タンパク質を細菌表面に発現させることができる。
【0037】
形質転換体を培養する培地は、該微生物が資化し得る炭素源(例えば、グルコース、フラクトース、スクロース、これらを含有する糖蜜、デンプンあるいはデンプン加水分解物等の炭水化物、酢酸、プロピオン酸等の有機酸、エタノール、プロパノールなどのアルコール類が)、窒素源(例えば、アンモニア、塩化アンモニウム、硫酸アンモニウム、酢酸アンモニウム、リン酸アンモニウム、等の各種無機酸や有機酸のアンモニウム塩、その他含窒素化合物、並びに、ペプトン、肉エキス、酵母エキス、コーンスチープリカー、カゼイン加水分解物、大豆粕および大豆粕加水分解物、各種発酵菌体およびその消化物等)、無機塩類(リン酸第一カリウム、リン酸第二カリウム、リン酸マグネシウム、硫酸マグネシウム、塩化ナトリウム、硫酸第一鉄、硫酸マンガン、硫酸銅、炭酸カルシウム等)等を含有し、形質転換体の培養を効率的に行える培地であれば天然培地、合成培地のいずれでもよい。
【0038】
培養は、振盪培養または深部通気撹拌培養などの好気的条件下で行うことが好ましい。培養温度は15〜40℃がよく、培養時間は、通常16時間〜7日間である。培養中pHは、3.0〜9.0に保持する。pHの調整は、無機あるいは有機の酸、アルカリ溶液、尿素、炭酸カルシウム、アンモニアなどを用いて行う。また培養中必要に応じて、アンピシリンやテトラサイクリン等の抗生物質を培地に添加してもよい。
【0039】
プロモーターとして誘導性のプロモーターを用いた発現ベクターで形質転換した細菌を培養するときには、必要に応じてインデューサーを培地に添加してもよい。例えば、lacプロモーターを用いた発現ベクターで形質転換した微生物を培養するときにはイソプロピル−β−D−チオガラクトピラノシド(IPTG)等を、trpプロモーターを用いた発現ベクターで形質転換した微生物を培養するときにはインドールアクリル酸(IAA)等を培地に添加してもよい。
【0040】
(5)細菌表面に発現した異種蛋白質の機能分析方法
本発明では、上記(3)に記載した形質転換体(好ましくは、大腸菌)を適当な条件下で培養することにより異種タンパク質を細菌表面に発現させ、さらに細菌表面に発現した異種蛋白質の機能を分析することができ、さらにこのような分析に基づいて所望の機能を有する異種蛋白質をスクリーニングすることができる。
例えば、異種タンパク質としてリパーゼを使用する場合は、各種のリパーゼを異種タンパク質として細菌に導入して表面に発現させ、培養した形質転換体を用いてリパーゼ活性を酢酸第二銅法などの常法によって測定することができる。所望のリパーゼ活性を有する形質転換体を選択し、該形質転換体から導入したリパーゼをコードする遺伝子を単離・回収することにより、所望の機能を有する異種蛋白質をスクリーニングすることができる。
大腸菌の表層に多様な異種タンパク質を発現し、その機能をスクリーニングすることが出来ると、高活性のタンパク質とその遺伝子配列をスクリーニング中に同時に回収することができる。これは、遺伝型−表現型が一体化されたスクリーニングでありタンパク質の機能改良技術の重要なポイントの一つである。ゲノム解析の進展により遺伝子情報は膨大な量になり多様性も多く知られている。この多様性を有効に利用することは基より、目的とする遺伝子の配列に対して、変異導入、遺伝子・エクソンシャッフリングをする事で、新たなタンパク質を創出することができる。変異導入は、タンパク質の機能の中心となる部分に重点的に変異を入れる場合と全体に渡り変異を入れる場合が有る。また、シャッフリングは、エクソン単位で入れ替える場合とランダムなシャッフリングを行う場合がある。本提示方法ではいずれの変異方法も利用可能である。機能を有する形質転換体を選抜することで、容易に機能タンパク質と遺伝子を入手できる。この際に、ファージや酵母を利用するより迅速な培養かつ取扱いが容易である大腸菌を提示基体に用いるメリットがある。また、大腸菌に突然変異を加えて、より高機能なタンパク質を微生物レベルで研究する事も可能となる。
以下の実施例により本発明をさらに具体的に説明するが、本発明は実施例によって限定されるものではない。
【0041】
【実施例】
実施例1:シュウドモナス・シリンガエSE1−1株に由来する氷核形成タンパク質のN末端及びC末端並びに異種タンパク質(GFP)をコードする核酸配列を含む大腸菌表面発現用ベクターの作成
(1)シュウドモナス・シリンガエSE1−1 由来の氷核活性タンパク質のクローニングと塩基配列の決定
シュウドモナス・シリンガエSE1−1株(特許3060010号)をLB培地中で16時間培養しゲノムDNAをQIAGEN DNeasyキットを用いて回収した。このゲノムDNAに対して、ゲノムPCRを行い(プライマー1及び2を使用)、サブクローニングベクター(pBlueScript II SK−)のNot I , Xho Iサイトへ導入した。サイクルシークエンスのダイターミネイター法で塩基配列を決定した。決定した塩基配列(INA−SE1−1 ORF 4062bp)を配列番号5に記載する。
プライマー1:ATTAGCGGCCGCATGGGAACTCTCGACAAGGC(配列番号1)
プライマー2:ACCGCTCGAGCTACTTTACCTCTATCCAGTCATCG(配列番号2)
【0042】
(2)シュウドモナス・シリンガエSE1−1株に由来する氷核形成タンパク質のN端及びC端のサブクローニング
上記(1)で得られた配列に対してプライマー1及び3を用いてN末端部を、さらにプライマー4及び2を用いてC末端部をサブクローニングベクター(pBlueScript II SK−)のNot I , Xho Iサイトへ導入した。
プライマー3:ACCGCTCGAGGGCAATTAGATCACTGTGGTTGCCA(配列番号3)
プライマー4:ATTAGCGGCCGCGCAAGTTACGGCAGCTCGTTGATTG(配列番号4)
N末端部の核酸配列(INA−NL−651bp)を配列番号6に記載し、C末端部の核酸配列(INA−C−555bp)を配列番号7に記載する。
【0043】
(3)大腸菌表面発現用ベクターの作成
上記(2)で得られたN末端部及びC末端部、並びに異種タンパク質(GFP)をコードする核酸配列を含む大腸菌表面発現用ベクターを以下の通り作成した。
発現ベクターとしてinvitrogen社のpTrcHis2BベクターのNco I−Xho Iサイト間へ氷核活性N末端部、Pst I −Kpn Iサイト間へ氷核活性C末端部、KpnI −EcoR Iサイト間にGlySerリンカー、EcoR I−Hind IIIサイト間にGFPをクローニングした。クローニングする際に翻訳のずれが生じないよう、フレームを合わせる核酸配列を付加した。作成した発現ベクターの核酸配列(INA−NLC−GFP−Tag)を配列番号8に記載する。
【0044】
コントロール発現ベクターとして氷核活性タンパク質のN端、C端部位を含まないベクターを作成した。すなわち、Nco I−Hind IIIサイト間にGFPのみをクローニングした。これは、発現状況の比較に使用した。
構築した発現ベクターの模式図を図1に示す。
【0045】
実施例2:発現ベクターを導入した形質転換体の作成
実施例1で作成したベクターを用いて大腸菌細胞を形質転換し、大腸菌細胞の表面に異種タンパク質(GFP)を発現させた。発現は、JM109コンピテントセルを実施例1の発現ベクターで形質転換し、LB培地で16時間培養した。対数増殖期の大腸菌細胞を希釈しOD0.6になるまで培養した。IPTG 濃度が1mMになるよう添加し発現誘導した。誘導後20時間の発現状況をFACSCANにより観察した。
蛍光観察は、発現したGFPの蛍光、及びHisタグに対し抗His抗体−抗マウスIgG−ローダミン標識抗体の蛍光に対して行った。結果を図2に示す。
氷核活性タンパク質のN末端及びC末端を含む発現ベクターで発現されたGFP連結Hisタグ部は大腸菌細胞の表層に提示されていた。
FACSCAN1:GFP蛍光
FACSCAN2:ローダミン蛍光
【0046】
【発明の効果】
本発明により、大腸菌を用いたタンパク質の発現時に発現部位を制御することができ、また効率良く発現することができ、かつ高発現時にインクルージョンボディーに取り込まれやすいという欠点を解消した大腸菌表面発現用ベクター、及び該ベクターを導入した形質転換大腸菌細胞を提供することが可能になった。
【0047】
【配列表】
【図面の簡単な説明】
【図1】図1は、実施例1で構築した発現ベクターの模式図を示す。
【図2】図2は、シュウドモナス・シリンガエSE1−1株に由来する氷核形成タンパク質のN末端及びC末端並びに異種タンパク質(GFP)をコードする核酸配列を含む大腸菌表面発現用ベクターを導入した大腸菌におけるGFP及びHisの発現状況をFACSCANにより観察した結果を示す。
Claims (10)
- シュウドモナス・シリンガエSE1−1株に由来する氷核形成蛋白質(INP)のN末端及びC末端の核酸配列を含む、細菌表面へ異種蛋白質を発現させるための細菌用発現ベクター。
- 氷核形成蛋白質(INP)のC末端の下流に異種蛋白質を挿入するためのクローニング部位を有する、請求項1に記載のベクター。
- 氷核形成蛋白質(INP)のN末端の核酸配列として該蛋白質のN末端の600〜700bpの核酸配列を使用し、C末端の核酸配列として該蛋白質のC末端の500〜600bpの核酸配列を使用する、請求項1又は2に記載のベクター。
- 異種蛋白質をコードする遺伝子を請求項1から3の何れかに記載のベクターに宿主内で発現できるように組み込んだ、組み換えベクター。
- 異種蛋白質がリパーゼである、請求項4に記載の組み換えベクター。
- 請求項4又は5に記載の組み換えベクターを導入した形質転換体。
- 大腸菌である、請求項6に記載の形質転換体。
- 請求項6又は7に記載の形質転換体を異種蛋白質を発現できる条件下で培養することを含む、細菌の表面に異種蛋白質を発現させる方法。
- 請求項6又は7に記載の形質転換体を用いて、細菌の表面に発現した異種蛋白質の機能を分析する方法。
- 請求項6又は7に記載の形質転換体を用いて、細菌の表面に発現した異種蛋白質の機能を分析し、所望の機能を有する異種蛋白質をスクリーニングする方法。
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2002283121A JP2004113167A (ja) | 2002-09-27 | 2002-09-27 | 細菌表面へ蛋白質を発現させるためのベクター |
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| JP2002283121A JP2004113167A (ja) | 2002-09-27 | 2002-09-27 | 細菌表面へ蛋白質を発現させるためのベクター |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2004113167A true JP2004113167A (ja) | 2004-04-15 |
Family
ID=32277076
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2002283121A Pending JP2004113167A (ja) | 2002-09-27 | 2002-09-27 | 細菌表面へ蛋白質を発現させるためのベクター |
Country Status (1)
| Country | Link |
|---|---|
| JP (1) | JP2004113167A (ja) |
Cited By (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CN101865918A (zh) * | 2009-04-15 | 2010-10-20 | 云南农业大学 | 一种快速鉴定烟草野火病菌的试剂盒及其鉴定方法 |
-
2002
- 2002-09-27 JP JP2002283121A patent/JP2004113167A/ja active Pending
Cited By (1)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CN101865918A (zh) * | 2009-04-15 | 2010-10-20 | 云南农业大学 | 一种快速鉴定烟草野火病菌的试剂盒及其鉴定方法 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| US8759028B2 (en) | Expression cassette, recombinant host cell and process for producing a target protein | |
| CN106978428A (zh) | 一种Cas蛋白特异结合靶标DNA、调控靶标基因转录的方法及试剂盒 | |
| CN101693896B (zh) | 醛脱氢酶基因 | |
| CN108291231A (zh) | 由3-羟基丙酸诱导表达的启动子系统及用其生物生产3-羟基丙酸的方法 | |
| CN103981204A (zh) | 一种有活性的金鱼Tgf2转座子重组转座酶蛋白的表达方法 | |
| ES2612252T3 (es) | Cepa de E. coli BL21 que carece de un complejo génico funcional de los genes capsulares del grupo II | |
| EP2256206B1 (en) | Method and gene for imparting or enhancing nonspecific adherence and/or aggregability to microorganism | |
| CN113774039B (zh) | 重组型dna聚合酶及其应用 | |
| US7888087B2 (en) | Fusion protein of Fc-binding domain and calcium-binding photoprotein, gene encoding the same and use thereof | |
| CN113502309A (zh) | 一种促进大肠杆菌周质表达单域抗体的方法 | |
| CN112481278B (zh) | 一种基于aip诱导的生物传感器及其应用 | |
| CN111378047A (zh) | 一种提高蛋白表达的融合标签蛋白及其应用 | |
| CN109880840B (zh) | 一种重组蛋白大肠杆菌体内生物素化标记系统 | |
| CN109161557B (zh) | 耐辐射戈壁异常球菌碱性蛋白酶基因KerB的应用 | |
| CN102747060A (zh) | D-氨甲酰水解酶的突变体及其制备方法和应用 | |
| CN109022471B (zh) | 生产草酸氧化酶的大肠杆菌表达系统、草酸氧化酶的生产方法及其应用 | |
| CN117165551A (zh) | 一种甲硫氨酸腺苷转移酶突变体及其应用 | |
| CN114478725A (zh) | 一种链霉亲和素突变体及其制备方法和应用 | |
| JP2004512009A5 (ja) | ||
| CN114806912A (zh) | 高效表达菌丝霉素的重组工程菌及其应用 | |
| CN116200362A (zh) | Taq酶突变体及其制备方法和用途 | |
| JP5589369B2 (ja) | 変異ガウシアルシフェラーゼ | |
| CN113603755A (zh) | 谷氨酸棒杆菌蛋白Ncgl1307及其表面展示系统和构建方法 | |
| EP3904520A1 (en) | Gene expression cassette for expressing n-terminal methionine-truncated protein of interest and method for producing n-terminal methionine-truncated protein of interest by using same | |
| Bingle et al. | Definition of form and function for the S-layer of Caulobacter crescentus |