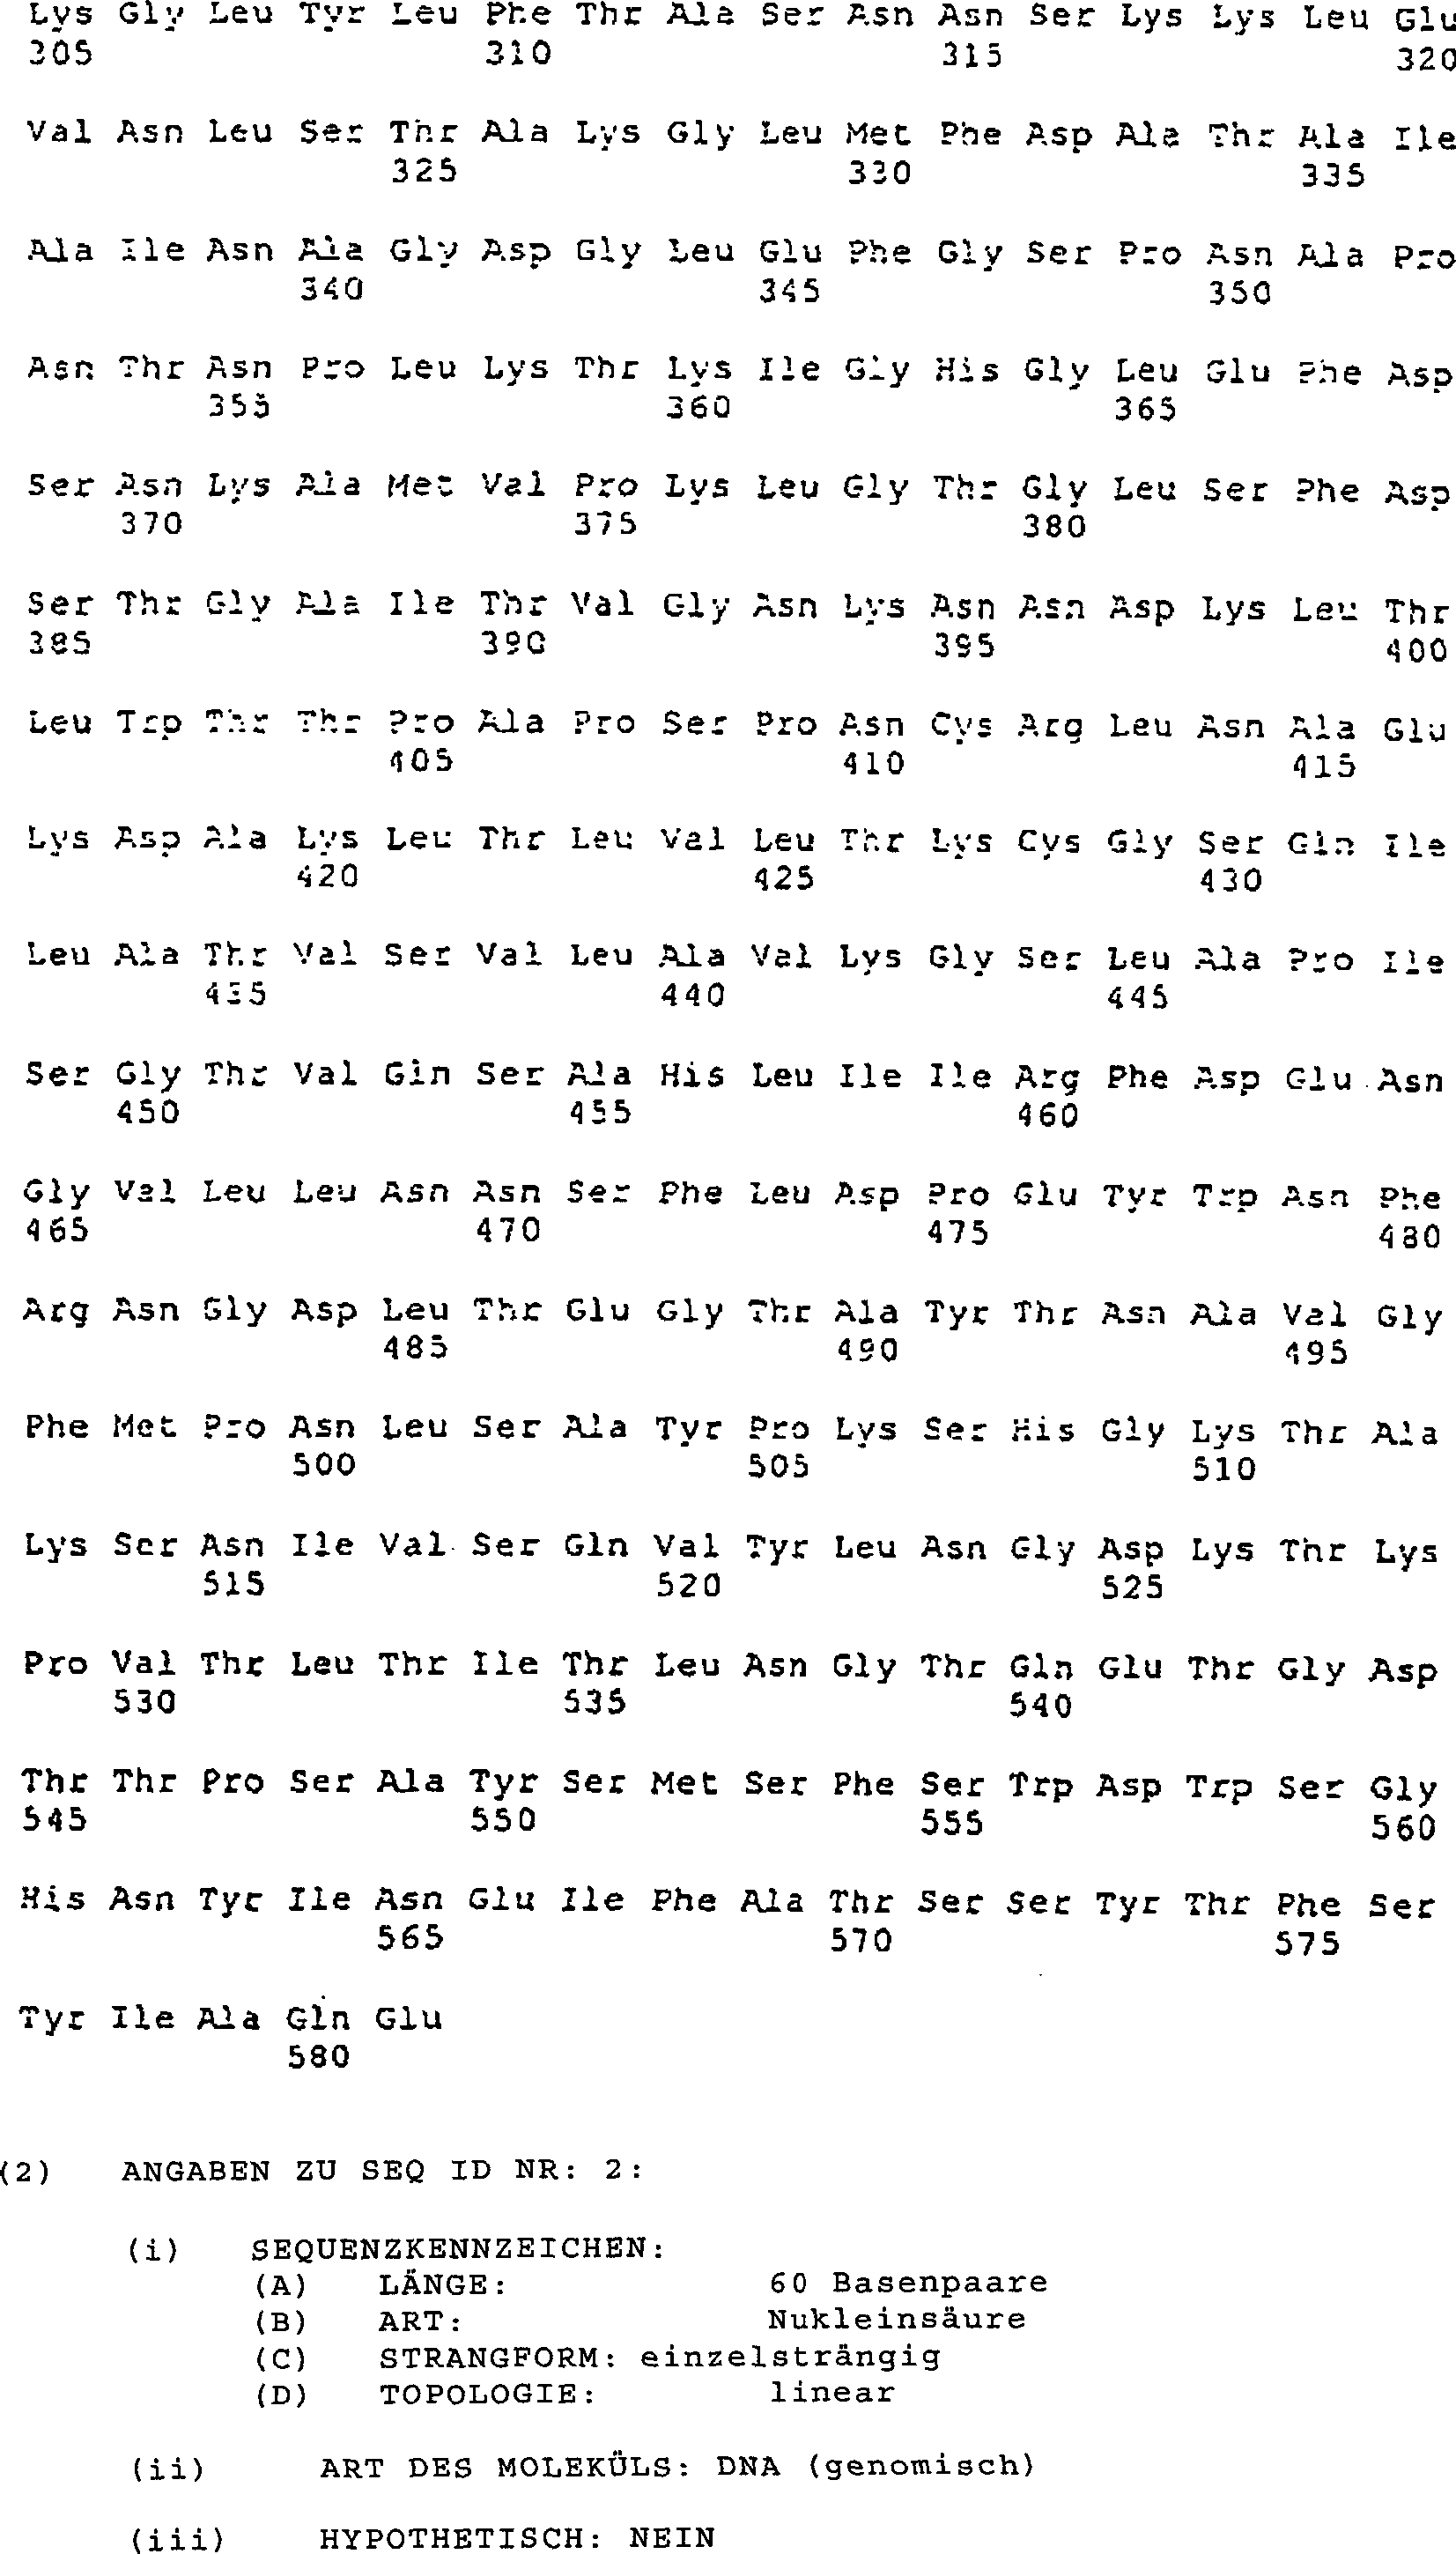-
Die
Erfindung hat eine adenovirale Faser zum Gegenstand, welche in den
an der Erkennung und der Bindung des natürlichen zellulären Rezeptors
der Adenoviren beteiligten Regionen mutiert ist. Sie betrifft gleichfalls
die rekombinanten Adenoviren, die an ihrer Oberfläche eine
solche Faser tragen, und einen Liganden, der diesen eine modifizierte
oder zielgerichtete Wirtsspezifität gegenüber einem bestimmten Zelltyp
verleiht, die Zellen, die diese Adenoviren enthalten, wie auch ein
Verfahren zur Produktion von infektiösen Viruspartikeln ausgehend
von diesen Letzteren, die für
eine therapeutische Verwendung bestimmt sind. Die Erfindung weist
einen ganz besonderen Nutzen in Hinblick auf eine Gentherapie, insbesondere
beim Menschen, auf.
-
Dank
ihrer besonderen Eigenschaften werden die Adenoviren in einer steigenden
Anzahl von Anwendungen im Rahmen einer Gentherapie eingesetzt. Nachgewiesen
in zahlreichen Tierspezies, sind sie wenig pathogen, nicht-integrativ
und replizieren sich ebenso gut in in Teilung befindlichen wie in
ruhenden Zellen. Außerdem
weisen sie ein breites Wirtsspektrum auf und sind in der Lage, eine
sehr große
Anzahl von Zelltypen, wie die Epithelzellen, Endothelzellen, Myozyten,
Hepatozyten, Nervenzellen und Synoviozyten, zu infizieren (Bramson
et al., 1995, Curr. Op. Biotech. 6, 590–595). Indessen könnte dieses
Fehlen von Infektionsspezifität eine
Barriere für
die Verwendung der rekombinanten Adenoviren bilden einerseits aufgrund
der Sicherheit, denn es kann dabei eine Ausbreitung des rekombinanten
Gens in dem Wirtsorganismus geben, und andererseits aufgrund der
Wirksamkeit, denn das Virus infiziert nicht spezifisch den Zelltyp,
den man zu behandeln wünscht.
-
Allgemein
wird das adenovirale Genom aus einem Molekül linearer, doppelsträngiger und
ungefähr
36 kb großer
DNA gebildet, welche die die viralen Proteine kodierenden Gene und
an ihren Enden zwei invertierte Sequenzwiederholungen (welche als
ITR für „Inverted
Terminal Repeat" (invertierte
terminale Sequenzwiederholung) bezeichnet werden), welche an der
Replikation beteiligt sind, und die Verkapselungsregion enthält. Die frühen Gene
sind in 4 in dem adenoviralen Genom verstreuten Regionen (E1 bis
E4; E für „early" (früh) im Englischen)
verteilt, welche 6 Transkriptionseinheiten, welche mit ihren eigenen
Promotoren ausgestattet sind, umfassen. Die späten Gene (L1 bis L5; L für „late" (spät) im Englischen) überspannen
teilweise die frühen
Transkriptionseinheiten und werden zumeist ausgehend von dem hauptsächlichen
späten
Promotor MLP (für „Major
Late Promoter" im
Englischen) transkribiert.
-
Zur
Unterrichtung sind alle im Rahmen der Gentherapieprotokolle verwendeten
Adenoviren replikationsdefizient durch Deletion von wenigstens der
Region E1 und werden vermehrt in einer Komplementationszelllinie,
die in trans die deletierten viralen Funktionen bereitstellt. Man
setzt üblicherweise
die Linie 293 ein, welche ausgehend von embryonalen humanen Nierenzellen
etabliert worden ist, die wirksam die E1-Funktion komplementiert (Graham et al.,
1977, J. Gen. Virol. 36, 59–72).
Unlängst
wurden in der Literatur Vektoren der zweiten Generation vorgeschlagen.
Sie bewahren die für
die Replikation des Virus in der infizierten Zelle erforderlichen
Regionen in cis (ITRs und Verkapselungssequenzen) und umfassen bedeutende
interne Deletionen, welche darauf abzielen, die Hauptmenge der viralen
Gene, deren Expression in vivo zu der Etablierung von Entzündungs-
oder Immunreaktionen beim Wirt führen
könnte,
zu unterdrücken.
Die adenoviralen Vektoren und deren Herstellungstechnik sind Gegenstand
zahlreicher Veröffentlichungen,
die den Fachleuten auf diesem Gebiet zugänglich sind, gewesen.
-
Der
Infektionszyklus der Adenoviren läuft in 2 Schritten ab. Die
frühe Phase
geht der Initiation der Replikation voraus und erlaubt, die frühen Proteine
zu produzieren, die die Replikation und die Transkription der viralen
DNA regulieren. Der Replikation des Genoms folgt die späte Phase,
während
welcher die Strukturproteine, die die Viruspartikel bilden, synthetisiert
werden. Der Zusammenbau der neuen Virionen findet im Kern statt.
Zunächst
lagern sich die viralen Proteine so zusammen, dass sie leere Capside
von Ikosaederstruktur bilden, in welchen das Genom verkapselt wird.
Die freigesetzten Adenoviren sind in der Lage, andere permissive
Zellen zu infizieren. In dieser Hinsicht spielen die Faser und die
Penton-Base, die auf der Oberfläche
der Capside vorhanden sind, eine kritische Rolle bei der Zellanheftung
der Virionen und deren Internalisierung.
-
Das
Adenovirus bindet an einen auf der Oberfläche der permissiven Zellen
vorhandenen zellulären Rezeptor
durch das Zwischenglied der trimeren Faser (Philipson et al., 1968,
J. Virol. 2, 1064–1075;
Defer et al., 1990, J. Virol., 64, 3661–3673). Das Partikel wird dann
durch Endozytose durch die Bindung der Penton-Base an die zellulären Integrine αvβ3 und αvβ5 internalisiert
(Mathias et al., 1994, J. Virol. 68, 6811–6814). Das Vermögen der
löslichen
Faser oder von Anti-Faser-Antikörpern, die
Infektion zu inhibieren, zeigt deren Rolle bei der zellulären Anheftung
des Virus.
-
Die
Faser wird aus 3 Domänen
gebildet (Chroboczek et al., 1995, Current Top. Microbiol. Immunol. 199,
165–200):
- (1) Am N-Terminus wechselwirkt der von einem
Serotyp zum anderen hoch konservierte Schwanz mit der Penton-Base
und stellt die Verankerung des Moleküls im Capsid sicher.
- (2) Der Stiel ist eine stäbchenartige
Struktur, welche aus einer bestimmten Anzahl von β-Faltblatt-Wiederholungen,
wobei diese Anzahl je nach Serotyp variiert, gebildet wird.
- (3) Schließlich
ist am distalen Ende des Stiels der Kopf eine globuläre kugelförmige Struktur,
die die Trimerisierungssignale enthält (Hong und Engler, 1996,
J. Virol. 70, 7071–7078;
Novelli und Boulanger, 1991, J. Biol. Chem. 266, 9299–9303; Novelli
und Boulanger, 1991, Virology 185, 365–376). Überdies zeigt der größte Teil
der experimentellen Daten, dass die Domäne des Kopfes für die Bindung
an die permissiven Zellen verantwortlich ist (Henry et al., 1994,
J. Virol. 68, 5239–5246;
Louis et al., 1994, J. Virol. 68, 4104–4106).
-
„Mit zielgerichteter
Spezifität
versehene" Adenoviren,
deren native Faser derart modifiziert ist, dass sie einen unterschiedlichen
zellulären
Rezeptor erkennt, sind bereits in der Literatur vorgeschlagen worden.
So beschreibt WO 94/10323 Mutanten der Faser von Ad5, in welchen
eine Sequenz, welche ein Antikörperfragment
(vom Typ scFv) kodiert, an dem Ende von einer der 22 Wiederholungseinheiten
des Stiels inseriert worden ist mit dem Ziel, die Infektionsspezifität gegenüber den
Zellen, welche das Zielantigen präsentieren, zu modifizieren.
US 5,543,328 beschreibt
eine chimäre
Ad5-Faser, in welcher die Domäne
des Kopfes durch den Tumornekrosefaktor (TNF) derart ersetzt ist,
dass diese mit dem zellulären
TNF-Rezeptor wechselwirkt. Bei einem anderen Konstrukt ist die native
Faser von Ad5 an ihrem C-terminalen Ende mit dem Peptid ApoE fusioniert,
welches eine Bindung an den LDL-Rezeptor (für „low density lipoprotein" (Lipoprotein niedriger
Dichte) im Englischen), welcher auf der Oberfläche der Leberzellen vorhanden
ist, erlaubt. WO 95/26412 beschreibt eine durch Einbau eines Liganden
an dem C-terminalen Ende modifizierte Faser, die deren Trimerisierungsfähigkeiten
bewahrt. WO 96/26281 beschreibt eine chimäre Faser, welche durch Ersetzen
eines Teils der nativen Faser und insbesondere des Kopfes, durch
den äquivalenten
Teil einer adenoviralen Faser eines anderen Serotyps und gegebenenfalls
durch Insertion eines für
Vitronectin spezifischen RGD-Peptids am C-terminalen Ende erhalten
wird.
-
Gall
et al., J. Virol. Band 70, 1996, S. 2116–2123, beschreiben die Herstellung
eines chimären
Adenovirus, bei welcher man die vollständige Substitution der Fasern
des Adenovirus vom Typ 5 durch Fasern von Adenoviren vom Typ 7 vornimmt.
Diese vollständige
Substitution (Kopf, Stiel und Schwanz der Faser) ist dazu bestimmt,
die Erkennungsspezifität
des adenoviralen Partikels zu modifizieren. McClelland et al., J.
Cell. Biochem., 1995, S. 411, beschreiben das Ersetzen des Kopfes
der Ad5-Faser (begrenzt durch die Nukleotide 405–592) durch eine Sequenz, welche
in der Lage ist, eine Bindungsstelle zu erkennen, welche von jener
der Ad5-Faser verschieden ist. Nach dieser Substitution der Gesamtheit
des Kopfes der Faser stellen die Autoren fest, dass es möglich ist,
die Erkennungsspezifität
der adenoviralen Faser zu modifizieren.
-
Wie
zuvor angegeben, wird die Infektionsspezifität eines Adenovirus durch die
Anheftung der adenoviralen Faser an einen zellulären Rezeptor, der sich auf
der Oberfläche
der permissiven Zellen befindet, bestimmt. Die französische Patentanmeldung
97 01005 hat die Rolle der Antigene des Haupthistokompatibilitätskomplexes
der Klasse I und der Module III von Fibronectin als primärer Rezeptor
bzw. als Cofaktor der Adenoviren nachgewiesen. Es können aber
auch andere Proteine beteiligt sein. In dieser Hinsicht haben neuere Arbeiten
die Nutzung des zellulären
Rezeptors des Coxsackievirus durch die Adenoviren der Typen 2 und
5, um in deren Zielzellen einzudringen, vorgeschlagen (Bergelson
et al., 1997, Science 275, 1320–1323).
Das Problem, das sich die Erfindung vornimmt, zu lösen, besteht
darin, die Wechselwirkungsregion der adenoviralen Faser mit dem/den
zellulären
Rezeptor(en) zu modifizieren, um die natürliche Wirtsspezifität der Adenoviren,
die die mutierte Faser tragen, zu verändern. Um das Verständnis zu
erleichtern, wird nachfolgend der Begriff „zellulärer Rezeptor" der Adenoviren verwendet,
um das oder die zellulären
Polypeptide zu bezeichnen, die direkt oder nicht an der Bindung
der Adenoviren an deren natürliche
Zielzellen oder an dem Eindringen in diese Letzteren beteiligt sind.
Selbstverständlich
kann der Rezeptor je nach Serotyp unterschiedlich sein. Das Hinzufügen eines
Liganden erlaubt, einen neuen Tropismus gegenüber einem oder mehreren spezifischen Zelltypen,
welche auf ihrer Oberfläche
ein Zielmolekül,
welches durch den fraglichen Liganden erkannt wird, tragen, zu verleihen.
-
Die
Erfindung stellt eine Verbesserung des Standes der Technik dar,
da sie die Regionen der Faser offenbart, die zu mutieren sind, um
die Bindung an den natürlichen
zellulären
Rezeptor der Adenoviren zu hemmen oder zu verhindern. Es wurden
jetzt ein oder mehrere Reste der Region 443 bis 462 des Kopfes der Ad5-Faser
substituiert und eine Inhibition der Infektiosität der entsprechenden Adenoviren
gegenüber
normalerweise permissiven Zellen gezeigt. Die Einführung des
GRP-Liganden (für „gastrin
releasing peptide" im
Englischen; Gastrin-freisetzendes Peptid) in diese Fasern müsste es
erlauben, die Infektion in Richtung der Zellen, welche den Rezeptor
für GRP
exprimieren, zu dirigieren. Das Ziel der Erfindung besteht darin,
die einzusetzenden therapeutischen Mengen von Adenoviren zu verringern
und die Infektion zielgerichtet in Richtung der zu behandelnden
Zellen zu dirigieren. Diese Spezifität ist unabdingbar, wenn man
ein Adenovirus einsetzt, welches ein zytotoxisches Gen exprimiert,
um die Ausbreitung der zytotoxischen Wirkung in gesunden Zellen
zu vermeiden. Die durch die Erfindung bereitgestellten Vorteile
bestehen darin, die Ausbreitungsrisiken und die mit der adenoviralen
Technologie verbundenen Nebenwirkungen zu verringern.
-
Aus
diesem Grunde hat die Erfindung eine Faser eines Adenovirus, welche
durch Mutation von einem oder mehreren Resten der Faser modifiziert
ist, zum Gegenstand, welche dadurch gekennzeichnet ist, dass die
Reste in Richtung des natürlichen
zellulären
Rezeptors der Adenoviren gerichtet sind.
-
Der
Begriff „Faser" wird im Einführungsabschnitt
breit definiert. Die Faser der Erfindung kann sich von einem Adenovirus
humaner Herkunft, von Hund-, Vogel-, Rinder-, Maus-, Schaf-, Schwein-
oder Affen-Herkunft
ableiten oder ferner hybrid sein und Fragmente unterschiedlicher
Herkunft umfassen. Betreffend die humanen Adenoviren wird bevorzugt,
jene des Serotyps C und insbesondere die Adenoviren vom Typ 2 oder
5 (Ad2 oder Ad5) einzusetzen. Es wird angegeben, dass die Faser
von Ad2 580 Aminosäuren
(AS) umfasst, deren Sequenz in Herissé et al. (1981, Nucleic Acid
Res. 9, 4023–4042)
offenbart wird. Jene von Ad5 weist 582 AS auf und deren in der Sequenzbeschreibung
1 (SEQ ID NR: 1) aufgeführte
Sequenz wurde von Chroboczek und Jacrot (1987, Virology 161, 549–554) offenbart.
Wenn die Faser der Erfindung von einem tierischen Adenovirus stammt,
greift man bevorzugt auf die Rinder-Adenoviren und insbesondere jene des
Stamms BAV-3 zurück.
Diese Letzteren haben den Gegenstand von zahlreichen Untersuchungen
gebildet und die Sequenz der Faser wird in der Internationalen Anmeldung
WO 95/16048 offenbart. Selbstverständlich kann die Faser der Erfindung
andere Modifizierungen bezogen auf die native Sequenz außer jenen,
die den Gegenstand der Erfindung bilden, aufweisen.
-
Gemäß den durch
die Erfindung verfolgten Zielen ist die erfindungsgemäße Faser
derart modifiziert, dass deren Bindungsfähigkeit an den natürlichen
zellulären
Rezeptor verringert oder vernichtet ist. Eine solche Eigenschaft
kann durch die Untersuchung der Infektiosität oder der Bindung der entsprechenden
Viren an Zellen unter Anwendung der Techniken dieses Fachgebiets,
wie jenen, die nachfolgend detailliert erläutert werden, verifiziert werden.
Gemäß einer
vorteilhaften Ausführungsweise
werden die Eigenschaften der Trimerisierung und der Bindung an die
Penton-Base nicht beeinflusst.
-
Im
Sinne der Erfindung bezeichnet der Ausdruck „Mutation" eine Deletion, eine Substitution oder
ferner ein Hinzufügen
von einem oder mehreren Resten oder eine Kombination dieser Möglichkeiten.
Man bevorzugt insbesondere den Fall, wo die für die Wechselwirkung mit dem
natürlichen
zellulären
Rezeptor zuständigen
Regionen in ihrer Gesamtheit oder teilweise deletiert und insbesondere
durch einen für
ein anderes Zell- Oberflächenprotein
als den natürlichen
Rezeptor der Adenoviren spezifischen Liganden ersetzt sind.
-
Die
dreidimensionale kristallographische Struktur des adenoviralen Kopfs
wurde von Xia et al. (1994, Structure 2, 1259–1270) bestimmt. Jedes Monomer
umfasst 8 antiparallele β-Faltblätter, welche
als A bis D und G bis J bezeichnet werden und 6 hauptsächliche
Schleifen mit 8 bis 55 Resten. Beispielsweise verbindet die CD-Schleife
das β-Faltblatt
C mit dem β-Faltblatt
D. Es wird angegeben, dass die kleineren Faltblätter E und F so aufgefasst
werden, dass sie einen Teil der DG-Schleife, die sich zwischen den
Faltblättern
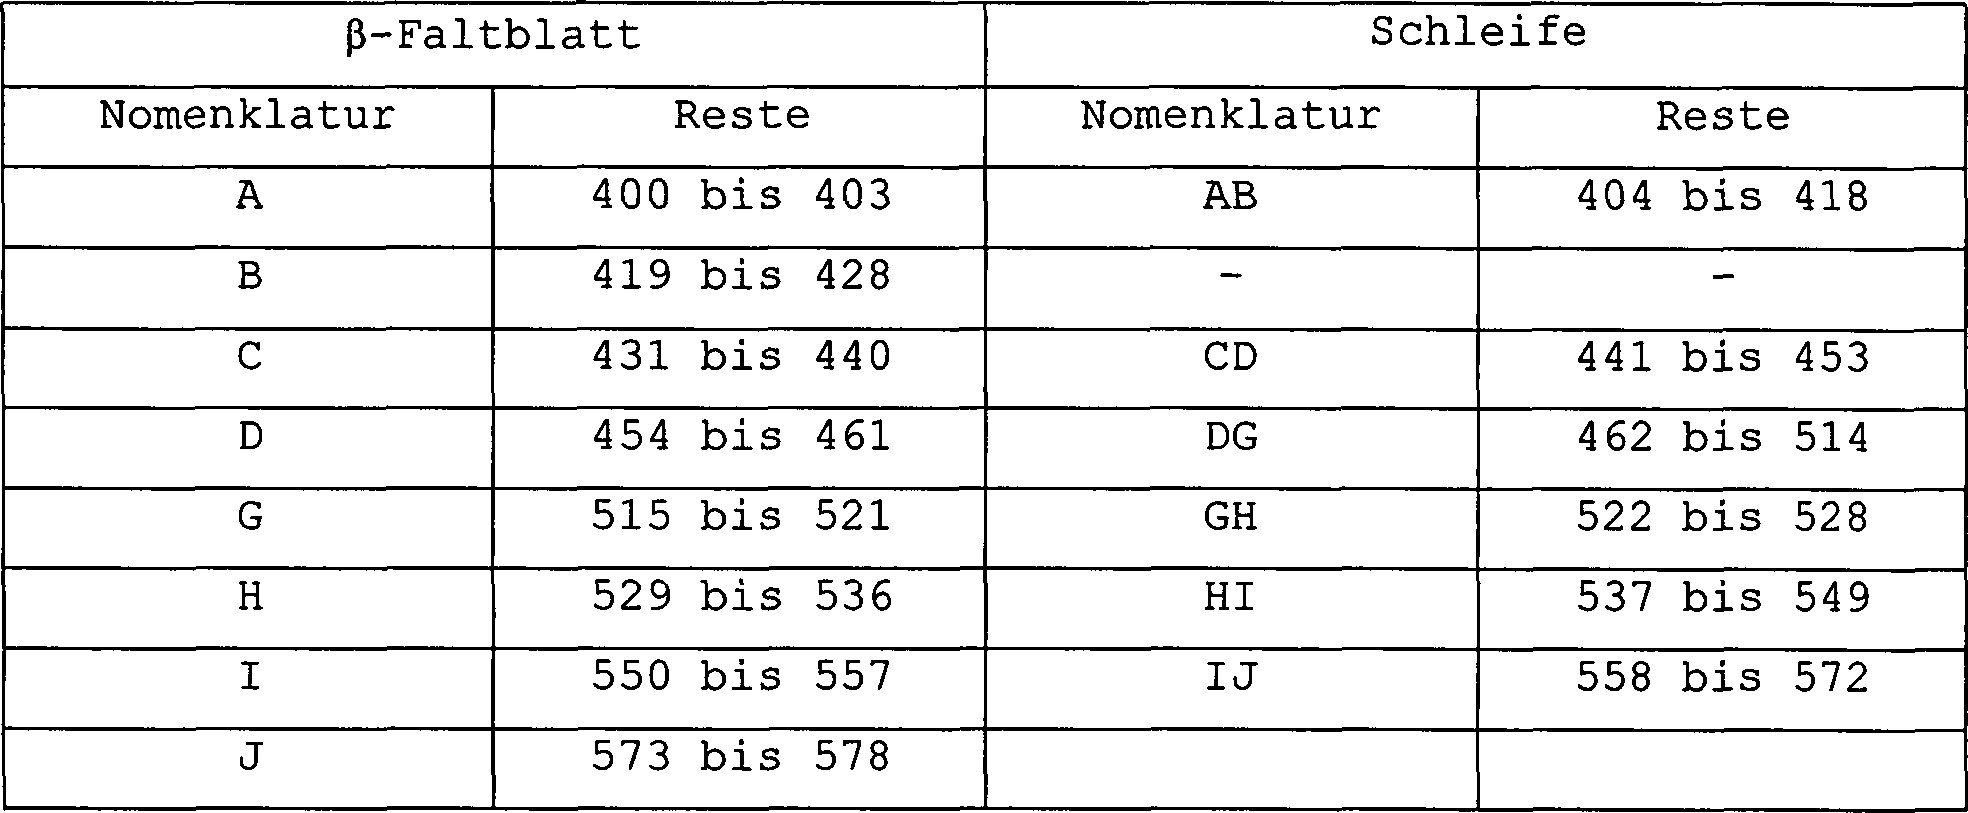
D und G befindet, bilden. Zur Unterrichtung gibt die Tabelle 1 die
Lage von diesen Strukturen in der Aminosäuresequenz der Faser von Ad5,
wie sie in der Sequenzbeschreibung Nr. 1 (SEQ ID NR: 1) gezeigt
ist, an, wobei das +1 den Met-Startrest
angibt. Allgemein bilden die Faltblätter eine wohlgeordnete und
kompakte Struktur, wohingegen die Schleifen flexibler sind. Diese
Begriffe sind auf dem Gebiet der Biochemie der Proteine klassisch und
werden in den Grundlagenwerken definiert (siehe beispielsweise Stryer,
Biochemistry, 2. Auflage, Kap. 2, S. 11 bis 39, Hrsg. Freeman und
Company, San Francisco).
-
-
Die
vier β-Faltblätter A,
B, C und J bilden die Faltblätter
V, welche in Richtung des Viruspartikels gerichtet sind. Die vier
anderen (D, G, H und I) bilden die Faltblätter R, von welchen angenommen
wird, dass sie dem zellulären
Rezeptor gegenüber
liegen. Die Faltblätter
V schei nen eine bedeutende Rolle bei der Trimerisierung der Struktur
zu spielen, wohingegen die Faltblätter R an der Wechselwirkung
mit dem Rezeptor beteiligt sein sollen. Die Reste der Faser von
Ad2, Ad3, Ad5, Ad7, Ad40, Ad41 und des Hunde-Adenovirus CAV, welche
diese unterschiedlichen Strukturen bilden, sind in der vorangegangenen
Referenz eindeutig angegeben.
-
Die
Modifikationen der adenoviralen Faser gemäß der Erfindung berühren insbesondere
den Teil, welcher die CD-Schleife, das Faltblatt D und den proximalen
Teil der DG-Schleife (Positionen 441 bis 478 der Faser von Ad2 und
von Ad5) umfasst, und insbesondere die Region, welche sich von den
Resten 443 bis 462, was Ad5 angeht, oder 451 bis 466 in dem Falle
von Ad2 erstreckt. Die andere Zielregion für die Modifikationen ist das
Faltblatt H (AS 529 bis 536 der Ad5-Faser und der Faser von Ad2).
Eine andere Alternative besteht in der Modifizierung der kleineren
Faltblätter
E (AS 479–482
Ad5) und F (AS 485–486
Ad5).
-
Wie
zuvor angegeben, kann man durch Substitution von einer oder mehreren
Aminosäuren
in den erläuterten
Regionen vorgehen. Man kann in dieser Hinsicht die folgenden Beispiele
aufführen,
die sich von der Faser von Ad5 ableiten, in welcher:
- – der
Glycinrest an Position 443 durch eine Asparaginsäure ersetzt ist,
- – der
Leucinrest an Position 445 durch ein Phenylalanin ersetzt ist,
- – der
Glycinrest an Position 450 durch ein Asparagin ersetzt ist,
- – der
Threoninrest an Position 451 durch ein Lysin ersetzt ist,
- – der
Valinrest an Position 452 durch ein Asparagin ersetzt ist,
- – der
Alaninrest an Position 455 durch ein Phenylalanin ersetzt ist,
- – der
Leucinrest an Position 457 durch ein Alanin oder ein Lysin ersetzt
ist und/oder
- – der
Isoleucinrest an Position 459 durch ein Alanin ersetzt ist.
-
Es
ist gleichfalls möglich,
mehrere Substitutionen in die Zielregion der Faser insbesondere
auf der Ebene der Aminosäuren,
welche eine Krümmung,
vorzugsweise vom Typ αα (siehe Tabelle
2 von Xia et al., 1994, a.a.O.), bilden, einzuführen. Zur Veranschaulichung
kann man die beiden folgenden Beispiele aufführen, in welchen die Faser
von Ad5 modifiziert ist durch Substitution:
- – des Glycinrests
an Position 443 durch eine Asparaginsäure,
- – des
Serinrests an Position 444 durch ein Lysin und
- – des
Alaninrests an Position 446 durch ein Threonin; oder ferner
- – des
Serinrests an Position 449 durch eine Asparaginsäure,
- – des
Glycinrests an Position 450 durch ein Lysin,
- – des
Threoninrests an Position 451 durch ein Leucin und
- – des
Valinrests an Position 452 durch ein Threonin.
-
Selbstverständlich sind
die für
eine Ersetzung in Frage kommenden Aminosäuren lediglich beispielhaft erwähnt und
es kann eine jegliche Aminosäure
für die
Zwecke der Erfindung geeignet sein. Indessen wird bevorzugt, die
dreidimensionale Struktur nicht drastisch zu modifizieren. Bevorzugt
werden die Aminosäuren,
die eine Krümmung
bilden, durch Reste ersetzt, welche eine ähnliche Struktur bilden, wie
jene, die in der Referenz Xia et al., die bereits erwähnt worden
ist, aufgeführt
sind.
-
Die
Faser der Erfindung kann gleichfalls durch Deletion modifiziert
werden. Die entfernte Region kann die Gesamtheit oder einen Teil
der erläuterten
Domäne
betreffen und insbesondere der CD-Schleife, des Faltblatts D, der
Schleife DG und/oder der Faltblätter
E und F. Bezüglich
einer Faser von Ad5 gemäß der Erfindung kann
man insbesondere aufführen
die Deletion:
- – der Region, welche sich von
dem Serin an Position 454 bis zu dem Phenylalanin an Position 461
erstreckt,
- – der
Region, welche sich von dem Valin an Position 441 bis zu dem Glutamin
an Position 453 erstreckt,
- – der
Region, welche sich von dem Valin an Position 441 bis zu dem Phenylalanin
an Position 461 erstreckt oder
- – der
Region, welche sich von dem Asparagin an Position 479 bis zu dem
Threonin an Position 486 erstreckt.
-
Es
ist gleichfalls möglich,
andere Substitutions- oder Deletionsmutanten in den anderen Faltblättern oder
Schleifen zu erzeugen, wie beispielsweise den Faltblättern G,
H und I und den Schleifen HI und DG.
-
Es
ist gleichfalls möglich,
dass, wenn wenigstens eine der Modifikationen eine Deletion von
wenigstens 3 aufeinanderfolgenden Resten einer Schleife und/oder
eines Faltblatts ist, die deletierten Reste ersetzt werden können durch
Reste einer äquivalenten
Schleife und/oder eines äquivalenten
Faltblatts, abgeleitet von einer Faser eines zweiten Adenovirus,
welches in der Lage ist, mit einem zellulären Rezeptor, welcher sich
von jenem, der durch das erste Adenovirus erkannt wird, unterscheidet,
zu wechselwirken. Das zweite Adenovirus kann von irgendeiner humanen
oder tierischen Herkunft sein. Dies erlaubt, die Struktur der erfindungsgemäßen Faser
beizubehalten, wobei dieser zugleich eine Wirtsspezifität, die jener
des zweiten Adenovirus entspricht, verliehen wird. Wie in Xia et
al. (1994, a.a.O.) angegeben, unterscheidet sich der zelluläre Rezeptor, welcher
die Infektion durch die Adenoviren der Typen 2 und 4 vermittelt,
von jenem, der mit den Adenoviren der Typen 3 und 7 wechselwirkt.
So kann eine Faser von Ad5 oder von Ad2, bei welcher wenigstens
3 aufeinanderfolgende Reste unter jenen, die oben spezifiziert worden
sind, deletiert worden sind, durch Reste, welche aus einer äquivalenten
Region der Faser von Ad3 oder von Ad7 stammen, substituiert werden,
um deren Vermögen,
an den Rezeptor von Ad5 zu binden, zu verringern und jener eine
neue Spezifität
in Richtung des zellulären
Rezeptors von Ad3 oder Ad7 zu verleihen. Als nicht einschränkendes
Beispiel kann man das Ersetzen der Reste LAPISGTVQSAHLIIRFD (Positionen
445 bis 462) der Faser von Ad5 durch die Reste VNTLFKNKNVSINVELYFD
der Faser von Ad3 oder das Ersetzen der Reste PVTLTITL (Position
529 bis 536) der Faser von Ad5 durch die Reste PLEVTVML der Faser
von Ad3 aufführen.
-
Die
Erfindung betrifft gleichfalls eine Faser eines Adenovirus, welche
ein substantiell verringertes Bindungsvermögen an den natürlichen
zellulären
Rezeptor aufweist und gleichwohl in der Lage ist, zu trimerisieren
und die Penton-Base zu binden. Wie zuvor angegeben, wird der natürliche zelluläre Rezeptor
vorteilhafterweise ausgewählt
aus der Gruppe bestehend aus den Haupthistokompatibilitätsantigenen
der Klasse I, Fibronectin und dem zellulären Rezeptor des Coxsackievirus
(CAR) oder einer jeglichen anderen Determinante der Zelloberfläche, welche
bei der Infektiosität
der Adenoviren üblicherweise
interveniert oder daran teilnimmt.
-
Gemäß einer
gleichfalls vorteilhaften Ausführungsweise
umfasst die erfindungsgemäße Faser
außerdem
einen Liganden. Im Sinne der Erfindung definiert der Begriff „Ligand" eine jegliche Entität, welche
in der Lage ist, vorzugsweise mit einer hohen Affinität, ein Zelloberflächenmolekül, welches
sich von dem natürlichen zellulären Rezeptor
unterscheidet, zu erkennen und zu binden. Dieses Molekül kann exprimiert
oder auf der Oberfläche
der Zelle, die man zielgerichtet anzusteuern wünscht, exprimiert werden (Zelloberflächenmarker, Rezeptor,
antigenes Peptid, welches durch die Histokompatibilitätsantigene
präsentiert
wird ...). Gemäß den durch
die Erfindung verfolgten Zielen kann ein Ligand ein Antikörper, ein
Peptid, ein Hormon, ein Polypeptid oder ferner ein Zucker sein.
Der Begriff Antikörper
umfasst insbesondere die monoklonalen Antikörper, die Antikörper-Fragmente
(Fab) und die einzelkettigen Antikörper (scFv). Diese Bezeichnungen
und Abkürzungen sind
auf dem Gebiet der Immunologie konventionell.
-
Im
Rahmen der Erfindung kann es interessant sein, insbesondere eine
Tumorzelle, eine infizierte Zelle, einen bestimmten Zelltyp oder
eine Kategorie von Zellen, welche einen spezifischen Oberflächenmarker tragen,
zielgerichtet anzusteuern. Wenn beispielsweise die zielgerichtet
anzusteuernde Wirtszelle eine durch das HIV-Virus (Human-Immunodeficiency-Virus)
infizierte Zelle ist, kann der Ligand ein Antikörperfragment gegen Fusin, den
CD4-Rezeptor oder gegen ein exponiertes virales Protein (Hüllglykoprotein)
oder ferner den Teil des TAT-Proteins des HIV-Virus, welcher sich
von den Resten 37 bis 72 erstreckt, sein (Fawell et al., 1994, Proc.
Natl. Acad. Sci. USA 91, 664–668).
Handelt es sich um eine Tumorzelle, wird die Wahl auf einen Liganden
fallen, welcher ein für
den Tumor spezifisches Antigen (beispielsweise das Protein MUC-1
im Falle des Brustkrebses, bestimmte Epitopen der Proteine E6 oder
E7 des Papillomavirus HPV) oder ein Antigen, welches überexprimiert
wird (der IL2-Rezeptor, der bei bestimmten lymphoiden Tumoren überexprimiert
wird, das Peptid GRP für „Gastrin
Releasing Peptide",
welches in Lungenkarzinomzellen (Michael et al., 1995, Gene Therapy
2, 660–668)
und in Tumoren des Pankreas, der Prostata und des Magens überexprimiert
wird), erkennt. Wenn gewünscht
wird, die T-Lymphozyten zielgerichtet anzusteuern, kann man einen
Liganden des T-Zellrezeptors einsetzen. Außerdem ist Transferrin ein
guter Kandidat für
das zielgerichtete Ansteuern der Leber. Allgemein sind die Liganden,
die im Kontext der Erfindung verwendet werden können, in der Literatur umfänglich beschrieben
und können
durch Standardtechniken kloniert werden. Es ist gleichfalls möglich, diese auf
chemischem Wege zu synthetisieren und diese an die Faser gemäß der Erfindung
zu koppeln. In dieser Hinsicht müsste
das Ankoppeln von Galactosylresten eine Spezifität für die Leber verleihen aufgrund
der Wechselwirkung mit den Rezeptoren für die Asialoglycoproteine.
Die bevorzugte Ausführungsweise
besteht aber darin, den Liganden am C-terminalen Ende der Faser gemäß der Erfindung
oder unter Ersetzung von deletierten Resten, wenn wenigstens eine
der Modifikationen eine Deletion von wenigstens 3 aufeinanderfolgenden
Resten ist, zu inserieren.
-
Die
Erfindung bezieht sich gleichfalls auf ein DNA-Fragment, welches
eine erfindungsgemäße Faser kodiert,
wie auch auf einen Expressionsvektor eines solchen Fragments. Zu
diesem Zweck kann ein jeglicher Vektortyp eingesetzt werden, sei
er von Plasmid- oder viraler Herkunft, integrativ oder nicht. Solche
Vektoren sind kommerziell erhältlich
oder in der Literatur beschrieben. Ebenso ist der Fachmann in der
Lage, die für
die Expression des DNA-Fragments gemäß der Erfindung erforderlichen
Regulationselemente anzupassen. Außerdem kann er mit einer oder
mehreren Substanzen, welche in der Lage sind, die Transfektionseffizienz und/oder
die Stabilität
des Vektors zu verbessern, kombiniert werden. Diese Substanzen sind
in der Literatur, die für
den Fachmann auf diesem Gebiet zugänglich ist, umfassend dokumentiert
(siehe beispielsweise Felgner et al., 1989, Proc. West. Pharmacol.
Soc. 32, 115–121;
Hodgson und Solaiman, 1996, Nature Biotechnology 14, 339–342; Remy
et al., 1994, Bioconjugate chemistry 5, 647–654). Zur Unterrichtung und
nicht zur Einschränkung
kann es sich um Polymere, um insbesondere kationische Lipide, um
Liposome, um nukleäre
Proteine und um neutrale Lipide handeln. Eine Kombination, die in
Betracht gezogen werden kann, ist ein Vektor, welcher mit kationischen
Lipiden (DC-Chol,
DOGS.. u.s.w.) und neutralen Lipiden (DOPE) assoziiert ist.
-
Die
Erfindung betrifft gleichfalls ein Adenovirus, welchem eine funktionsfähige native
Faser fehlt und welches auf seiner Oberfläche eine erfindungsgemäße Faser
umfasst. Diese kann durch das adenovirale Genom exprimiert werden
oder in trans durch eine Komplementationszelllinie, wie sie nachfolgend
definiert wird, bereitgestellt werden. Es kann au ßerdem einen
Liganden, wie oben definiert, umfassen. Bevorzugt ist die Bindungsspezifität eines
solchen Adenovirus an seinen natürlichen
zellulären
Rezeptor aufgrund der modifizierten Faser, die es trägt, signifikant
verringert oder noch besser vernichtet. Der Verlust der natürlichen
Spezifität kann
durch Zellanheftungsuntersuchungen, die in Gegenwart von markierten
Viren (beispielsweise mit 3H-Thymidin gemäß der Technik
von Roelvink et al., 1996, J. Virol. 70, 7614–7621) ausgeführt werden,
oder durch Untersuchungen der Infektiosität von permissiven Zellen oder
solchen, welche das durch den Liganden zielgerichtet angesteuerte
Oberflächenmolekül exprimieren,
ausgewertet werden (siehe die folgenden Beispiele).
-
Der
Ligand kann chemisch mit dem erfindungsgemäßen Adenovirus gekoppelt werden.
Es wird jedoch die Variante bevorzugt, gemäß welcher die Sequenzen, welche
den Liganden kodieren, in das adenovirale Genom, insbesondere in
Sequenzen, welche die modifizierte Faser gemäß der Erfindung kodieren, vorzugsweise in
Phase, um das Leseraster zu bewahren, inseriert sind. Die Insertion
kann an einem beliebigen Ort erfolgen. Gleichwohl befindet sich
die bevorzugte Insertionsstelle strangaufwärts von dem Stop-Codon am C-terminalen Ende
oder an der Stelle von deletierten Resten. Es kann gleichfalls in
Betracht gezogen werden, die Sequenzen des Liganden in andere adenovirale
Sequenzen, insbesondere jene, welche ein anderes Capsid-Protein, wie
das Hexon oder das Penton, kodieren, zu inserieren.
-
Ein
erfindungsgemäßes Adenovirus
ist vorteilhafterweise rekombinant und replikationsdefekt, d.h.
zu einer autonomen Replikation in einer Wirtszelle nicht in der
Lage. Die Defizienz wird durch Mutation oder Deletion von einem
oder mehreren essentiellen viralen Genen und insbesondere der Gesamtheit
oder eines Teils der E1-Region erzielt. Deletionen innerhalb der
Region E3 können
ins Auge gefasst werden, um das Klonierungsvermögen zu erhöhen. Indessen kann es vorteilhaft
sein, die das Protein gp19k kodierenden Sequenzen zu bewahren (Gooding
und Wood, 1990, Critical Reviews of Immunology 10, 53–71), um
die Immunantworten des Wirts zu modulieren. Selbstverständlich kann
das Genom eines erfindungsgemäßen Adenovirus
gleichfalls ergänzende
Deletionen oder Mutationen, welche andere Regionen, insbesondere
die Regionen E2, E4 und/oder L1–L5
betreffen, umfassen (siehe beispielsweise die Interna tionale Anmeldung
WO 94/28152 und Ensinger et al., 1972, J. Virol. 10, 328–339, welche
die wärmeempfindliche
Mutation des Gens DBP von E2 beschreibt).
-
Gemäß einer
bevorzugten Ausführungsweise
ist ein erfindungsgemäßes Adenovirus
rekombinant und umfasst ein oder mehrere Gen(e) von Interesse, welches
oder welche unter die Kontrolle der für dessen (deren) Expression
in einer Wirtszelle erforderlichen Elemente gestellt ist bzw. sind.
Das fragliche Gen kann von irgendeiner Herkunft sein, genomisch,
cDNA (komplementäre
DNA) oder hybrid (Minigen, welchem ein oder mehrere Introns fehlen).
Es kann erhalten werden durch die herkömmlichen Techniken der Molekularbiologie oder
durch chemische Synthese. Es kann eine Antisinn-RNA, ein Ribozym
oder eine mRNR, die in der Folge in ein Polypeptid von Interesse
translatiert werden wird, kodieren. Jenes kann zytoplasmatisch,
membranständig
sein oder aus der Wirtszelle sekretiert werden. Außerdem kann
es sich um die Gesamtheit oder einen Teil eines Polypeptids, wie
es in der Natur gefunden wird, ein chimäres Polypeptid, welches aus
der Fusion von Sequenzen unterschiedlicher Herkunft hervorgegangen
ist, oder um ein bezogen auf die native Sequenz mutiertes Polypeptid,
welches verbesserte und/oder modifizierte biologische Eigenschaften
aufweist, handeln.
-
Im
Rahmen der Erfindung kann es vorteilhaft sein, die Gene zu verwenden,
die die folgenden Polypeptide kodieren:
- – Zytokine
oder Lymphokine (Interferone α, β und γ, Interleukine
und insbesondere IL-2, IL-6, IL-10 oder IL-12, Tumornekrosefaktoren
(TNF), Kolonie-stimulierende Faktoren (GM-CSF, C-CSF, M-CSF ...);
- – zelluläre oder
nukleäre
Rezeptoren, insbesondere jene, die durch pathogene Organismen (Viren,
Bakterien oder Parasiten) und bevorzugt durch das HIV-Virus oder
deren Liganden (fas-Ligand) erkannt werden;
- – Proteine,
welche an einer genetisch bedingten Erkrankung beteiligt sind (Faktor
VII, Faktor VIII, Faktor IX, Dystrophin oder Minidystrophin, Insulin,
das Protein CFTR (Cystic Fibrosis Transmembrane Conductance Regulator),
Wachstumshormone (hGH);
- – Enzyme
(Urease, Renin, Thrombin ...);
- – Inhibitoren
von Enzymen (α1-Antitrypsin,
Antithrombin III, Inhibitoren von viralen Proteasen);
- – Polypeptide
mit Antitumor-Wirkung, welche in der Lage sind, die Initiation oder
das Fortschreiten von Tumoren oder Krebserkrankungen wenigstens
teilweise zu hemmen (Antikörper,
Inhibitoren, welche auf der Ebene der Zellteilung oder von Translations-
bzw. Transduktionssignalen wirken, Expressionsprodukte von Tumorsuppressorgenen,
beispielsweise p53 oder Rb, Proteine, welche das Immunsystem stimulieren
...);
- – Proteine
des Haupthistokompatibilitätskomplexes
der Klassen I oder II oder regulatorische Proteine, welche auf die
Expression der entsprechenden Gene einwirken;
- – Polypeptide,
welche in der Lage sind, eine virale, bakterielle oder durch Parasiten
bewirkte Infektion oder ihre Entwicklung zu hemmen (antigene Polypeptide
mit immunogenen Eigenschaften, antigene Epitope, Antikörper, transdominante
Varianten, welche in der Lage sind, die Wirkung eines nativen Proteins
durch Kompetition zu hemmen ...);
- – Toxine
(Thymidinkinase des Herpes simplex-Virus 1 (TK-HSV-1), Ricin, Choleratoxin,
Diphtherie-Toxin ...) oder Immuntoxine,
- – Marker
(β-Galactosidase,
Luciferase ...),
- – ein
Polypeptid, welches eine Wirkung auf die Apoptose ausübt (Induktor
von Apoptose: Bax ..., Inhibitor von Apoptose: Bcl2, Bclx), zytostatische
Mittel (p21, p16, Rb ...), die Apolipoproteine (apoE ...), SOD,
Katalase, Stickoxid-Synthase (NOS); und
- – Wachstumsfaktoren
(FGF für „Fibroblast
Growth Factor",
VEGF für „Vascular
Endothelial cell growth Factor" ...).
-
Es
ist darauf hinzuweisen, dass diese Liste nicht einschränkend ist
und dass andere Gene gleichfalls eingesetzt werden können.
-
Außerdem kann
ein erfindungsgemäßes Adenovirus
außerdem
ein der Selektion dienendes Gen, welches erlaubt, die infizierten
Zellen zu selektionieren oder zu identifizieren, umfassen. Man kann
die Gene neo (welches die Neomycinphosphotransferase kodiert), welches
eine Resistenz gegen das Antibiotikum G418 verleiht, dhfr (Dihydrofolatreduktase),
CAT (Chloramphenicolacetyltransferase), pac (Puromycinacetyltransferase)
oder ferner gpt (Xanthin-Guanin-Phosphoribosyltransferase) aufführen. Allgemein
sind die der Selektion dienenden Gene dem Fachmann auf diesem Gebiet
bekannt.
-
Unter
Elemente, welche für
die Expression eines Gens von Interesse in einer Wirtszelle erforderlich sind,
versteht man die Gesamtheit der Elemente, welche dessen Transkription
in RNA und die Translation einer mRNA in ein Protein erlauben. Unter
jenen kommt dem Promotor eine besondere Bedeutung zu. Im Rahmen
der Erfindung kann er sich von einem beliebigen Gen eukaryotischer
oder sogar viraler Herkunft ableiten und kann konstitutiv oder regulierbar
sein. Außerdem
kann er derart modifiziert sein, dass seine Promotoraktivität verbessert
ist, eine die Transkription inhibierende Region supprimiert ist,
ein konstitutiver Promotor regulierbar gemacht worden ist oder umgekehrt,
eine Restriktionsstelle eingeführt
worden ist ... Alternativ kann es sich um den natürlichen
Promotor des zu exprimierenden Gens handeln. Man kann als Beispiele
die viralen Promotoren des CMV (Zytomegalievirus), RSV (Rous-Sarkom-Virus),
des TK-Gens des HSV-1-Virus, den frühen Promotor des SV40-Virus
(Simian Virus 40), den adenoviralen MLP-Promotor oder ferner die
eukaryotischen Promotoren der Gene PGK (Phosphoglyceratkinase) aus
der Maus oder dem Menschen, MT (Metallothionein), α1-Antitrypsin und Albumin
(Leber-spezifisch), von Immunoglobulinen (Lymphozyten-spezifisch) aufführen. Man
kann gleichfalls einen tumorspezifischen Promotor einsetzen (α-Fetoprotein
AFP, Ido et al., 1995, Cancer Res. 55, 3105–3109; MUC-1; PSA für Prostata-spezifisches
Antigen, Lee et al., 1996, J. Biol. Chem. 271, 4561–4568; und
flt1, spezifisch für
Endothelzellen, Morishita et al., 1995, J. Biol. Chem. 270, 27948–27953).
-
Selbstverständlich kann
ein Gen von Interesse bei einer Verwendung im Rahmen der Erfindung
außerdem
zusätzliche
Elemente, welche für
die Expression (Intronsequenz, Signalsequenz, Kernlokalisierungssequenz,
Transkriptionsterminationssequenz, Translationsstartstelle vom Typ
IRES oder andere ...) oder ferner dessen Aufrechterhaltung in der
Wirtszelle erforderlich sind, umfassen. Solche Elemente sind den
Fachleuten auf diesem Gebiet bekannt.
-
Die
Erfindung betrifft gleichfalls ein Verfahren zur Produktion eines
Adenovirus gemäß der Erfindung, gemäß welchem:
- – man
eine geeignete Zelllinie mit dem Genom des Adenovirus transfiziert,
- – man
die transfizierte Zelllinie unter Bedingungen, die geeignet sind,
um die Produktion des Adenovirus zu ermöglichen, kultiviert und
- – man
das Adenovirus aus der Kultur der transfizierten Zelllinie gewinnt
und man gegebenenfalls das Adenovirus im Wesentlichen reinigt.
-
Die
Wahl der Zelllinie hängt
von den defekten oder fehlenden Funktionen des erfindungsgemäßen Adenovirus
ab und man wird eine Komplementationslinie verwenden, welche in
der Lage ist, in trans die defekte(n) Funktion oder Funktionen bereitzustellen.
Die Linie 293 ist geeignet, um die Funktion E1 zu komplementieren
(Graham et al., 1977, J. Gen. Virol. 36, 59–72). Bei einer doppelten E1-
und E2- oder E4-Defizienz kann man eine Linie von jenen, die in
der französischen
Patentanmeldung 96 04413 beschrieben worden sind, einsetzen. Man
kann gleichfalls ein Hilfsvirus, um das defekte Adenovirus gemäß der Erfindung
in einer beliebigen Wirtszelle zu komplementieren, oder ferner ein
gemischtes System, welches Komplementationszellen und Hilfsviren,
in welchem die Elemente voneinander abhängig sind, einsetzen. Die Mittel
zur Vermehrung eines defekten Adenovirus sind dem Fachmann auf diesem
Gebiet bekannt, der sich beispielsweise auf Graham und Prevec (1991,
Methods in Molecular Biology, Band 7, S. 190–128; Hrsg. E. J. Murey, The
Human Press Inc.) beziehen kann. Das adenovirale Genom wird vorzugsweise
in vitro in Escherichia coli (E. coli) durch Ligation oder ferner
homologe Rekombination rekonstituiert (siehe beispielsweise die
französische
Anmeldung 94 14470). Die Reinigungsverfahren werden im Stand der
Technik beschrieben. Man kann die Zentrifugationstechnik auf einem
Dichtegradienten aufführen.
-
Die
Erfindung betrifft gleichfalls eine Zelllinie, welche entweder in
in das Genom integrierter Form oder in Form eines Episoms ein eine
erfindungsgemäße Faser
kodierendes DNA-Fragment, welches unter die Kontrolle der Elemente,
die dessen Expression erlauben, gestellt ist, umfasst. Die Linie
kann außerdem
in der Lage sein, ein Adenovirus zu komplementieren, welches hinsichtlich
einer oder mehrerer Funktionen, ausgewählt aus jenen, die durch die
Regionen E1, E2, E4 und L1–L5
kodiert werden, defizient ist. Sie leitet sich bevorzugt von der
Linie 293 ab. Eine solche Linie kann nützlich sein für die Herstellung
eines Adenovirus, in dessen Genom die Gesamtheit oder ein Teil der
Sequenzen, welche die Faser kodieren, fehlt (derart, dass eine nicht
funkti onsfähige
Faser produziert wird). Die Erfindung hat gleichfalls das entsprechende
Verfahren zum Gegenstand, gemäß welchem:
- – man
eine Zelllinie gemäß der Erfindung
mit dem Genom des Adenovirus transfiziert,
- – man
die transfizierte Zelllinie unter Bedingungen, die geeignet sind,
um die Produktion des Adenovirus zu ermöglichen, kultiviert und
- – man
das Adenovirus in der Kultur der transfizierten Zelllinie gewinnt
und man gegebenenfalls das Adenovirus im Wesentlichen reinigt.
-
Die
Erfindung umfasst gleichfalls eine Wirtszelle, welche durch ein
erfindungsgemäßes Adenovirus oder
eines, welches durch ein erfindungsgemäßes Verfahren erhalten werden
kann, infiziert ist. Es handelt sich vorteilhafterweise um eine
Säugetierzelle
und insbesondere um eine humane Zelle. Sie kann eine primäre Zelle
oder eine Tumorzellen und von beliebiger Herkunft sein, beispielsweise
hämopoetisch
(totipotente Stammzelle, Leukozyt, Lymphozyt, Monozyt oder Makrophage),
muskulär
(Satellitenzelle, Myozyt, Myoblast, glatte Muskelzelle), kardial,
nasal, pulmonal, tracheal, hepatisch, epithelial oder ein Fibroblast.
-
Die
Erfindung hat gleichfalls eine pharmazeutische Zusammensetzung zum
Gegenstand, welche als therapeutisches oder prophylaktisches Mittel
eine Wirtszelle oder ein Adenovirus gemäß der Erfindung oder ein Adenovirus,
welches durch ein erfindungsgemäßes Verfahren
erhalten werden kann, in Kombination mit einem aus pharmazeutischer
Sicht annehmbaren Träger
umfasst. Die erfindungsgemäße Zusammensetzung ist
insbesondere für
die präventive
oder kurative Behandlung von Erkrankungen, wie genetisch bedingten
Erkrankungen (Hämophilie,
Mukoviszidose, Diabetes oder Duchenne-Muskeldystrophie, Becker-Muskeldystrophie
...), Krebserkrankungen wie jenen, die durch Onkogene oder Viren
induziert werden, viralen Erkrankungen, wie Hepatitis B oder C und
AIDS (erworbenes Immundefektsyndrom, welches aus der Infektion durch
HIV resultiert), rezidivierenden viralen Erkrankungen, wie den durch
das Herpes-Virus hervorgerufenen Virusinfektionen, und Herz-Kreislauf-Erkrankungen,
darunter die Restenosen, bestimmt.
-
Eine
pharmazeutische Zusammensetzung gemäß der Erfindung kann auf herkömmliche
Weise hergestellt werden. Insbesondere kombiniert man eine therapeutisch
wirksame Menge des therapeutischen oder prophylaktischen Mittels
mit einem Träger,
wie einem Verdünnungsmittel.
Eine erfindungsgemäße Zusammensetzung
kann auf lokalem Wege, systemischem Wege oder durch ein Aerosol,
insbesondere auf intragastrischem, subkutanem, intrakardialem, intramuskulärem, intravenösem, intraperitonealem,
intratumoralem, intrapulmonalem, intranasalem oder intratrachealem
Wege verabreicht werden. Die Verabreichung kann in einer einzelnen
Dosis oder in einmalig oder mehrmals nach einem bestimmten Zeitintervall
wiederholten Dosen stattfinden. Der geeignete Verabreichungsweg
und die geeignete Dosierung variieren abhängig von verschiedenen Parametern,
beispielsweise von dem zu behandelnden Individuum oder der zu behandelnden
Erkrankung oder ferner dem oder den Gen(en), das bzw. die zu transferieren
ist bzw. sind. Die erfindungsgemäßen Viruspartikel
können
insbesondere in Form von Dosen zwischen 104 und
1014 pfu (Plaque-bildende Einheiten), vorteilhafterweise
105 und 1013 pfu
und vorzugsweise 106 und 1012 pfu
eingeschlossen formuliert werden. Die Formulierung kann gleichfalls
ein Verdünnungsmittel,
ein Adjuvans oder einen Hilfsstoff, ein Vehikel, welche aus pharmazeutischer
Sicht annehmbar sind, ebenso wie ein Stabilisierungs-, Konservierungs-
und/oder Solubilisierungsmittel umfassen. Eine Formulierung in Kochsalzlösung, nicht-wässriger
oder isotonischer Lösung sind
für eine
Verabreichung über
eine Injektion besonders geeignet. Sie kann in flüssiger oder
trockener (beispielsweise Lyophilisat ...) oder einer jeglichen
anderen galenischen Form, welche auf dem Gebiet der Pharmazie üblicherweise
eingesetzt wird, vorgelegt werden.
-
Schließlich bezieht
sich die Erfindung auf die therapeutische oder prophylaktische Verwendung
eines Adenovirus oder einer Wirtszelle gemäß der Erfindung oder eines
Adenovirus, welches durch ein erfindungsgemäßes Verfahren erhalten werden
kann, für
die Herstellung eines Arzneimittels, welches für die Behandlung des menschlichen
oder tierischen Körpers
durch Gentherapie bestimmt ist. Gemäß einer ersten Möglichkeit kann
das Arzneimittel direkt in vivo verabreicht werden (beispielsweise
durch intravenöse
Injektion in einen zugänglichen
Tumor, in die Lungen durch ein Aerosol ...). Man kann gleichfalls
den ex vivo-Ansatz
heranziehen, der darin besteht, dem Patienten Zellen zu entnehmen
(Stammzellen des Knochenmarks, Lymphozyten des peripheren Bluts,
Muskelzellen ...), diese in vitro gemäß den Techniken dieses Fachgebiets zu
transfizieren oder zu infizieren und diese dem Patienten erneut
zu verabreichen.
-
Die
Erfindung erstreckt sich gleichfalls auf ein Behandlungsverfahren,
gemäß welchem
man eine therapeutisch wirksame Menge eines Adenovirus oder einer
Wirtszelle gemäß der Erfindung
einem Patienten, der einer solchen Behandlung bedarf, verabreicht.
-
BEISPIELE
-
Die
folgenden Beispiele veranschaulichen lediglich eine Ausführungsweise
der Erfindung.
-
Die
nachfolgend beschriebenen Konstruktionen erfolgen gemäß den allgemeinen
Techniken der Gentechnologie und der molekularen Klonierung, die
detailliert in Maniatis et al. (1989, Laboratory Manual, Cold Spring
Harbor, Laboratory Press, Cold Spring Harbor, NY) erläutert werden,
oder gemäß den Empfehlungen des
Herstellers, wenn man einen kommerziellen Kit verwendet. Die Klonierungsschritte,
welche bakterielle Plasmide einsetzen, erfolgen vorzugsweise in
dem Stamm E. coli 5K (Hubacek und Glover, 1970, J. Mol. Biol. 50,
111–127)
oder BJ 5183 (Hanahan, 1983, J. Mol. Biol. 166, 557–580). Man
setzt diesen letztgenannten Stamm bevorzugt für die Schritte einer homologen
Rekombination ein. Der Stamm NM522 (Stratagene) empfiehlt sich für die Vermehrung
der M13-Phagenvektoren. Die Amplifizierungstechniken durch PCR sind
den Fachleuten auf diesem Gebiet bekannt (siehe beispielsweise PCR
Protocols – A
guide to methods and applications, 1990, herausgegeben von Innis,
Gelfand, Sninsky und White, Academic Press Inc.). Handelt es sich um
die Reparatur von Restriktionsstellen, besteht die eingesetzte Technik
in einem Auffüllen
der überhängenden
5'-Enden mit Hilfe
des großen
Fragments der DNA-Polymerase I von E. coli (Klenow). Die Ad5-Nukleotidsequenzen
sind jene, die in der Datenbank Genebank unter der Referenz M73260
verwendet werden.
-
Was
die Zellbiologie angeht, werden die Zellen gemäß den Standardtechniken, die
den Fachleuten auf diesem Gebiet wohlbekannt sind, transfiziert.
Man kann die Calciumphosphat-Technik (Maniatis et al., a.a.O.) aufführen, es
kann aber ein jegliches anderes Protokoll gleichfalls eingesetzt
werden, wie die DEAE-Dextran-Technik, die Elektroporation, die auf
osmotischen Schocks basierenden Techniken, die Mikroinjektion oder die
auf dem Einsatz von kationischen Lipiden basierenden Methoden. Was
die Kulturbedingungen angeht, sind diese klassisch. In den folgenden
Beispielen wird auf die humane Linie 293 (ATCC CRL 1573) und auf
die Mäuse-Linien
Swiss 3T3 (ATCC CCL92), NR6 (Wells et al., 1990, Science 247: 962–964), NR6-hEGFR
(Schneider et al., 1986, Proc. Natl. Acad. Sci. USA 83, 333–336), Daudi
HLA– (ATCC
CCL213) und Daudi HLA+ (Quillet et al., 1988, J. Immunol. 141, 17–20) zurückgegriffen.
Es wird angegeben, dass die Daudi-Linie ausgehend von einem Burkitt-Lymphom etabliert
worden ist und von Natur aus bezüglich
der Expression von β-2-Mikroglobulin
defizient ist und aus diesem Grunde auf ihrer Oberfläche keine
HLA-Moleküle
der Klasse I aufweist (Daudi HLA–). Die Zelllinie E8.1, welche
von den Daudi abgeleitet ist, wurde durch Transfektion mit einem
Gen, welches R-2-Mikroglobulin kodiert, erzeugt, um die Expression
von HLA-Molekülen
der Klasse I auf deren Oberfläche
wiederherzustellen (Daudi-HLA+; Quillet et al., 1988, J. Immunol.
141, 17–20:
Es versteht sich, dass andere Zelllinien gleichfalls eingesetzt
werden können.
-
BEISPIEL 1: Konstruktion
eines Adenovirus, welches einen Wirtstropismus gegenüber Zellen,
welche den Rezeptor des GRP (für „Gastrin
Releasing Peptide" im
Englischen) exprimieren, aufweist
-
A. Insertion der den GRP-Liganden
kodierenden Sequenzen (Faser-GRP)
-
Das
Plasmid pTG6593. leitet sich von p poly II (Lathe et al., 1987,
Gene 57, 193–201)
durch Einführung
des vollständigen
Gens, welches die Ad5-Faser kodiert, in Form eines EcoRI-SmaI-Fragments
(Nukleotide (nt) 30049 bis 33093) ab. Das HindIII-SmaI-Fragment
(nt 31994–33093)
wird isoliert und in M13TG130 (Kieny et al., 1983, Gene 26, 91–99), welches
durch die gleichen Enzyme verdaut worden ist, kloniert, wodurch M13TG6526
erhalten wird. Dieses Letztere wird einer zielgerichteten Mutagenese
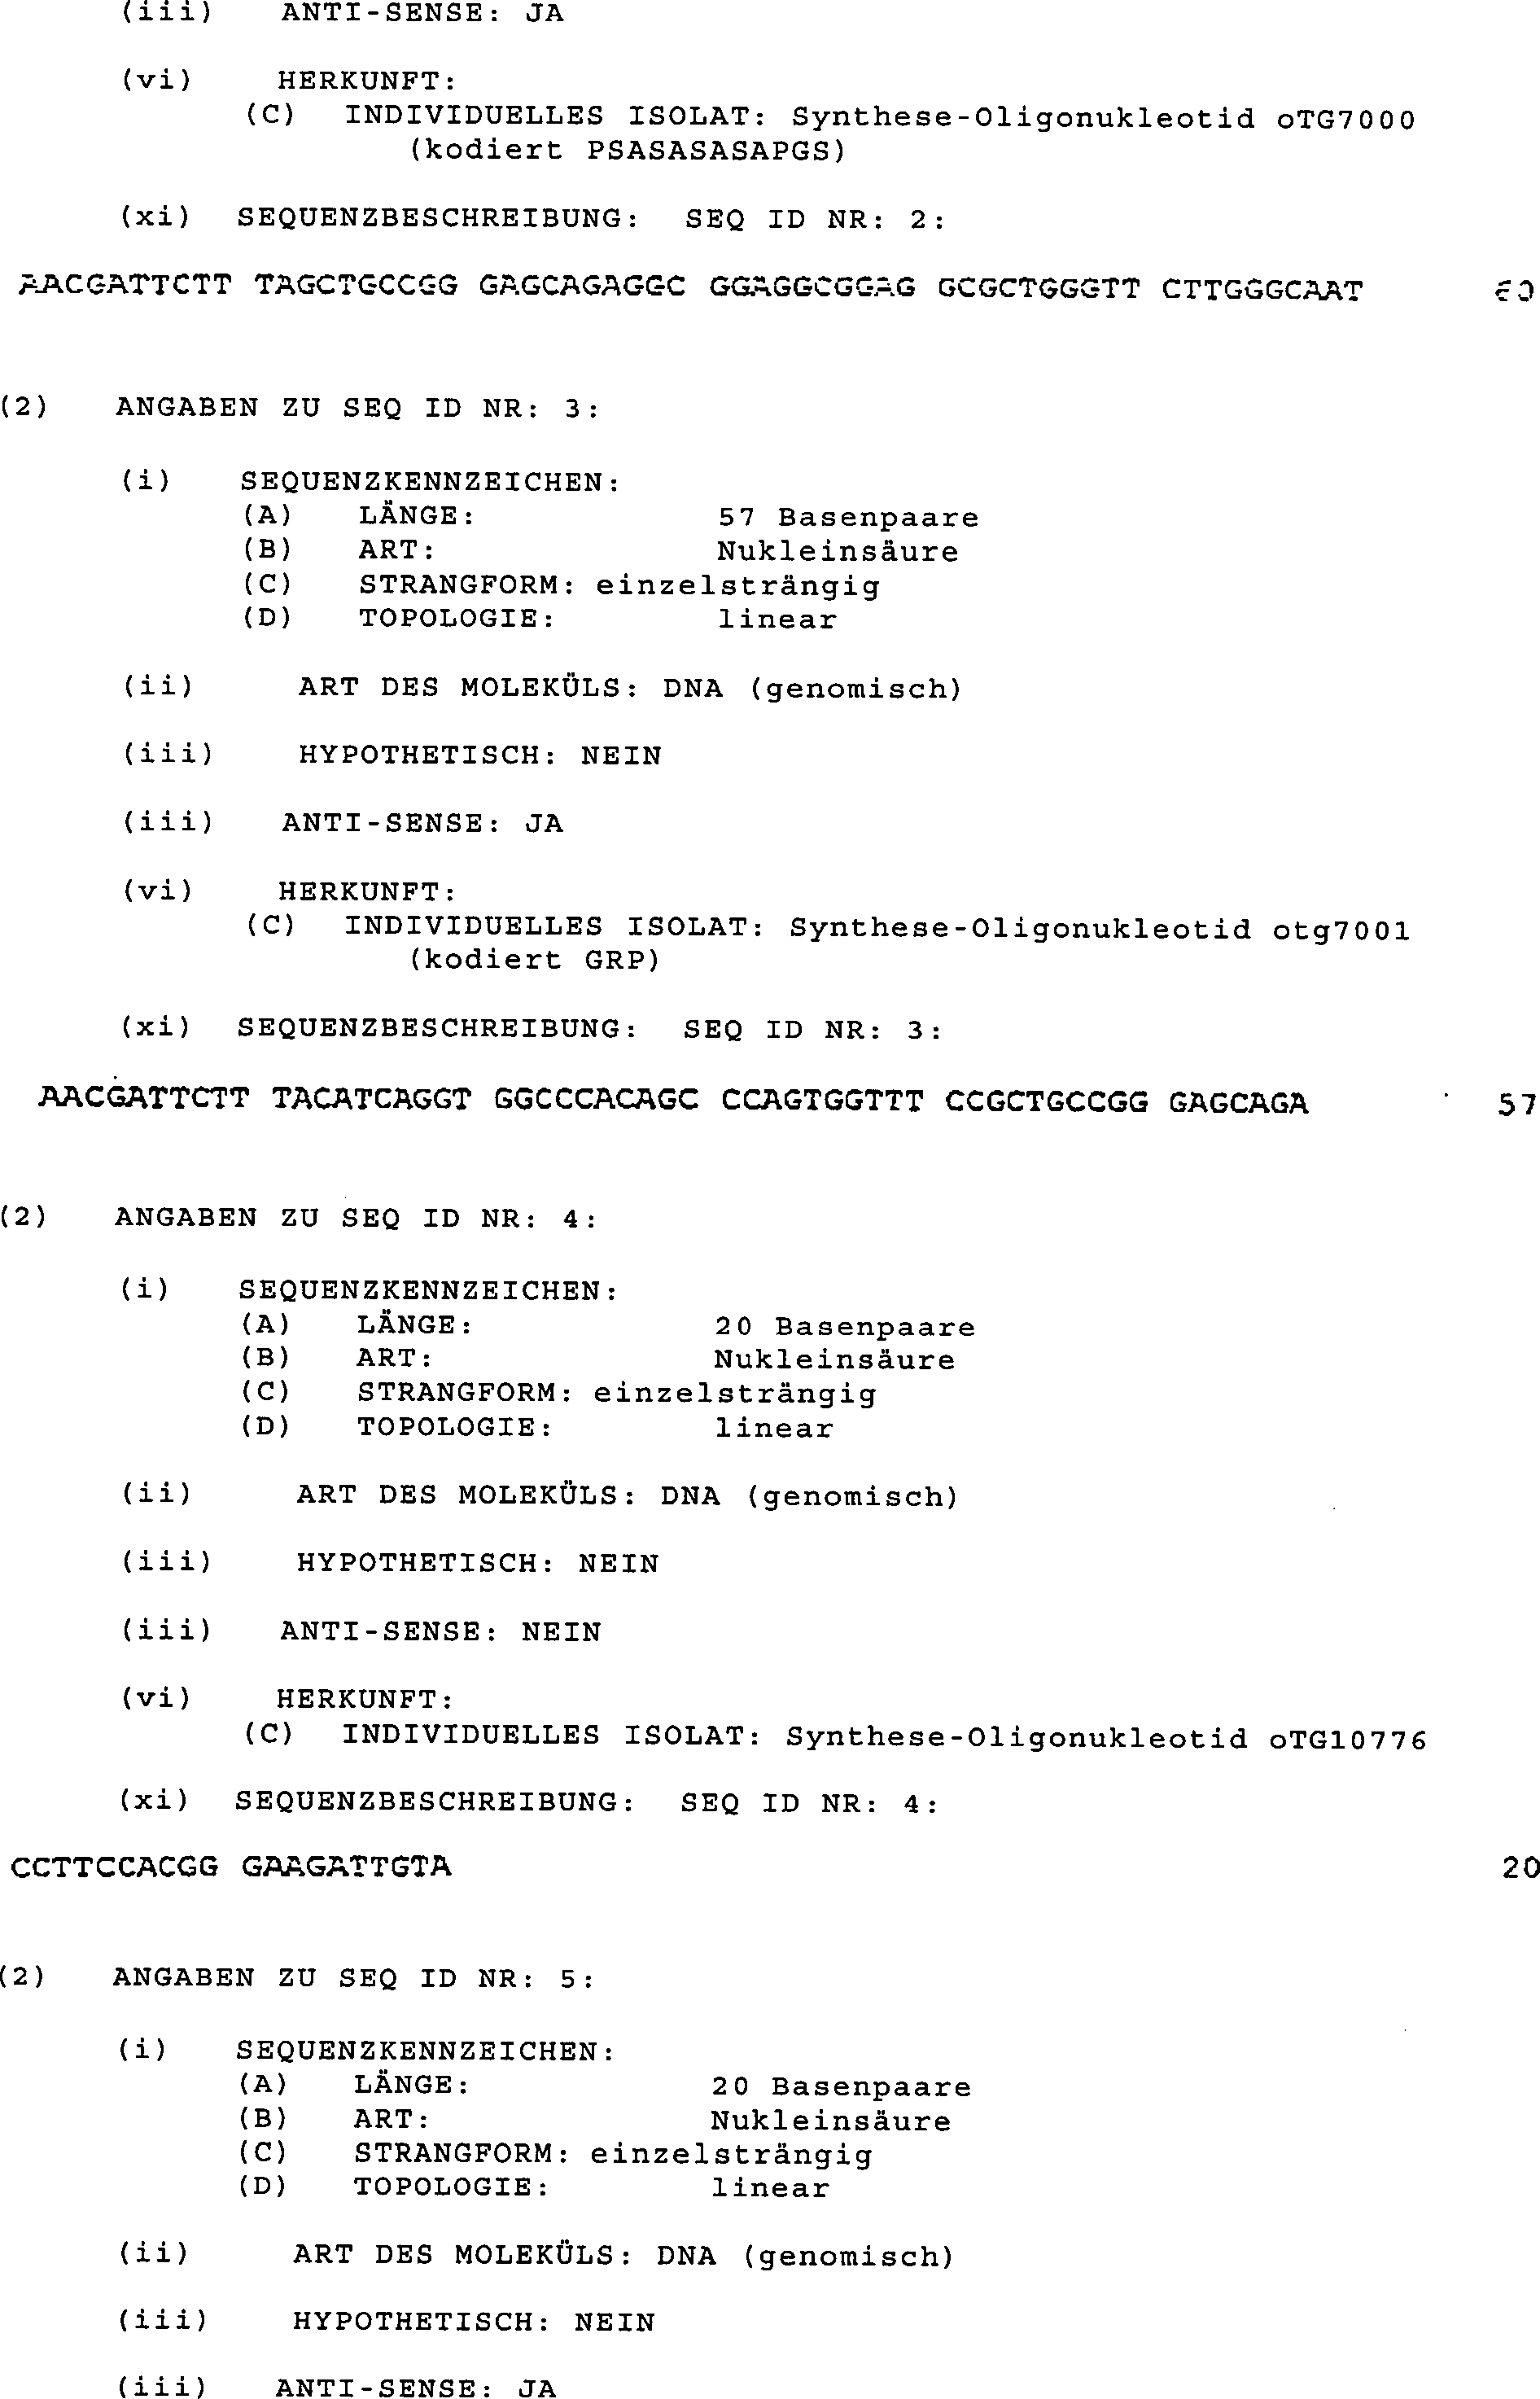
mit Hilfe des Oligonukleotids oTG7000 (SEQ ID NR: 2) unterworfen
(Kit Sculptor, in vitro mutagenesis, Amersham), um einen einen Spacer-Arm
von 12 Aminosäuren
mit der Sequenz PSASASASAPGS kodierenden Adaptor einzuführen. Der so
erhaltene mutierte Vektor, M13TG6527, wird einer zweiten Mutagenese
unterworfen, welche erlaubt, die die 10 Reste des GRP-Peptids (GNHWAVGHLM;
Michael et al., 1995, Gene Ther. 2, 660–668) kodierende Sequenz einzuführen. Man
setzt zu diesem Zweck das Oligonukleotid oTG7001 (SEQ ID NR: 3)
ein. Das HindIII-SmaI-Fragment wird aus dem mutierten Phagen M13TG6528
isoliert und durch die Technik der homologen Rekombination (Chartier
et al., 1996, J. Virol. 70, 4805–4810) eingeführt in das
Plasmid pTG6590, welches das sich von den nt 27081 bis 35935 erstreckende
und durch MunI (nt 32825) linearisierte Fragment des adenoviralen
Ad5-Genoms trägt.
Das SpeI-ScaI-Fragment (welches die nt 27082 bis 35935 des Ad5-Genoms, welche
durch Einführung
des Spacer-Arms und des GRP-Peptids modifiziert worden sind, enthält) wird
aus dem vorangegangenen, als pTG8599 bezeichneten Vektor isoliert,
wird dann gegen das äquivalente
Fragment von pTG6591, welches vorab durch die gleichen Enzyme verdaut
worden ist, ausgetauscht. Zur Unterrichtung umfasst pTG6591 die
adenoviralen Wildtyp-Sequenzen der Positionen 21562 bis 35935. Man
erhält
pTG4600, woraus man das BstEII-Fragment (nt 24843 bis 35233) isoliert.
Nach homologer Rekombination mit dem Plasmid pTG3602, welches das
Ad5-Genom umfasst (detaillierter in der internationalen Anmeldung
WO96/17070 beschrieben) erzeugt man den Vektor pTG4601.
-
Eine
Kassette, welche die Expression des LacZ-Gens erlaubt, wird an der
Stelle der adenoviralen E1-Region durch homologe Rekombination zwischen
dem durch ClaI linearisierten Plasmid pTG4601 und einem BsrGI-PstI-Fragment,
welches das β-Galactosidase
kodierende LacZ-Gen unter der Kontrolle des MLP-Promotors von Ad2
und des Polyadenylierungssignals des SV40-Virus umfasst, eingeführt. Dieses
Fragment wird aus dem Vektor pTG8526, welcher das 5'-Ende der genomischen
viralen DNA (nt 1 bis 6241), in welcher die E1-Region (nt 459 bis
3328) durch die LacZ-Expressionskassette ersetzt ist, enthält, isoliert.
Deren Konstruktion liegt im Vermögen
des Fachmanns auf diesem Gebiet. Der endgültige Vektor wird als pTG4628 bezeichnet.
-
Die
entsprechenden Viren AdTG4601 und AdTG4628 werden durch Transfektion
der Linie 293 mit den adenoviralen Fragmenten, die aus den Plasmidsequenzen
durch PacI-Verdau freigesetzt werden, erhalten. Zur Unterrichtung
enthält
AdTG4601 das vollständige
Ad5-Genom, in welchem das Gen der Faser an seinem 3'-Ende einen Spacer-Arm,
gefolgt von dem GRP-Peptid, umfasst. Das rekombinante Virus AdTG4628
enthält außerdem die
Expressionskassette des LacZ-Reportergens unter der Kontrolle des
adenoviralen MLP-Promotors.
-
B. Untersuchung des Tropismus
des die Faser-GRP enthaltenden Virus
-
Die
Anwesenheit des GRP-Peptids auf der Ebene der adenoviralen Faser
erlaubt es, zielgerichtet die Zellen, welche auf ihrer Oberfläche den
GRP-Rezeptor exprimieren, anzusteuern. Die Expression der mRNAs, welche
diesen Letzteren kodieren, wird in 293-Zellen und in Swiss-3T3-Mäusezellen (Zachary et al.,
1985, Proc. Natl. Acad. Sci. USA 82, 7616–7620) durch Northern-Blot
untersucht. Man setzt als Sonde eine Mischung von 2 zu der den GRP-Rezeptor
kodierenden Sequenz komplementären
DNA-Fragmenten, die durch die herkömmlichen Techniken mit dem 32P-Isotop markiert worden sind, ein. Zur
Unterrichtung werden die Fragmente durch Umkehr-PCR ausgehend von
den gesamten zellulären
RNAs mit Hilfe der Oligonukleotide oTG10776 (SEQ ID NR: 4) und oTG10781
(SEQ ID NR: 5) (Battey et al., 1991, Proc. Natl. Acad. Sci. USA
88, 395–399;
Corjay et al., 1991, J. Biol. Chem. 266, 18771–18779) produziert. Die Intensität der detektierten mRNAs
ist viel bedeutender in dem Falle der Swiss-3T3-Zellen als in den
293-Zellen, was die Überexpression des
GRP-Rezeptors durch die Mäuse-Linie
anzeigt.
-
An
den 2 Zelltypen werden Kompetitionsexperimente ausgeführt. Der
Kompetitor besteht in dem Kopf der in E. coli produzierten Ad5-Faser,
dessen Bindungseigenschaften an den zellulären adenoviralen Rezeptor gezeigt
wurden (Henry et al., 1994, J. Virol. 68, 5239–5246). Die in einer Monolayer
vorliegenden Zellen werden vorab 30 min in Gegenwart von PBS oder
von steigenden Konzentrationen von rekombinantem Ad5-Kopf (0,1 bis
100 μg/ml)
in DMEM-Medium (Gibco BRL), welches mit 2% fötalem Kälberserum (FCS) komplementiert
wird, inkubiert. Dann wird das Virus AdTG4628, dessen Faser das
GRP-Peptid enthält,
in einer Infektionsmultiplizität
von 0,001 infektiöse
Einheit/Zelle 24 h bei 37°C
zugesetzt. Man setzt als Kontrolle und unter den gleichen Versuchsbedingungen
das rekombinante Virus AdLacZ (Stratford-Perricaudet et al., 1992,
J. Clin. Invest. 90, 626–630),
welches ein Gen der nativen Faser trägt, ein. Die Zellen werden
dann fixiert und die Expression des LacZ-Gens ausgewertet (Sanes
et al., 1986, EMBO J. 5, 3133–3142).
Die Anzahl von blauen Zellen ist repräsentativ für die Effizienz der Virusinfektion.
Eine Inhibition durch Kompetition kommt zum Ausdruck durch eine
Ver ringerung der Anzahl von gefärbten
Zellen bezogen auf eine Vergleichsprobe ohne Kompetitor (PBS).
-
Die
Zugabe von rekombinantem Ad5-Kopf in einer Konzentration von 100 μg/ml inhibiert
die Infektion der 293-Zellen durch die Viren AdLacZ und AdTG4628
stark (Inhibitionsgrad 95 und 98%). Dies legt nahe, dass das Vorhandensein
des Kompetitors die Wechselwirkung der adenoviralen Faser mit ihrem
natürlichen zellulären Rezeptor
verhindert. Im Gegensatz dazu zeigen die beiden Viren ein unterschiedliches
Verhalten gegenüber
den Swiss-3T3-Zellen. Die Infektion durch das Virus AdTG4628 in
Gegenwart von 100 μg/ml
Kompetitor wird lediglich teilweise gehemmt, wohingegen unter den
gleichen Versuchsbedingungen jene durch das Virus AdLacZ, welches
die native Faser aufweist, vollständig gehemmt wird. Diese Ergebnisse
legen nahe, dass die Infektion der Swiss-3T3-Zellen durch AdTG4628 teilweise
durch einen unabhängigen
Rezeptor, wahrscheinlich den Rezeptor für das GRP, welches diese Zellen überexprimieren,
vermittelt wird. Als Schlussfolgerung begünstigt das Anfügen des
Liganden GRP an das C-terminale Ende der Faser die Infektion der
Zellen, welche den Rezeptor für
das GRP exprimieren, auf eine von der Wechselwirkung zwischen der
Faser und dem natürlichen
zellulären
Rezeptor unabhängige
Weise.
-
BEISPIEL 2: Konstruktion
eines Adenovirus, welches einen Wirtstropismus gegenüber Zellen,
welche den Rezeptor für
EGF („Epidermal
Growth Factor" im
Englischen) exprimieren, aufweist
-
Dieses
Beispiel beschreibt eine Faser, welche die EGF-Sequenzen an ihrem
C-terminalen Ende trägt. Dafür setzt
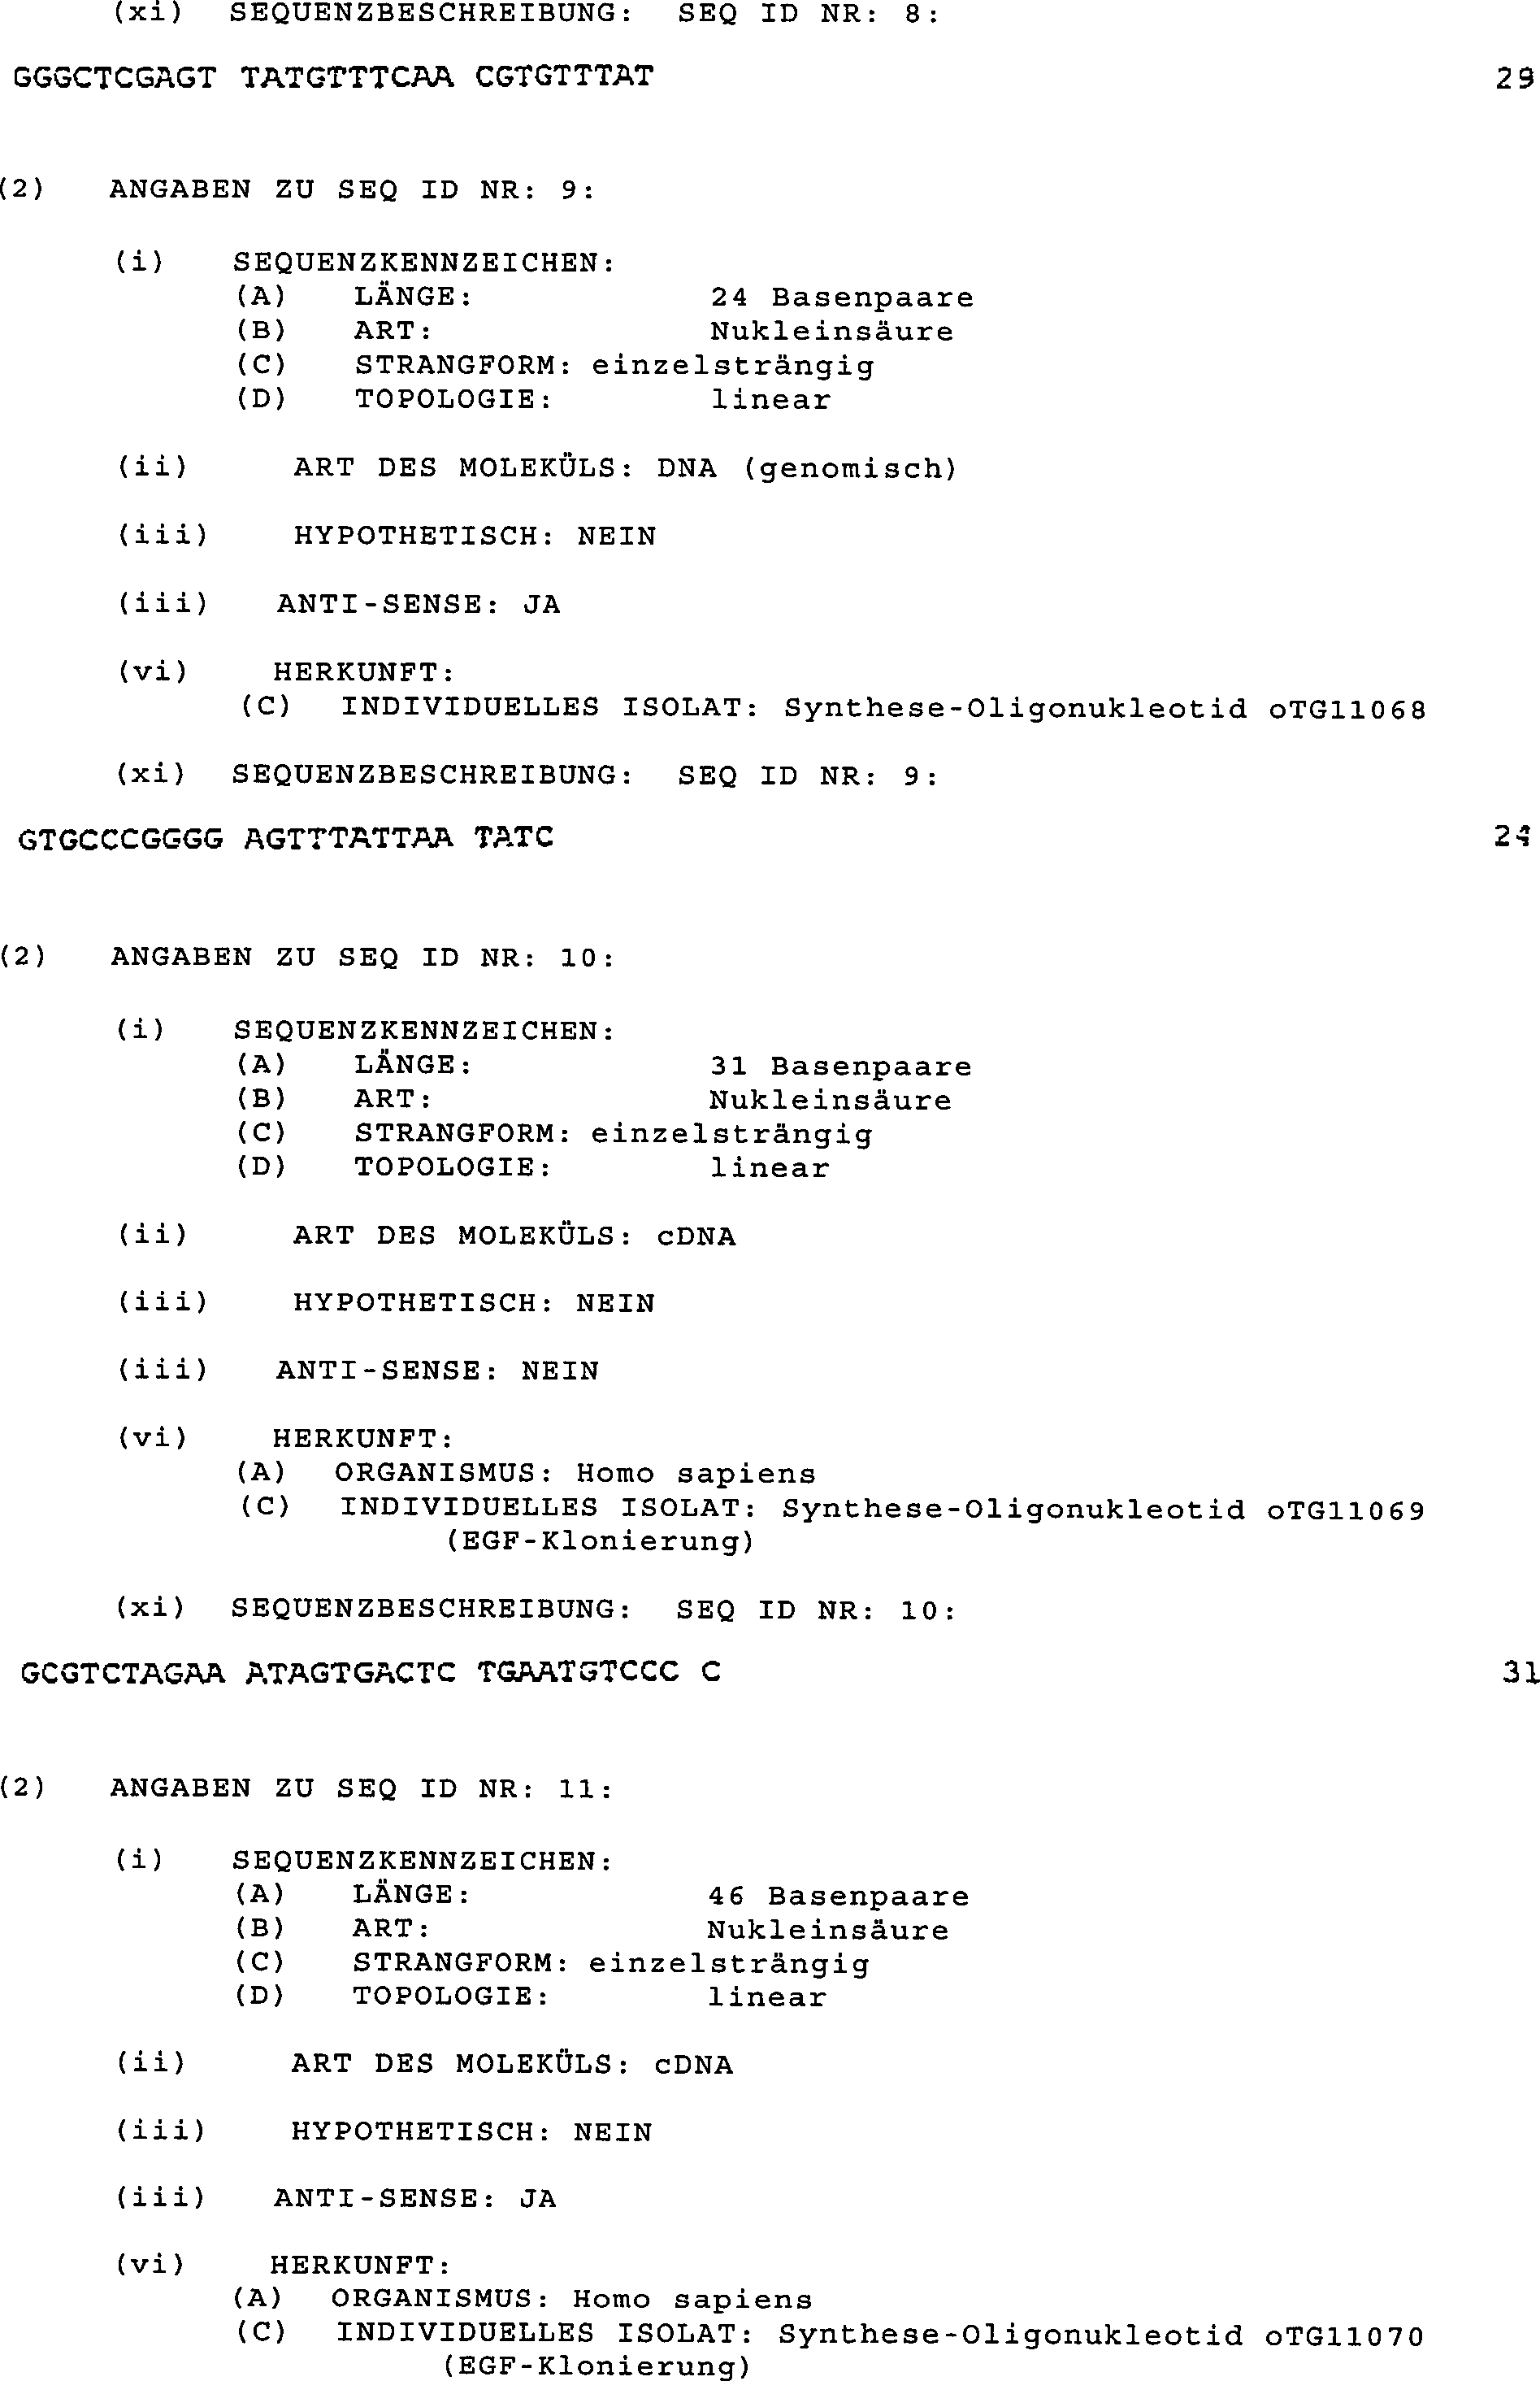
man die Oligonukleotide oTG11065 (SEQ ID NR: 6) und oTG11066 (SEQ
ID NR: 7) ein, um ein HindIII-XbaI-Fragment ausgehend von dem Plasmid
M13TG6527 zu amplifizieren. Die Oligonukleotide oTG11067 (SEQ ID
NR: 8) und oTG11068 (SEQ ID NR: 9) erlauben es, ein XhoI-SmaI-Fragment
(welches von dem Stop-Codon
bis zu nt 33093 geht) ausgehend von M13TG6527 zu erzeugen. Die komplementäre DNA des
EGF, welche von der ATCC erhalten wurde (Nr. 59957), wird in Form
eines XhoI-XbaI-Fragments mit Hilfe der Oligonukleotide oTG11069
(SEQ ID NR: 10) und oTG11070 (SEQ ID NR: 11) amplifiziert. Die drei
durch die adäquaten
Enzyme verdauten Fragmente werden dann religiert, wodurch ein HindIII-SmaI-Fragment
erhalten wird, welches den EGF fusioniert an das C-terminale Ende
der Faser enthält.
Man wendet die gleiche Vorgehensweise der homologen Rekombination
wie jene, die in Beispiel 1 beschrieben wurde, an, um dieses Fragment
in seinem genomischen Kontext zu ersetzen.
-
Indessen
kann man die Klonierungsschritte vereinfachen, indem man eine einmalig
vorkommende BstBI-Stelle in die Zielregion durch die klassischen
Mutagenesetechniken einführt.
Man erhält
pTG4609 und pTG4213 mit LacZ. Die homologe Rekombination zwischen
durch BstBI linearisiertem pTG4609 und dem vorangegangenen HindIII-SmaI-Fragment
erzeugt das Plasmid pTG4225, welches die E1-Wildtyp-Region trägt. Ihr Äquivalent,
welches die LacZ-Expressionskassette pTG4226 trägt, wird durch homologe Rekombination mit
pTG4213, welches durch BstBI verdaut wurde, erhalten. Die Viren
AdTG4225 und AdTG4226 können
auf klassische Weise durch Transfektion einer geeigneten Zelllinie,
welche beispielsweise den Rezeptor für den EGF überexprimiert, erzeugt werden.
-
Um
die Infektionsspezifität
dieser Viren zu testen, kann man die Mäuse-Fibroblastenzellen NR6
und die NR6-hEGFR-Zellen, welche den Rezeptor für den humanen EGF exprimieren,
einsetzen. Kompetitionen mit dem rekombinanten Kopf von Ad5 oder
mit EGF erlauben, die Intervention der natürlichen zellulären Rezeptoren
und EGF für
die Vermittlung der Infektion durch die Viren auszuwerten.
-
BEISPIEL 3: Modifikationen
des Kopfes der Faser, um die Bindung an den natürlichen zellulären Rezeptor
zu beseitigen
-
Die
Mutation der Region der adenoviralen Faser, welche an der Wechselwirkung
mit dem natürlichen zellulären Rezeptor
beteiligt ist, wurde unternommen, um das Vermögen der Faser, an ihren natürlichen
Rezeptor zu binden, zu beseitigen, und das Hinfügen eines Liganden wird erlauben,
den Tropismus der entsprechenden Adenoviren zu modifizieren.
-
Die
Sequenzen der Ad5-Faser, welche die Region, welche sich von den
Resten 443 bis 462 und 529 bis 536 erstreckt, kodieren, wurden diversen
Mutationen unterworfen. Die Deletion des Faltblatts D setzt das Mutagenese-Oligonukleotid
oTG7414 (SEQ ID NR: 12) und die Deletion der Schleife CD das Oligonukleotid oTGA
(SEQ ID NR: 13) ein. Das Oligo nukleotid oTGB (SEQ ID NR: 14) erlaubt
seinerseits die Deletion der CD-Schleife und des Faltblatts D. Das
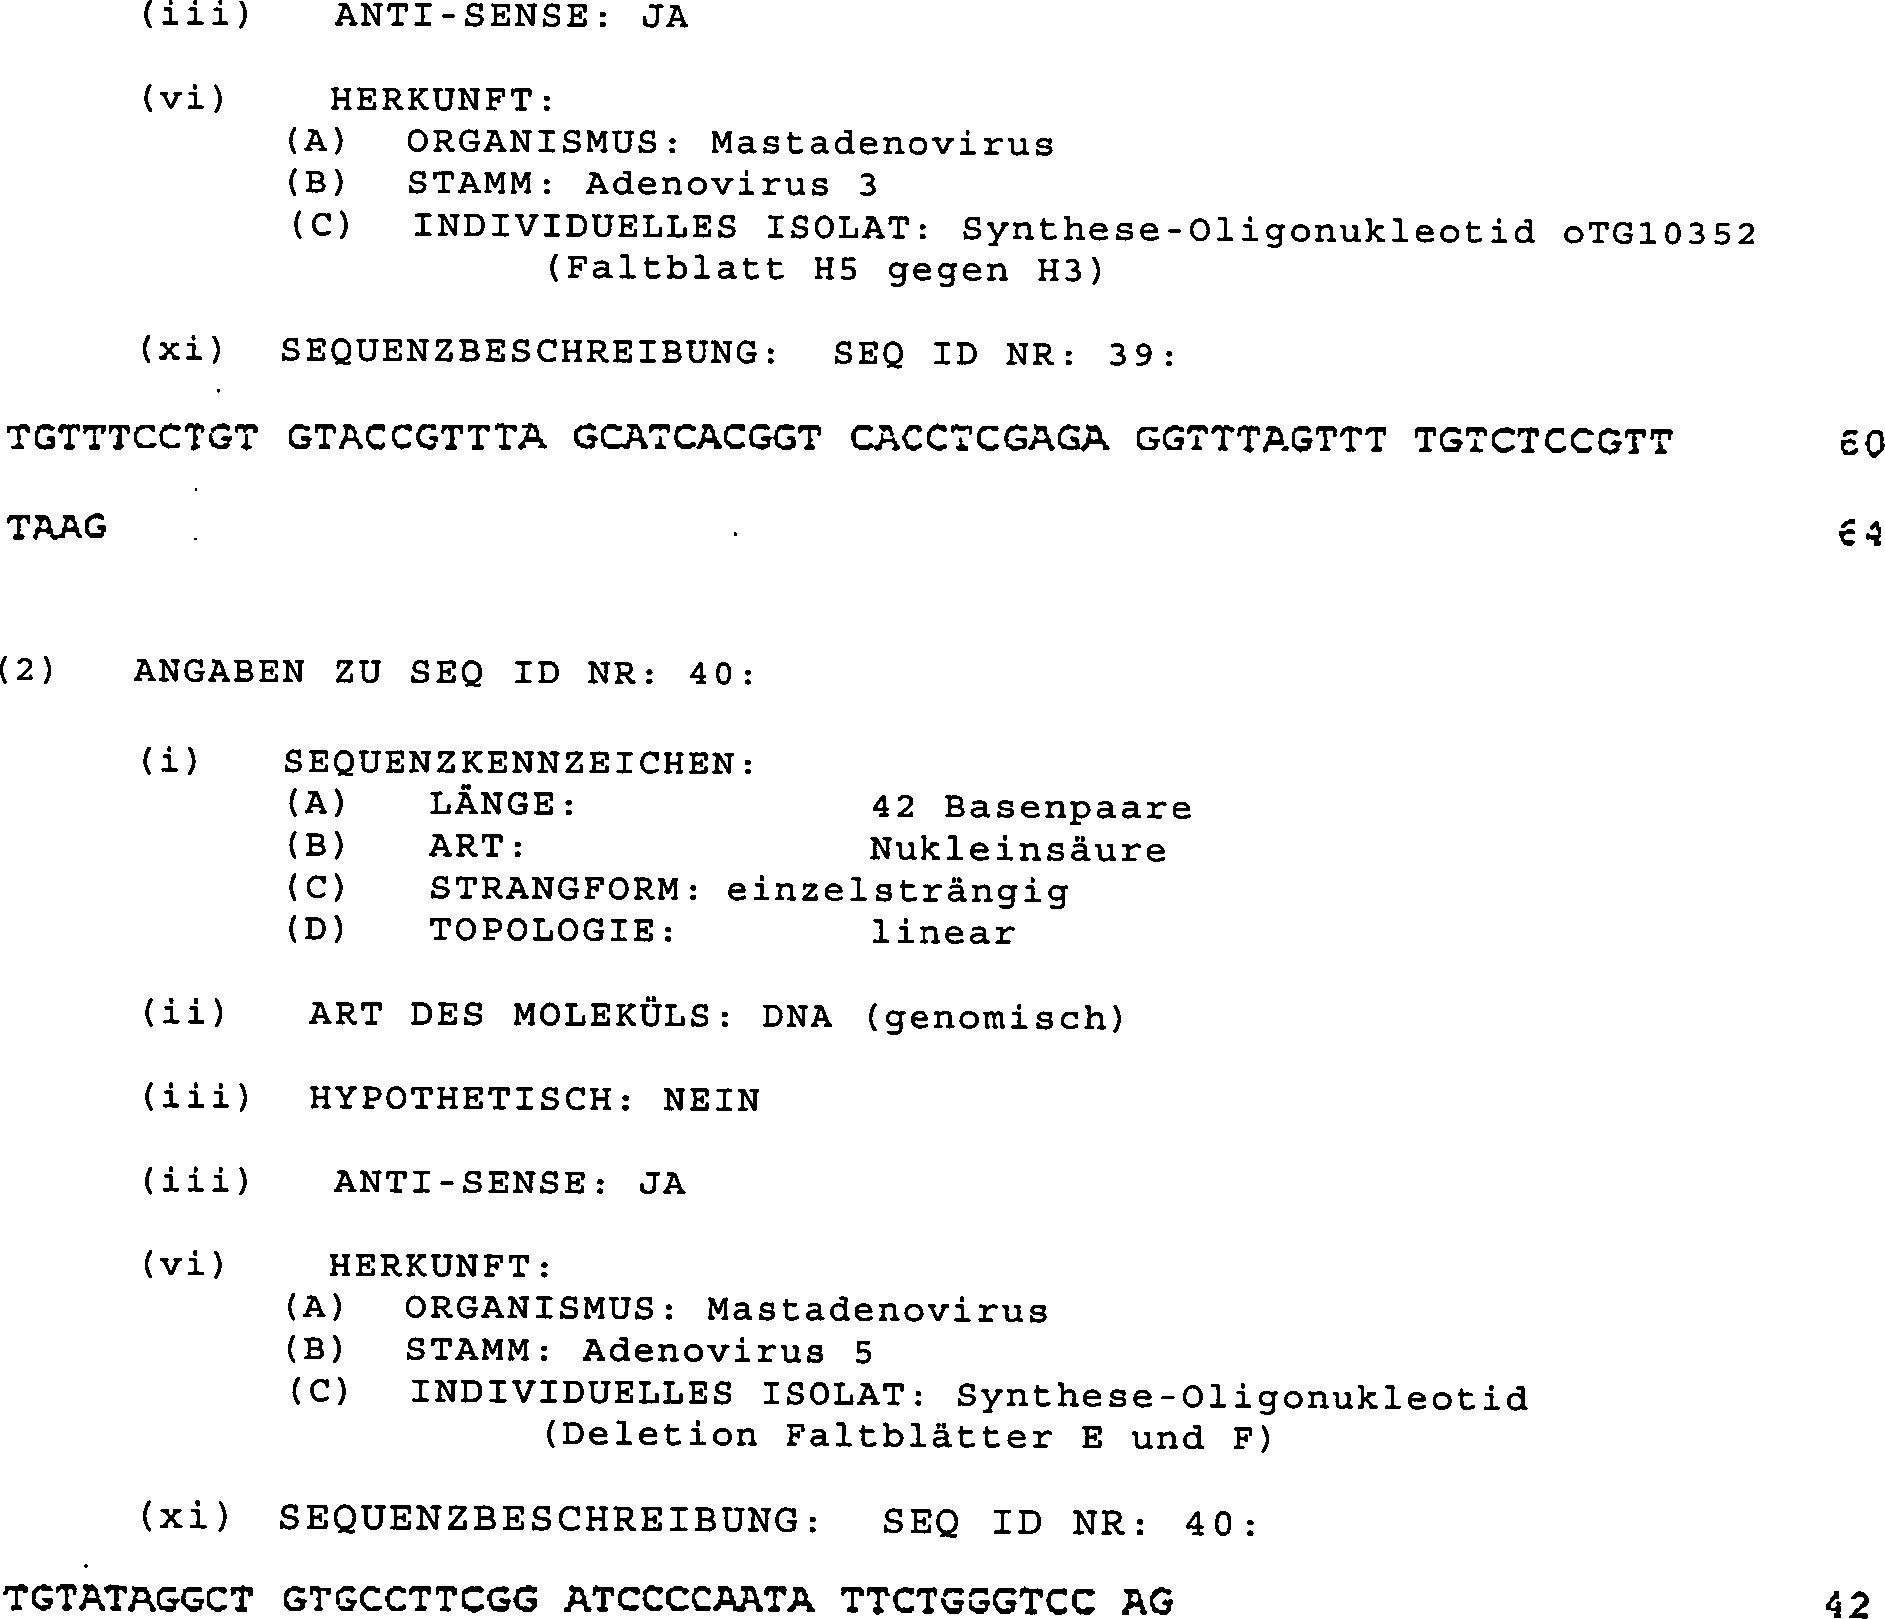
Oligonukleotid OTG 7416 (SEQ ID NR: 38) erlaubt die Deletion des
Faltblatts H. Alle diese Oligonukleotide enthalten eine BamHI-Stelle,
welche erlaubt, die Mutanten leicht zu detektieren und gleichfalls
die einen Liganden, beispielsweise das Peptid EGF, kodierenden Sequenzen
zu inserieren.
-
Eine
andere Reihe von Modifikationen besteht darin, diese deletierten
Regionen durch die äquivalenten
Sequenzen, welche von der Faser von Ad3 stammen, zu ersetzen (D
+ CD5 gegen D + CD3 bezeichnet, dass die Region CD und D der Ad5-Faser
gegen ihr Äquivalent
aus Ad3 ersetzt wird). Tatsächlich
zeigen zahlreiche Daten, dass Ad5 und Ad3 nicht an den gleichen
Rezeptor binden derart, dass eine solche Substitution die durch
den Ad5-Rezeptor vermittelte Infektion vernichten und zielgerichtet
die Zellen, welche den Ad3-Rezeptor tragen, ansteuern lassen müsste. Das
Ersetzen der CD-Schleife von Ad5 durch jene von Ad3 setzt oTG11135
(SEQ ID NR: 15) ein, das Ersetzen des Faltblatts D der Ad5-Faser durch jenes
der Ad3-Faser erfolgt durch das Oligonukleotid oTG10350 (SEQ ID
NR: 16) und das Ersetzen des Faltblatts D und der Schleife CD von
Ad5 durch jene aus Ad3 erfolgt an der vorangegangenen Mutante mit
Hilfe von oTG11136 (SEQ ID NR: 17). Das Ersetzen des Faltblatts
H erfolgt mit Hilfe des Oligonukleotids OTG 10352 (SEQ ID NR: 39).
-
Diese
Zielregion des adenoviralen Kopfes wurde gleichfalls durch eine
Reihe von Punktmutationen modifiziert:
- – Ersetzen
der αα-Krümmung GSLA
gegen die αα-Krümmung DKLT:
oTGC (SEQ ID NR: 18),
- – Ersetzen
der αα-Krümmung SGTV
gegen die αα-Krümmung DKLT:
oTGC (SEQ ID NR: 19),
- – G443
gegen D (G443D): oTGE (SEQ ID NR: 20),
- – L445
gegen F (L445F): oTGF (SEQ ID NR: 21),
- – G450
gegen N (G450N): oTGG (SEQ ID NR: 22),
- – T451
gegen K (T451K): oTGH (SEQ ID NR: 23),
- – V452
gegen N (V425N): oTGI (SEQ ID NR: 24),
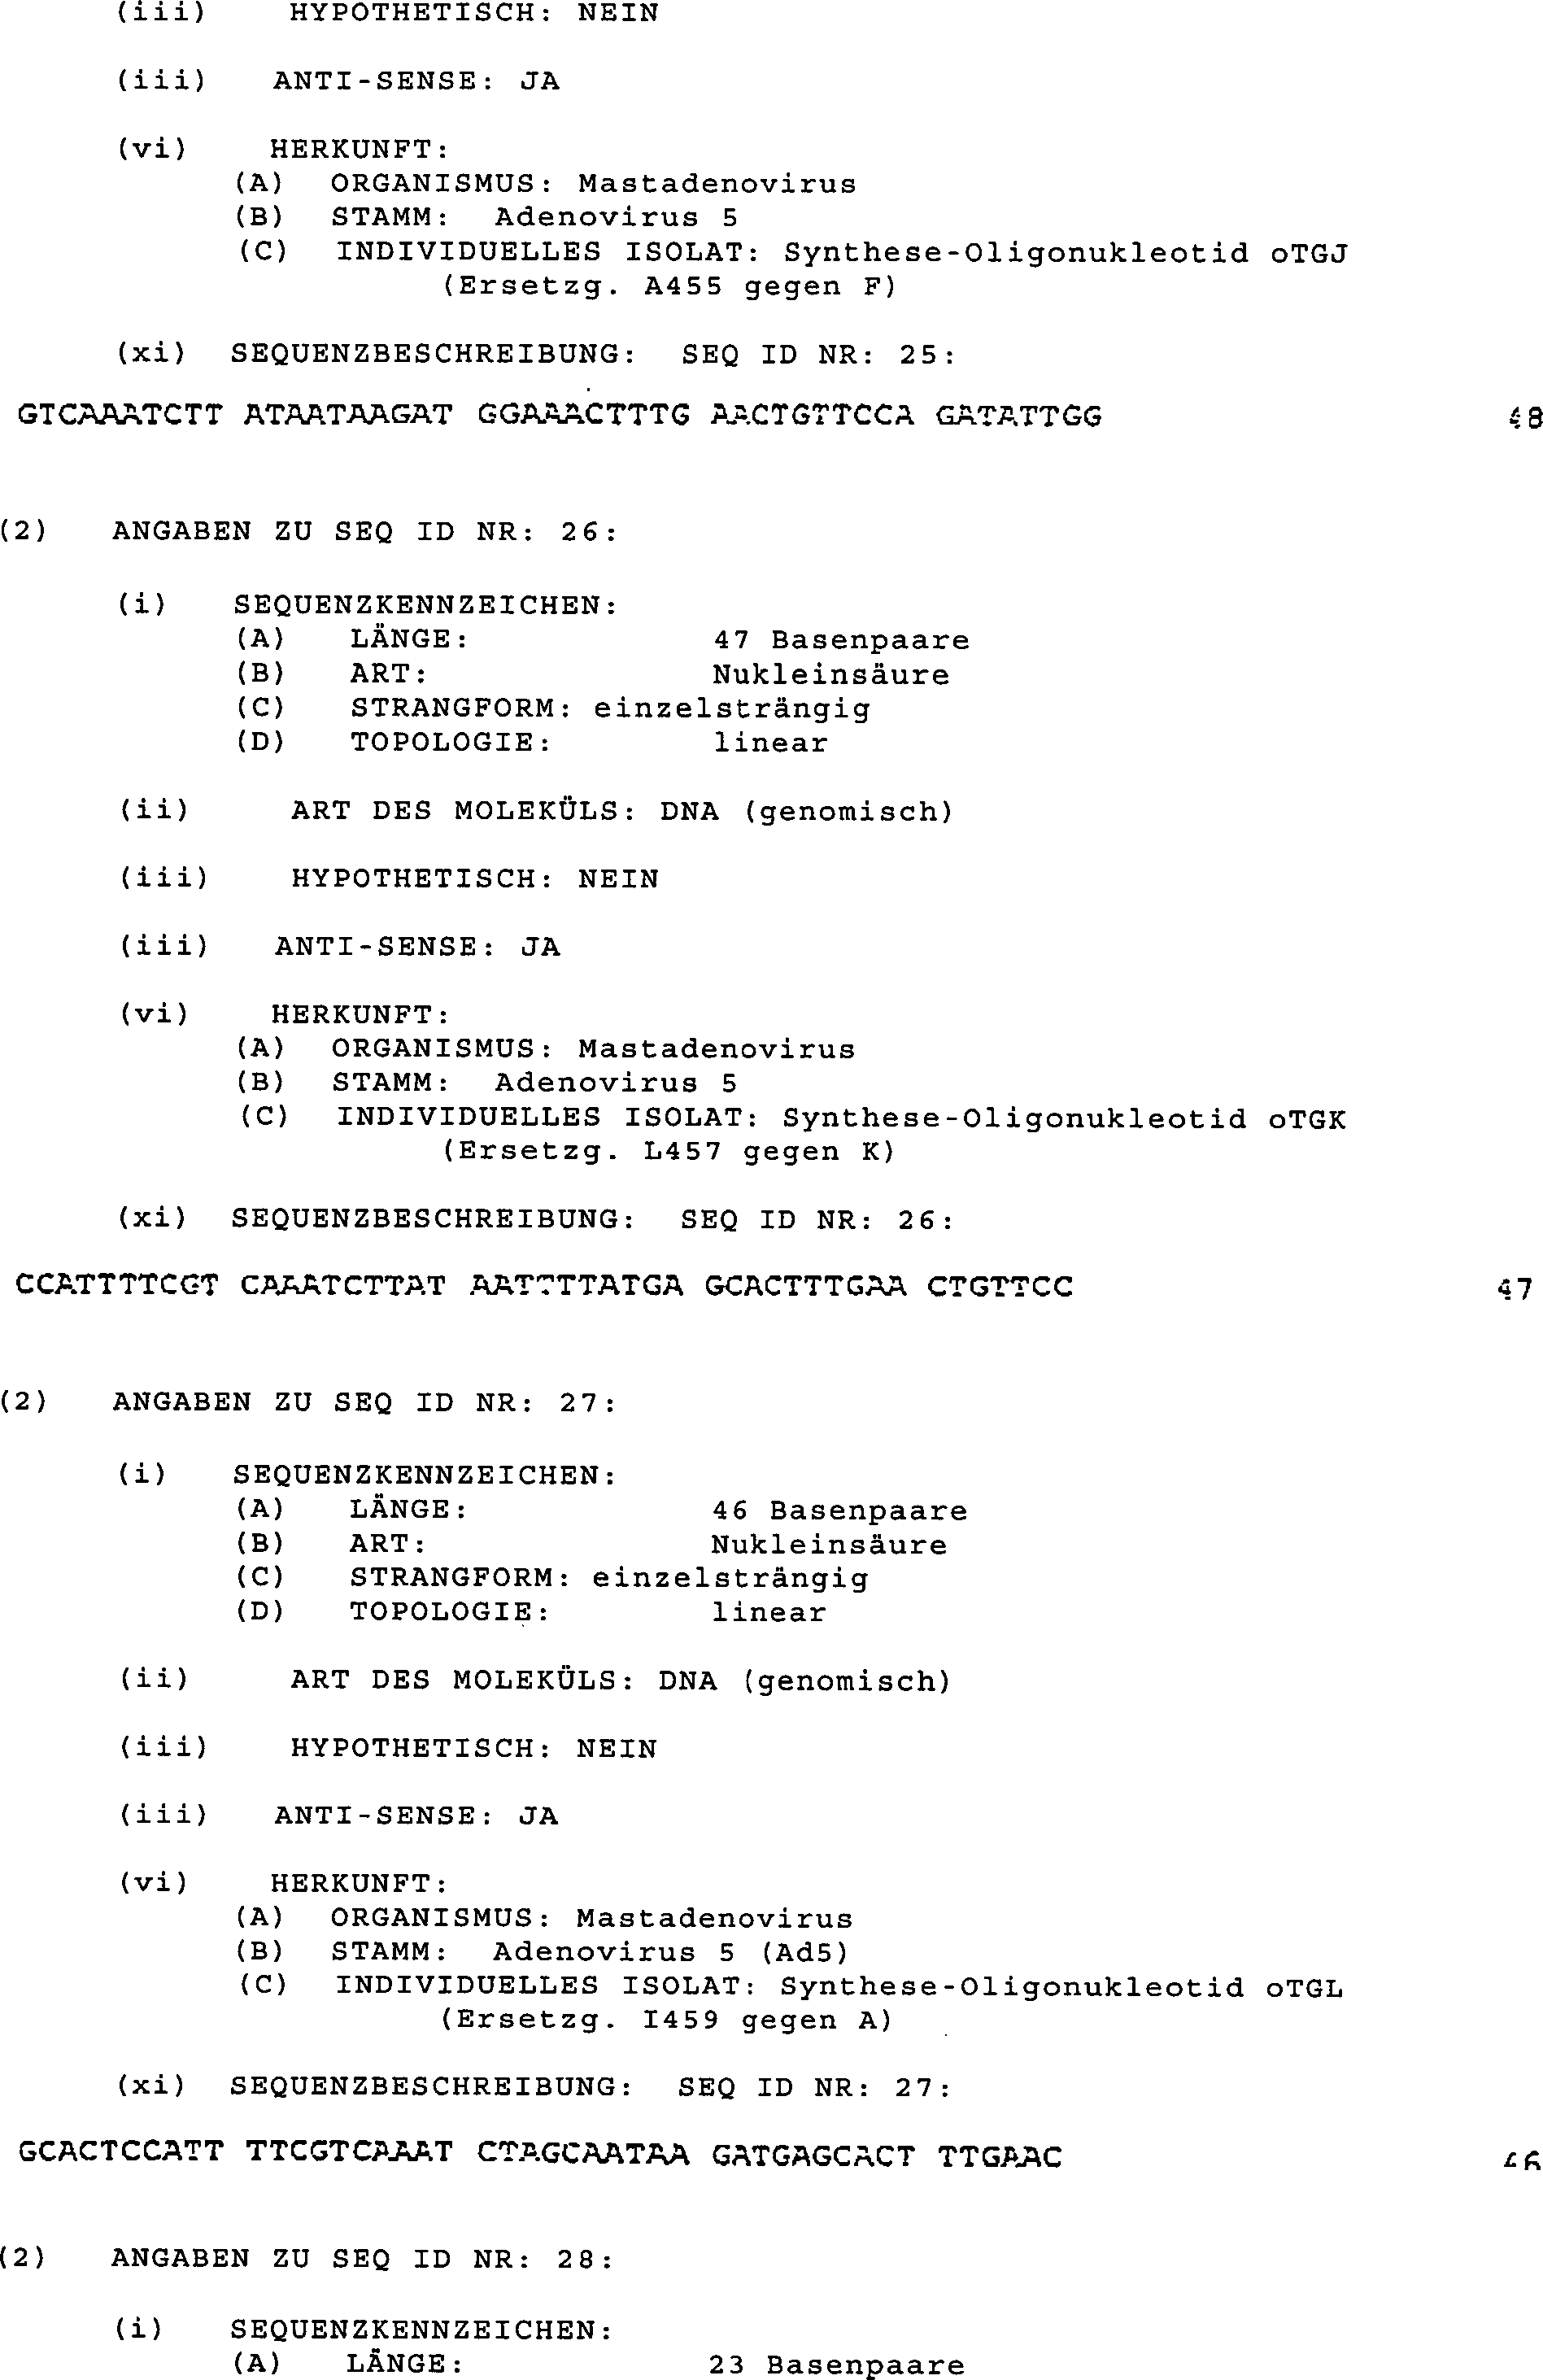
- – A455
gegen F (A455F): oTGJ (SEQ ID NR: 25),
- – L457
gegen K (L457K): oTGK (SEQ ID NR: 26),
- – I459
gegen A (I459A): oTGL (SEQ ID NR: 27).
-
Die
oTGE bis I führen
Mutationen in die CD-Schleife der adenoviralen Faser bei Aminosäuren, die
zwischen Ad5 und Ad3 nicht konserviert sind, ein, wohingegen die
OTGJ bis K Aminosäuren
des Faltblatts D betreffen, die an einer die Struktur stabilisierenden
Wasserstoffbrückenbindung
nicht beteiligt sind.
-
Die
Mutagenesen können
an dem Vektor M13TG6526 oder M13TG6528 ausgeführt werden. Der erste trägt das HindIII-SmaI-Wildtyp-Fragment
und der zweite eben dieses Fragment, welches durch die Insertion der
GRP-Sequenzen modifiziert
worden ist. Die Plasmide, welche das adenovirale Genom tragen, können rekonstituiert
werden, wie weiter oben für
die Plasmide pTG4609 (E1-Wildtyp) und pTG4213 (LacZ anstelle der E1-Region) beschrieben.
Die Viren werden durch Transfektion von 293-Zellen oder ebenso von Zellen, welche den
Rezeptor, welcher den betreffenden Liganden bindet, überexprimieren,
erzeugt. Solche Zellen können durch
Transfektion mit der entsprechenden komplementären DNA erzeugt werden. Man
setzt vorzugsweise Zellen ein, die den natürlichen zellulären Rezeptor
der Adenoviren von Natur aus nicht exprimieren, beispielsweise die
Linie Daudi (ATCC CCL213).
-
Die
Lebensfähigkeit
der verschiedenen Mutanten wird ausgewertet durch Transfektion von
293-Zellen und 293-Fb+-Zellen (293-Zellen,
welche durch einen Expressionsvektor der Ad5-Wildtyp-Faser transfiziert
worden sind). Indessen ist die Transfektionseffizienz von einem
Experiment zum anderen variabel, ebenso was ein Adenovirus betrifft,
welches eine Wildtyp-Faser, in welche das GRP-Peptid an ihrem C-terminalen
Ende inkorporiert worden ist (AdFbGRP), betrifft. Um die Ergebnisse
zu standardisieren, werden die nach Transfektion von 293-Fb+-Zellen erhaltenen Plaques zuallererst auf
eben dieser Linie amplifiziert und die erzeugten Viren werden titriert:
in diesem Stadium können
sie entweder die Wildtyp-Faser oder die mutierte Faser oder die beiden
Arten tragen. Die 293-Zellen werden dann mit diesen Viren in einer
geringen Infektionsmultiplizität,
welche lediglich erlaubt, ungefähr
10% der Zellen zu infizieren (MOI von ungefähr 0,2 infektiöse Einheit/Zelle),
infiziert und man bestimmt den Umfang der Virusinfektion 7 Tage
nach der Infektion, indem man die Anhäufung der viralen DNA und den
Virustiter misst. Da die Propagierung der Infektion von der mutierten
Faser ab hängig ist,
sind die interessanten Mutanten jene, die zu keiner produktiven
Infektion führen,
was zeigt, dass die Mutation die Bindung an den natürlichen
Rezeptor verändert.
Das Propagierungsvermögen
der Adenoviren, welche die mutierte Faser tragen, wird mit jenem
eines Wildtyp-Adenovirus und eines AdFbGRP verglichen.
-
Die
Ergebnisse zeigen, dass die Insertion des GRP-Peptids am Ende der
Wildtyp-Faser die Vermehrung des entsprechenden Virus verglichen
mit einem Wildtyp-Ad leicht verringert, aber der Vermehrungsfaktor liegt
nichtsdestotrotz in der Größenordnung
von 1000. Die Mutationen V425N, D + CD5 gegen D + CD3 und L445F
verringern die Affinität
des Kopfes der mutierten Faser für
den natürlichen
zellulären
Rezeptor der Adenoviren signifikant (Faktor 3 bis 11). Die Mutationen ΔD (Deletion
des Faltblatts D der Ad5-Faser), ΔCD
+ D (Deletion der CD-Schleife und des Faltblatts D), CD5 gegen CD3
(Ersetzen der CD-Schleife eines Ad5 durch ihr Äquivalent aus einem Ad3), G443D,
A455F, L457K und I459A vernichten die Propagierung der entsprechenden
Viren in den 293-Zellen (Vermehrungsfaktor unter 1).
-
Dann
verifiziert man das Vermögen
der mutierten Viren, in die Zielzellen durch das Zwischenglied des Rezeptors
für das
GRP einzudringen. Die interessanten Mutanten sind jene, die einen
signifikanten Vermehrungsfaktor (über 1) aufweisen. Zu diesem
Zweck kann man eine als 293-GRPR
bezeichnete Linie einsetzen, welche den MHC-I und den Rezeptor für das GRP
in erhöhten
Niveaus exprimiert. Sie wird erzeugt durch Transfektion von 293-Zellen
mit einem eukaryotischen Expressionsplasmid, welches die cDNA des
GRP-Rezeptors trägt
(Corjay et al., 1991, J. Biol. Chem. 266, 18771–18779). Die Expressionskassette
wird aus dem frühen
CMV-Promotor (Boshart et al., 1985, Cell 41, 521), den Spleißsequenzen
des β-Globin-Gens,
der den GRP-Rezeptor kodierenden cDNA und den polyA-Sequenzen des β-Globin-Gens
gebildet. Die Selektion der Transformanten erfolgt in Gegenwart
von Hygromycin (350 μg/ml)
und es werden 50 Klone selektioniert, amplifiziert und hinsichtlich
der Expression der den Rezeptor kodierenden mRNA durch die Northern-Technik
getestet. Die am stärksten
produzierenden Klone werden vereinigt und als 293-GRPR bezeichnet.
Die Expression des Proteins kann gleichfalls durch FACS mit Hilfe
eines mit Biotin und mit Avidin-FITC konjugierten GRP-Peptids, gefolgt
von einer Detektion mit Hilfe von Fluorescein, kontrolliert werden.
-
BEISPIEL 4: Insertion
des Liganden in ein anderes Capsid-Protein als die Faser in Kombination
mit einer der vorangegangenen Modifikationen der Faser
-
Dieses
Beispiel beschreibt die Insertion des Liganden EGF in das Capsid-Protein
Hexon. Selbstverständlich
ist es bevorzugt, dass das entsprechende Adenovirus seine Fähigkeit
zur Anheftung an den natürlichen
zellulären
Rezeptor verloren hat. Sein Genom kann beispielsweise ein Gen der
modifizierten Faser umfassen (siehe Beispiel 3) oder ihm kann wenigstens
ein Teil der Sequenzen der Faser fehlen.
-
Man
konstruiert ein Transfer-Plasmid für die homologe Rekombination,
welches die Region des Genoms von Ad5, welche das Hexon kodiert
(nt 18842–21700), überspannt.
Das HindIII-XhoI-Fragment von Ad5 (nt 18836–24816) wird in durch eben
diese Enzyme verdauten pBSK+ (Stratagene) kloniert, wodurch das
Plasmid pTG4224 erhalten wird. Die das Peptid EGF kodierenden Sequenzen
werden in die hypervariable Schleife L1 des Hexons durch Erzeugung
von chimären
Fragmenten durch PCR eingeführt:
Hexon (nt 19043–19647)-XbaI-EGF-BsrGI-Hexon
(nt 19699–20312).
Das Fragment nt 19043 bis 19647 wird durch PCR-Amplifizierung ausgehend
von dem Plasmid pTG3602 mit den Oligonukleotiden oTG11102 (SEQ ID
NR: 28) und oTG11103 (SEQ ID NR: 29) erhalten. Das Fragment nt 19699
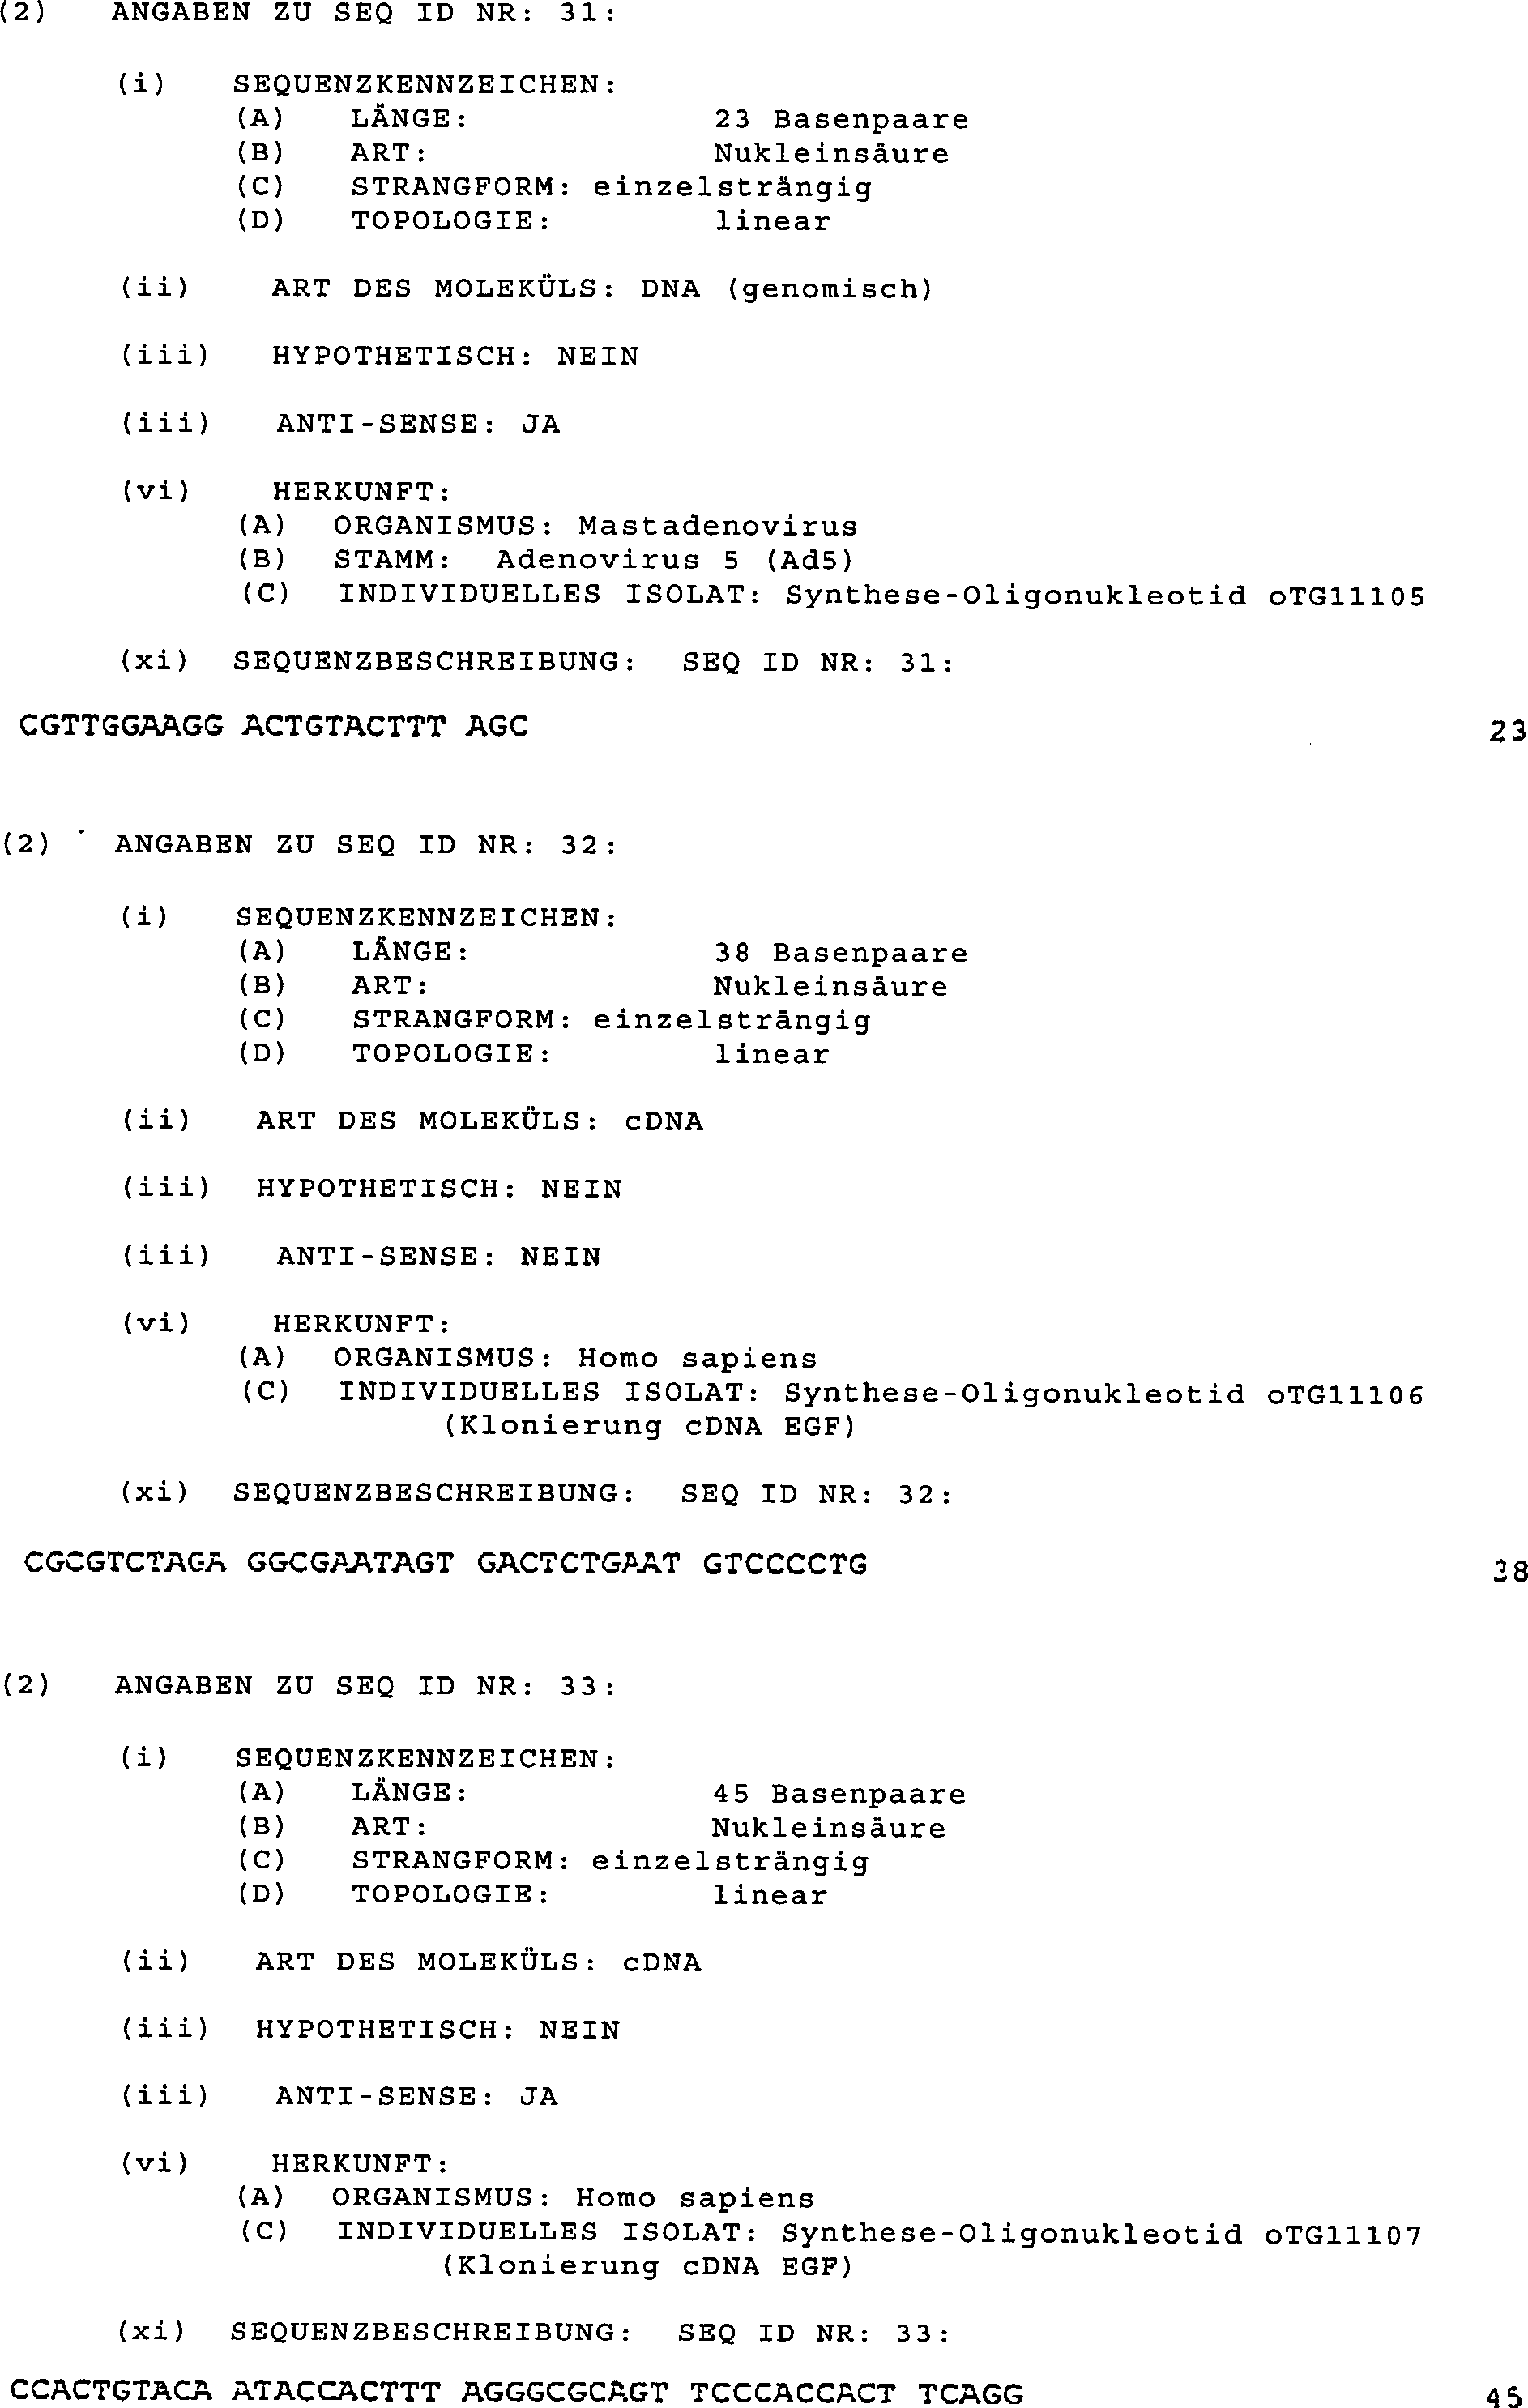
bis 20312 wird ausgehend von eben dieser DNA mit den Oligonukleotiden
oTG11104 (SEQ ID NR: 30) und oTG11105 (SEQ ID NR: 31) amplifiziert. Der
EGF wird ausgehend von der cDNA mit Hilfe der Oligonukleotide oTG11106
(SEQ ID NR: 32) und oTG11107 (SEQ ID NR: 33), welche erlauben, die
den EGF kodierende Sequenz in Phase mit dem Hexon zu bringen, kloniert.
Die PCR-Produkte werden mit den adäquaten Enzymen verdaut, dann
religiert. Das chimäre Fragment
kann dann durch homologe Rekombination in das durch NdeI linearisierte
(nt 19549) Plasmid pTG4224 inseriert werden, wodurch pTG4229 erhalten
wird. Die das modifizierte Hexon kodierenden Sequenzen können durch
HindIII-XhoI-Verdau erhalten und in ihrem genomischen Kontext durch
homologe Rekombination ersetzt werden. Man kann den durch SgfI linearisierten
Vektor pTG3602, pTG4607, pTG4629 oder einen Vektor, welcher das
adenovirale Genom, bei welchem Sequenzen der Faser deletiert sind
(wie das nachfolgend beschriebene pTG4607), enthält oder welcher eine modifizierte
Faser entsprechend dem Beispiel 3 exprimiert, einsetzen.
-
Das
adenovirale Genom, welches nicht in der Lage ist, eine funktionsfähige native
Faser zu erzeugen, wird durch eine Deletion erhalten, welche das
Startcodon mit einbezieht, sich aber nicht auf die anderen adenoviralen
ORFs erstreckt. Man geht auf die folgende Weise vor: das adenovirale
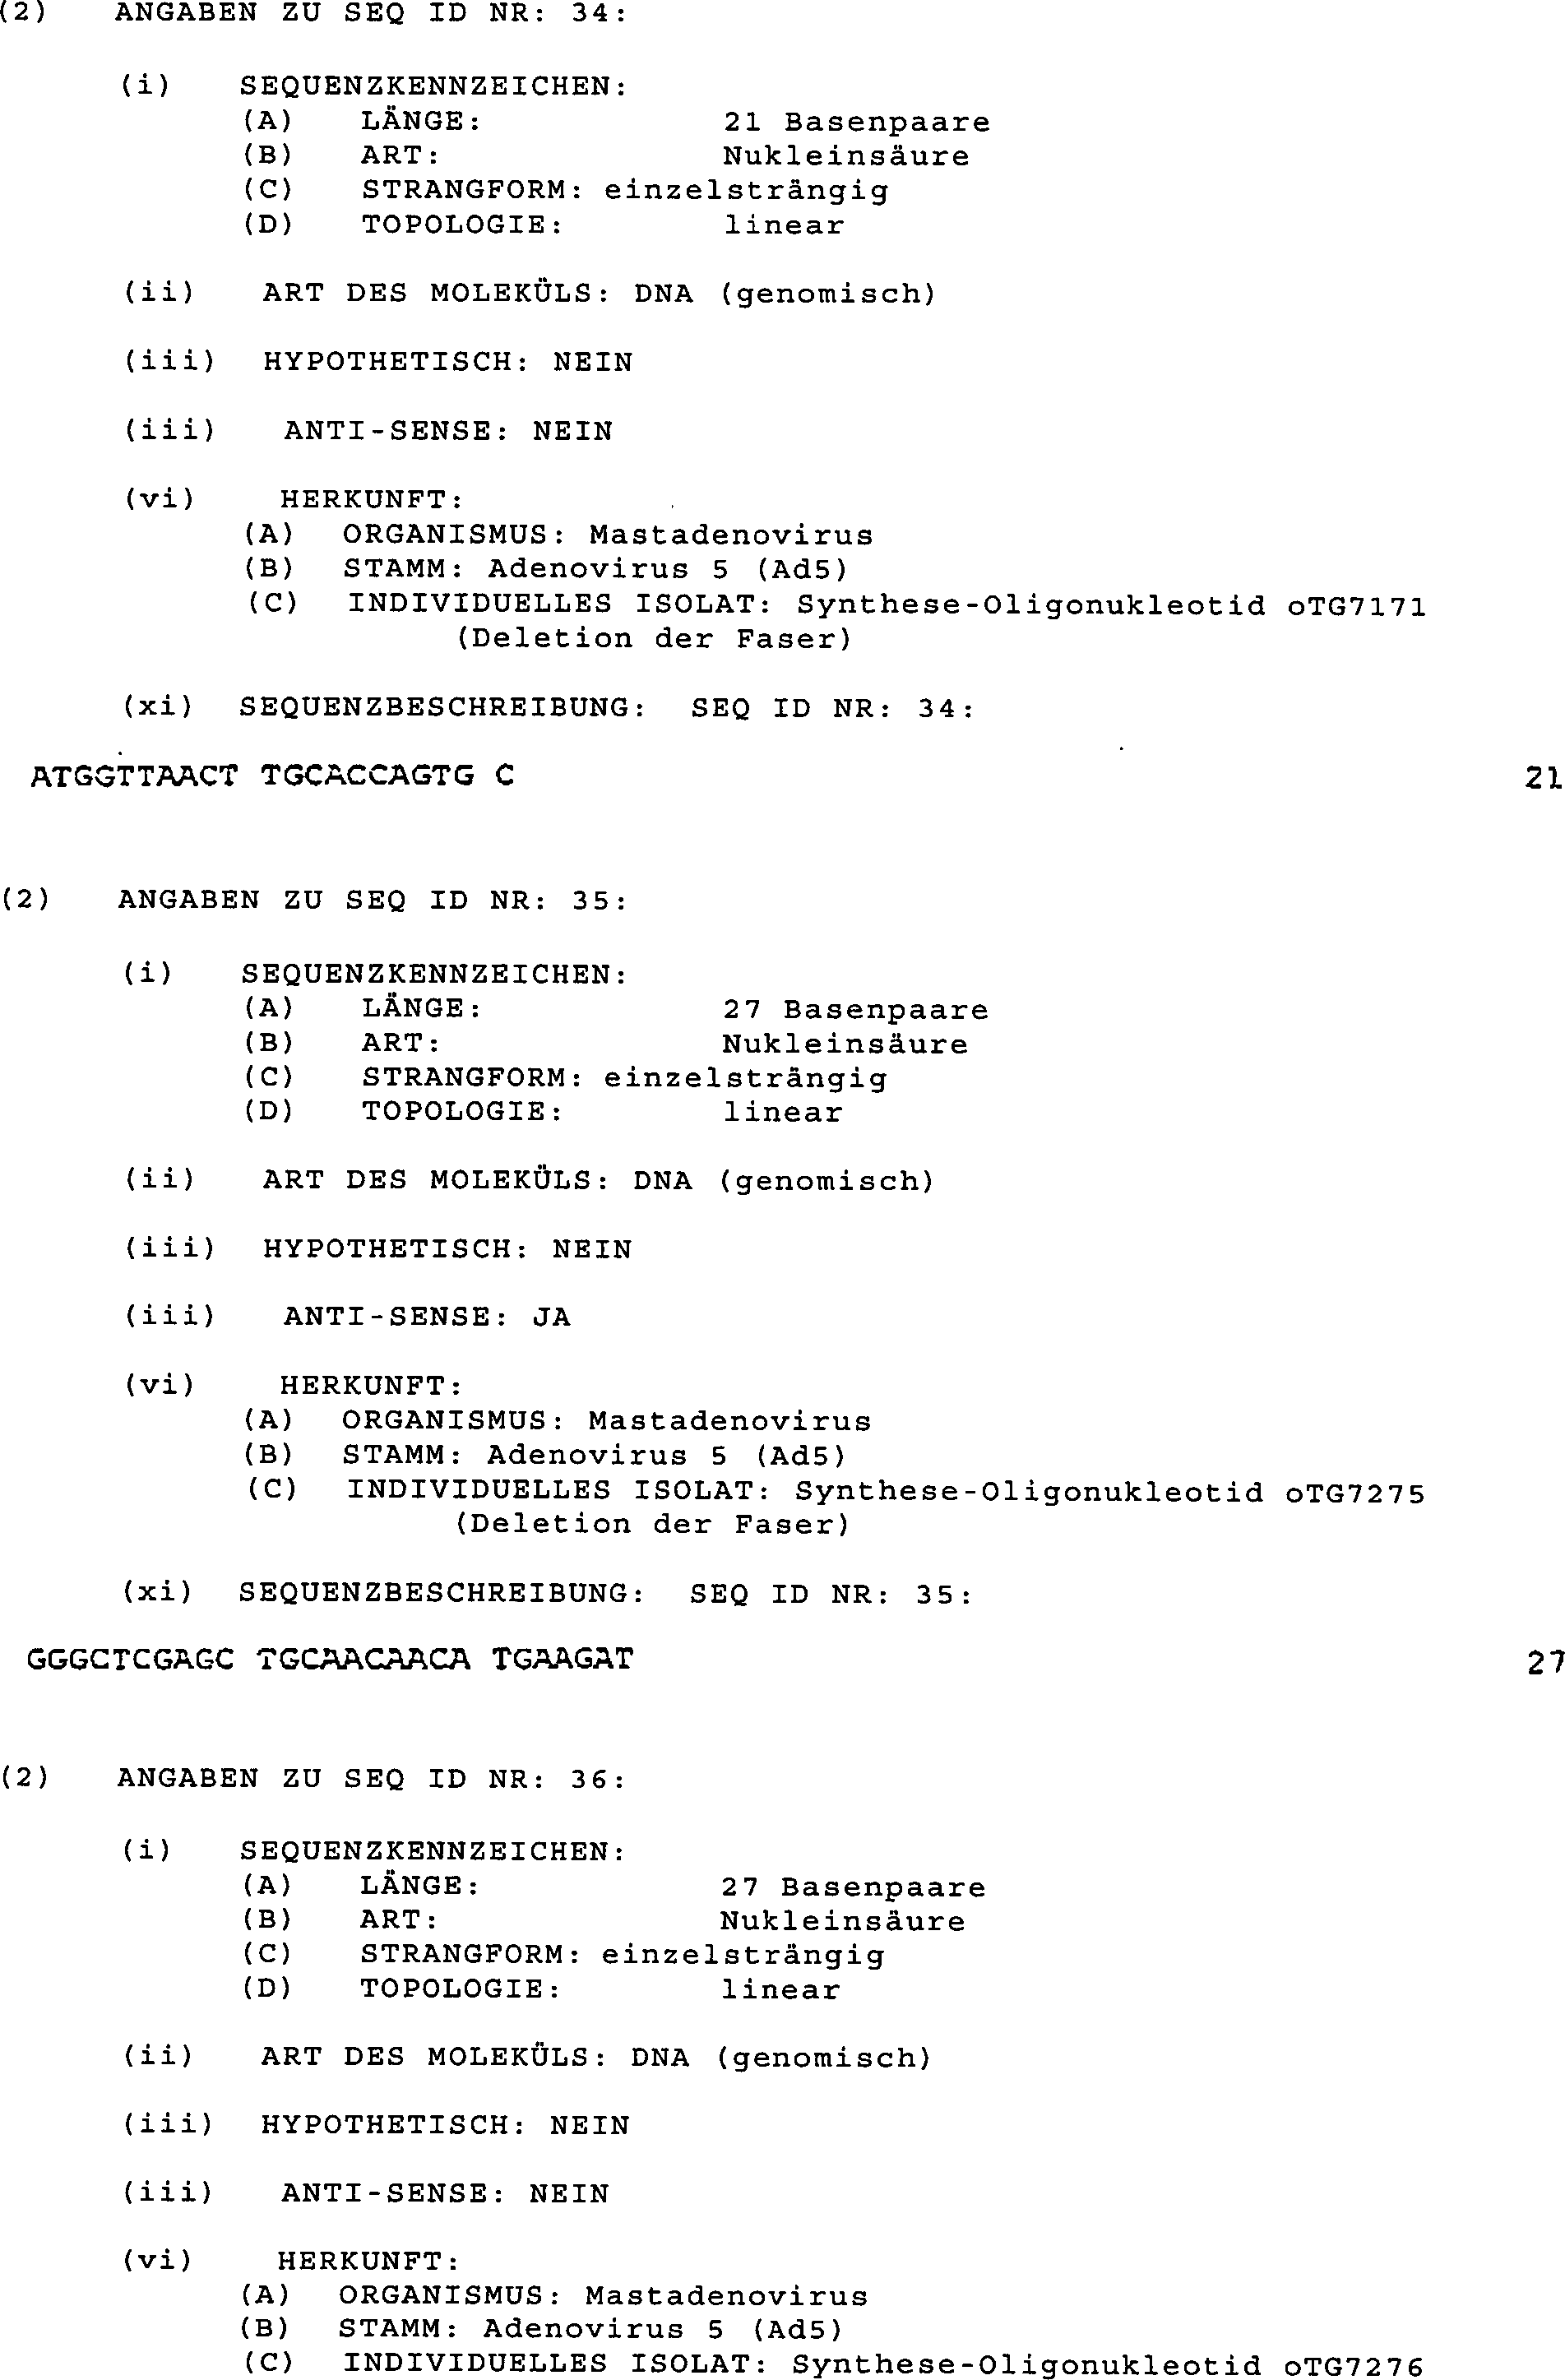
Fragment 5' von
der Deletion (nt 30564 bis 31041) wird durch PCR mit Hilfe der Primer
oTG7171 und oTG7275 (SEQ ID NR: 34 und 35) amplifiziert. Die Amplifizierung
des 3'-Fragments
(nt 31129 bis 33099) setzt die Primer oTG7276 und oTG7049 (SEQ ID
NR: 36 und 37) ein. Die PCR-Fragmente werden durch XhoI verdaut
und ligiert, bevor sie durch homologe Rekombination in den durch
NdeI linearisierten Vektor pTG6591 eingeführt werden, wodurch pTG4602 erhalten
wird. Dann wird das aus diesem Letzteren isolierte BstEII-Fragment
einer homologen Rekombination mit dem durch SpeI verdauten Vektor
pTG3602 unterworfen. Man erhält
pTG4607. Der Vektor pTG4629 ist äquivalent
zu pTG4607, enthält
aber außerdem
die LacZ-Expressionskassette anstelle von E1.
-
Die
entsprechenden Viren können
nach Transfektion von 293-Zellen, 293-Fb+-Zellen oder
von Zellen, welche den Rezeptor für den EGF überexprimieren, erhalten werden.
Die Untersuchung der Infektionsspezifität wird man, wie zuvor beschrieben,
unter Verwendung von EGF als Kompetitor ausführen können.
-
BEISPIEL 5: Konstruktion
einer Mutante der Faser, bei welcher die Faltblätter E und F deletiert sind
-
Es
wurde gleichfalls eine Mutante mit einer Deletion der Faltblätter EF
der Domäne
des Kopfes der Faser von Ad5 erzeugt. Das Plasmid pTG6593 wird durch
HindIII und SmaI verdaut und das die Sequenzen der Faser enthaltende
Fragment wird isoliert und in den durch HindIII und SmaI gespaltenen
Vektor M13TG130 kloniert. Die Deletionsmutation setzt das in der
SEQ ID NR: 40 angegebene Oligonukleotid ein. Das mutierte HindIII-SmaI-Fragment
wird in E. coli mit durch BstBI linearisiertem pTG4609 (Chartier
et al., 1996, J. Virol. 70, 4805–4810) rekombiniert.
-
Dieser
Letztere enthält
das vollständige
Ad5-Genom, welches eine BstBI-Stelle an Position 32940 strangabwärts von
dem Stop-Codon der Faser umfasst.
-
Das
Trimerisierungsvermögen
der modifizierten Faser wurde auf einem NDS-PAGE-Gel (Novelli und Boulanger,
J. of Biological Chemistry, 1991, 2 66, 9299–9303) ausgehend von dem auf
rekombinantem Wege in Sf9-Insektenzellen
mit Hilfe eines rekombinanten Baculovirus, welches die entsprechenden
Sequenzen unter die Kontrolle des Polyhedrin-Promotors gestellt
enthält,
produzierten Protein getestet. Parallel dazu wird die Lebensfähigkeit
(oder das Vermögen,
zu propagieren) der Virionen, welche die mutierte Faser tragen,
durch Transfektion von 293- und 293Fb+-Zellen
bestimmt. Schließlich
kann die Bindung der Faser an die zellulären MHC-I- und CAR-Rezeptoren
in Kompetitionsinfektionsexperimenten mit Hilfe eines rekombinanten Ad5-Luc-Adenovirus
bei Daudi-HLA+- und CHO-CAR-Zellen (Bergelson et al.,
1997, Science 275, 1320–1323) untersucht
werden. Zur Unterrichtung ist das Ad5Luc-Virus ein replikationskompetentes
Adenovirus, welches das unter die Kontrolle des frühen Promotors
des SV40-Virus (Simian Virus 40) gestellte Luciferasegen inseriert
in die E3-Region des adenoviralen Genoms enthält (Mittal et al., 1993, Virus
Research 28, 67–90).
-
Die
Faser ΔEF
häuft sich
in Form von Trimeren an, kann in 293- und 293Fb+-Zellen propagieren
und ist kein Kompetitor hinsichtlich der Infektion der Daudi-HLA+-Zellen durch Ad5Luc. Sie ist in der Lage,
die Infektion der CHO-CAR-Zellen teilweise zu hemmen, aber weniger
wirkungsvoll als die Wildtyp-Faser. Dies legt nahe, dass die Faltblätter E und
F für die
Anheftung des Ad5 an den MHC-I-Rezeptor wichtig sind, wohingegen sie
eine geringfügigere
Rolle, vielleicht eine Stabilisierungsrolle, bei der Bindung an
den CAR spielen. Die Insertion eines neuen Liganden müsste erlauben,
die Infektiosität
in Richtung der Zellen, die den durch den Liganden erkannten Rezeptor
tragen, umzudirigieren.
-
-
-
-
-
-
-
-
-
-
-
-
-
-
-
-
-