RU2620165C2 - Способ индукции гибели опухолевых клеток - Google Patents
Способ индукции гибели опухолевых клеток Download PDFInfo
- Publication number
- RU2620165C2 RU2620165C2 RU2015136918A RU2015136918A RU2620165C2 RU 2620165 C2 RU2620165 C2 RU 2620165C2 RU 2015136918 A RU2015136918 A RU 2015136918A RU 2015136918 A RU2015136918 A RU 2015136918A RU 2620165 C2 RU2620165 C2 RU 2620165C2
- Authority
- RU
- Russia
- Prior art keywords
- trail
- cells
- cell
- receptors
- death
- Prior art date
Links
- 210000004881 tumor cell Anatomy 0.000 title claims abstract description 33
- 238000000034 method Methods 0.000 title claims description 12
- 230000030833 cell death Effects 0.000 title abstract description 14
- 230000006698 induction Effects 0.000 title description 4
- 210000004027 cell Anatomy 0.000 claims abstract description 77
- GXJABQQUPOEUTA-RDJZCZTQSA-N bortezomib Chemical compound C([C@@H](C(=O)N[C@@H](CC(C)C)B(O)O)NC(=O)C=1N=CC=NC=1)C1=CC=CC=C1 GXJABQQUPOEUTA-RDJZCZTQSA-N 0.000 claims abstract description 17
- 229960001467 bortezomib Drugs 0.000 claims abstract description 17
- 238000002474 experimental method Methods 0.000 claims abstract description 6
- 238000011282 treatment Methods 0.000 claims abstract description 3
- 230000001939 inductive effect Effects 0.000 claims description 11
- 230000034994 death Effects 0.000 claims description 9
- 239000003814 drug Substances 0.000 abstract description 15
- 238000002360 preparation method Methods 0.000 abstract description 15
- 230000000694 effects Effects 0.000 abstract description 9
- 231100000491 EC50 Toxicity 0.000 abstract 1
- 231100000253 induce tumour Toxicity 0.000 abstract 1
- 239000000126 substance Substances 0.000 abstract 1
- 102100024598 Tumor necrosis factor ligand superfamily member 10 Human genes 0.000 description 95
- 102000009058 Death Domain Receptors Human genes 0.000 description 30
- 108010049207 Death Domain Receptors Proteins 0.000 description 30
- AOJJSUZBOXZQNB-TZSSRYMLSA-N Doxorubicin Chemical compound O([C@H]1C[C@@](O)(CC=2C(O)=C3C(=O)C=4C=CC=C(C=4C(=O)C3=C(O)C=21)OC)C(=O)CO)[C@H]1C[C@H](N)[C@H](O)[C@H](C)O1 AOJJSUZBOXZQNB-TZSSRYMLSA-N 0.000 description 24
- 206010028980 Neoplasm Diseases 0.000 description 20
- 108010000449 TNF-Related Apoptosis-Inducing Ligand Receptors Proteins 0.000 description 18
- 102000002259 TNF-Related Apoptosis-Inducing Ligand Receptors Human genes 0.000 description 18
- 230000006907 apoptotic process Effects 0.000 description 18
- 102000005962 receptors Human genes 0.000 description 16
- 108020003175 receptors Proteins 0.000 description 16
- 229940079593 drug Drugs 0.000 description 14
- 229930012538 Paclitaxel Natural products 0.000 description 12
- 229960004679 doxorubicin Drugs 0.000 description 12
- 229960001592 paclitaxel Drugs 0.000 description 12
- RCINICONZNJXQF-MZXODVADSA-N taxol Chemical compound O([C@@H]1[C@@]2(C[C@@H](C(C)=C(C2(C)C)[C@H](C([C@]2(C)[C@@H](O)C[C@H]3OC[C@]3([C@H]21)OC(C)=O)=O)OC(=O)C)OC(=O)[C@H](O)[C@@H](NC(=O)C=1C=CC=CC=1)C=1C=CC=CC=1)O)C(=O)C1=CC=CC=C1 RCINICONZNJXQF-MZXODVADSA-N 0.000 description 12
- 230000035899 viability Effects 0.000 description 10
- 238000012360 testing method Methods 0.000 description 9
- 102000004127 Cytokines Human genes 0.000 description 8
- 108090000695 Cytokines Proteins 0.000 description 8
- 101000610609 Homo sapiens Tumor necrosis factor receptor superfamily member 10D Proteins 0.000 description 8
- 102100040110 Tumor necrosis factor receptor superfamily member 10D Human genes 0.000 description 8
- 239000003153 chemical reaction reagent Substances 0.000 description 8
- 230000000973 chemotherapeutic effect Effects 0.000 description 8
- 239000002246 antineoplastic agent Substances 0.000 description 7
- 230000001404 mediated effect Effects 0.000 description 7
- 108091003079 Bovine Serum Albumin Proteins 0.000 description 6
- 108010035042 Osteoprotegerin Proteins 0.000 description 6
- 102000008108 Osteoprotegerin Human genes 0.000 description 6
- 230000003013 cytotoxicity Effects 0.000 description 6
- 231100000135 cytotoxicity Toxicity 0.000 description 6
- 239000012091 fetal bovine serum Substances 0.000 description 6
- 101000610605 Homo sapiens Tumor necrosis factor receptor superfamily member 10A Proteins 0.000 description 5
- 101000610602 Homo sapiens Tumor necrosis factor receptor superfamily member 10C Proteins 0.000 description 5
- 102100040115 Tumor necrosis factor receptor superfamily member 10C Human genes 0.000 description 5
- 230000000259 anti-tumor effect Effects 0.000 description 5
- 230000001640 apoptogenic effect Effects 0.000 description 5
- 201000011510 cancer Diseases 0.000 description 5
- 230000003833 cell viability Effects 0.000 description 5
- 229940127089 cytotoxic agent Drugs 0.000 description 5
- XXUPLYBCNPLTIW-UHFFFAOYSA-N octadec-7-ynoic acid Chemical compound CCCCCCCCCCC#CCCCCCC(O)=O XXUPLYBCNPLTIW-UHFFFAOYSA-N 0.000 description 5
- 102100040113 Tumor necrosis factor receptor superfamily member 10A Human genes 0.000 description 4
- 150000001413 amino acids Chemical class 0.000 description 4
- 238000013459 approach Methods 0.000 description 4
- 229940044683 chemotherapy drug Drugs 0.000 description 4
- 230000001419 dependent effect Effects 0.000 description 4
- 210000002889 endothelial cell Anatomy 0.000 description 4
- 210000002950 fibroblast Anatomy 0.000 description 4
- 238000000684 flow cytometry Methods 0.000 description 4
- MHMNJMPURVTYEJ-UHFFFAOYSA-N fluorescein-5-isothiocyanate Chemical compound O1C(=O)C2=CC(N=C=S)=CC=C2C21C1=CC=C(O)C=C1OC1=CC(O)=CC=C21 MHMNJMPURVTYEJ-UHFFFAOYSA-N 0.000 description 4
- 230000007246 mechanism Effects 0.000 description 4
- 230000035945 sensitivity Effects 0.000 description 4
- IAZDPXIOMUYVGZ-UHFFFAOYSA-N Dimethylsulphoxide Chemical compound CS(C)=O IAZDPXIOMUYVGZ-UHFFFAOYSA-N 0.000 description 3
- 239000006144 Dulbecco’s modified Eagle's medium Substances 0.000 description 3
- 101000830565 Homo sapiens Tumor necrosis factor ligand superfamily member 10 Proteins 0.000 description 3
- 108060008682 Tumor Necrosis Factor Proteins 0.000 description 3
- 238000004458 analytical method Methods 0.000 description 3
- 210000003953 foreskin Anatomy 0.000 description 3
- 238000011534 incubation Methods 0.000 description 3
- 230000003993 interaction Effects 0.000 description 3
- 230000003211 malignant effect Effects 0.000 description 3
- 230000009826 neoplastic cell growth Effects 0.000 description 3
- 210000001519 tissue Anatomy 0.000 description 3
- 102000003390 tumor necrosis factor Human genes 0.000 description 3
- 206010006187 Breast cancer Diseases 0.000 description 2
- 108050007372 Fibroblast Growth Factor Proteins 0.000 description 2
- 102000018233 Fibroblast Growth Factor Human genes 0.000 description 2
- MHAJPDPJQMAIIY-UHFFFAOYSA-N Hydrogen peroxide Chemical compound OO MHAJPDPJQMAIIY-UHFFFAOYSA-N 0.000 description 2
- ZDXPYRJPNDTMRX-VKHMYHEASA-N L-glutamine Chemical compound OC(=O)[C@@H](N)CCC(N)=O ZDXPYRJPNDTMRX-VKHMYHEASA-N 0.000 description 2
- 206010033128 Ovarian cancer Diseases 0.000 description 2
- 239000012980 RPMI-1640 medium Substances 0.000 description 2
- 101710097160 Tumor necrosis factor ligand superfamily member 10 Proteins 0.000 description 2
- 230000004913 activation Effects 0.000 description 2
- 210000000170 cell membrane Anatomy 0.000 description 2
- 239000006285 cell suspension Substances 0.000 description 2
- 238000002512 chemotherapy Methods 0.000 description 2
- LOKCTEFSRHRXRJ-UHFFFAOYSA-I dipotassium trisodium dihydrogen phosphate hydrogen phosphate dichloride Chemical compound P(=O)(O)(O)[O-].[K+].P(=O)(O)([O-])[O-].[Na+].[Na+].[Cl-].[K+].[Cl-].[Na+] LOKCTEFSRHRXRJ-UHFFFAOYSA-I 0.000 description 2
- 230000002708 enhancing effect Effects 0.000 description 2
- 229940126864 fibroblast growth factor Drugs 0.000 description 2
- 102000044949 human TNFSF10 Human genes 0.000 description 2
- 210000005260 human cell Anatomy 0.000 description 2
- 230000006882 induction of apoptosis Effects 0.000 description 2
- 230000005764 inhibitory process Effects 0.000 description 2
- 238000004519 manufacturing process Methods 0.000 description 2
- 102000006240 membrane receptors Human genes 0.000 description 2
- 108020004084 membrane receptors Proteins 0.000 description 2
- 210000001616 monocyte Anatomy 0.000 description 2
- 231100000252 nontoxic Toxicity 0.000 description 2
- 230000003000 nontoxic effect Effects 0.000 description 2
- 238000011275 oncology therapy Methods 0.000 description 2
- 239000002953 phosphate buffered saline Substances 0.000 description 2
- XJMOSONTPMZWPB-UHFFFAOYSA-M propidium iodide Chemical compound [I-].[I-].C12=CC(N)=CC=C2C2=CC=C(N)C=C2[N+](CCC[N+](C)(CC)CC)=C1C1=CC=CC=C1 XJMOSONTPMZWPB-UHFFFAOYSA-M 0.000 description 2
- 239000000243 solution Substances 0.000 description 2
- UCSJYZPVAKXKNQ-HZYVHMACSA-N streptomycin Chemical compound CN[C@H]1[C@H](O)[C@@H](O)[C@H](CO)O[C@H]1O[C@@H]1[C@](C=O)(O)[C@H](C)O[C@H]1O[C@@H]1[C@@H](NC(N)=N)[C@H](O)[C@@H](NC(N)=N)[C@H](O)[C@H]1O UCSJYZPVAKXKNQ-HZYVHMACSA-N 0.000 description 2
- 231100000331 toxic Toxicity 0.000 description 2
- 230000002588 toxic effect Effects 0.000 description 2
- 231100000419 toxicity Toxicity 0.000 description 2
- 230000001988 toxicity Effects 0.000 description 2
- 210000003606 umbilical vein Anatomy 0.000 description 2
- PRDFBSVERLRRMY-UHFFFAOYSA-N 2'-(4-ethoxyphenyl)-5-(4-methylpiperazin-1-yl)-2,5'-bibenzimidazole Chemical compound C1=CC(OCC)=CC=C1C1=NC2=CC=C(C=3NC4=CC(=CC=C4N=3)N3CCN(C)CC3)C=C2N1 PRDFBSVERLRRMY-UHFFFAOYSA-N 0.000 description 1
- 208000010507 Adenocarcinoma of Lung Diseases 0.000 description 1
- 208000036832 Adenocarcinoma of ovary Diseases 0.000 description 1
- -1 Apo2L Proteins 0.000 description 1
- 208000023275 Autoimmune disease Diseases 0.000 description 1
- 208000026310 Breast neoplasm Diseases 0.000 description 1
- 206010009944 Colon cancer Diseases 0.000 description 1
- 208000001333 Colorectal Neoplasms Diseases 0.000 description 1
- 239000006145 Eagle's minimal essential medium Substances 0.000 description 1
- 101000976075 Homo sapiens Insulin Proteins 0.000 description 1
- 101000808011 Homo sapiens Vascular endothelial growth factor A Proteins 0.000 description 1
- 229930182816 L-glutamine Natural products 0.000 description 1
- 102000043136 MAP kinase family Human genes 0.000 description 1
- 108091054455 MAP kinase family Proteins 0.000 description 1
- 108010054862 Member 10c Tumor Necrosis Factor Receptors Proteins 0.000 description 1
- 102000001780 Member 10c Tumor Necrosis Factor Receptors Human genes 0.000 description 1
- 102000005741 Metalloproteases Human genes 0.000 description 1
- 108010006035 Metalloproteases Proteins 0.000 description 1
- 241000699670 Mus sp. Species 0.000 description 1
- 125000001429 N-terminal alpha-amino-acid group Chemical group 0.000 description 1
- 102000003945 NF-kappa B Human genes 0.000 description 1
- 108010057466 NF-kappa B Proteins 0.000 description 1
- 206010029260 Neuroblastoma Diseases 0.000 description 1
- 206010061328 Ovarian epithelial cancer Diseases 0.000 description 1
- 206010061535 Ovarian neoplasm Diseases 0.000 description 1
- 229930182555 Penicillin Natural products 0.000 description 1
- JGSARLDLIJGVTE-MBNYWOFBSA-N Penicillin G Chemical compound N([C@H]1[C@H]2SC([C@@H](N2C1=O)C(O)=O)(C)C)C(=O)CC1=CC=CC=C1 JGSARLDLIJGVTE-MBNYWOFBSA-N 0.000 description 1
- 208000006664 Precursor Cell Lymphoblastic Leukemia-Lymphoma Diseases 0.000 description 1
- 206010060862 Prostate cancer Diseases 0.000 description 1
- 102000004245 Proteasome Endopeptidase Complex Human genes 0.000 description 1
- 108090000708 Proteasome Endopeptidase Complex Proteins 0.000 description 1
- 102000014128 RANK Ligand Human genes 0.000 description 1
- 108010025832 RANK Ligand Proteins 0.000 description 1
- 206010070834 Sensitisation Diseases 0.000 description 1
- 208000000389 T-cell leukemia Diseases 0.000 description 1
- 208000028530 T-cell lymphoblastic leukemia/lymphoma Diseases 0.000 description 1
- 108700012411 TNFSF10 Proteins 0.000 description 1
- 108091008005 TRAIL–DR complexes Proteins 0.000 description 1
- 108091005956 Type II transmembrane proteins Proteins 0.000 description 1
- 108010073929 Vascular Endothelial Growth Factor A Proteins 0.000 description 1
- 102000005789 Vascular Endothelial Growth Factors Human genes 0.000 description 1
- 108010019530 Vascular Endothelial Growth Factors Proteins 0.000 description 1
- 239000000853 adhesive Substances 0.000 description 1
- 230000001070 adhesive effect Effects 0.000 description 1
- 239000000556 agonist Substances 0.000 description 1
- 230000001270 agonistic effect Effects 0.000 description 1
- 125000000539 amino acid group Chemical group 0.000 description 1
- 230000002424 anti-apoptotic effect Effects 0.000 description 1
- 230000004888 barrier function Effects 0.000 description 1
- 230000004071 biological effect Effects 0.000 description 1
- 239000012888 bovine serum Substances 0.000 description 1
- 201000008274 breast adenocarcinoma Diseases 0.000 description 1
- 201000008275 breast carcinoma Diseases 0.000 description 1
- 239000000872 buffer Substances 0.000 description 1
- 210000003855 cell nucleus Anatomy 0.000 description 1
- 229960004316 cisplatin Drugs 0.000 description 1
- DQLATGHUWYMOKM-UHFFFAOYSA-L cisplatin Chemical compound N[Pt](N)(Cl)Cl DQLATGHUWYMOKM-UHFFFAOYSA-L 0.000 description 1
- 201000010989 colorectal carcinoma Diseases 0.000 description 1
- 230000002301 combined effect Effects 0.000 description 1
- 239000003431 cross linking reagent Substances 0.000 description 1
- 239000013078 crystal Substances 0.000 description 1
- 230000001472 cytotoxic effect Effects 0.000 description 1
- 230000003247 decreasing effect Effects 0.000 description 1
- 230000005860 defense response to virus Effects 0.000 description 1
- 238000011161 development Methods 0.000 description 1
- 239000012895 dilution Substances 0.000 description 1
- 238000010790 dilution Methods 0.000 description 1
- 239000000975 dye Substances 0.000 description 1
- 238000000799 fluorescence microscopy Methods 0.000 description 1
- 238000001943 fluorescence-activated cell sorting Methods 0.000 description 1
- ZDXPYRJPNDTMRX-UHFFFAOYSA-N glutamine Natural products OC(=O)C(N)CCC(N)=O ZDXPYRJPNDTMRX-UHFFFAOYSA-N 0.000 description 1
- 239000003102 growth factor Substances 0.000 description 1
- 239000001963 growth medium Substances 0.000 description 1
- 206010073071 hepatocellular carcinoma Diseases 0.000 description 1
- 231100000844 hepatocellular carcinoma Toxicity 0.000 description 1
- 102000058223 human VEGFA Human genes 0.000 description 1
- PBGKTOXHQIOBKM-FHFVDXKLSA-N insulin (human) Chemical compound C([C@@H](C(=O)N[C@@H](CC(C)C)C(=O)N[C@H]1CSSC[C@H]2C(=O)N[C@H](C(=O)N[C@@H](CO)C(=O)N[C@H](C(=O)N[C@H](C(N[C@@H](CO)C(=O)N[C@@H](CC(C)C)C(=O)N[C@@H](CC=3C=CC(O)=CC=3)C(=O)N[C@@H](CCC(N)=O)C(=O)N[C@@H](CC(C)C)C(=O)N[C@@H](CCC(O)=O)C(=O)N[C@@H](CC(N)=O)C(=O)N[C@@H](CC=3C=CC(O)=CC=3)C(=O)N[C@@H](CSSC[C@H](NC(=O)[C@H](C(C)C)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](CC=3C=CC(O)=CC=3)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](C)NC(=O)[C@H](CCC(O)=O)NC(=O)[C@H](C(C)C)NC(=O)[C@H](CC(C)C)NC(=O)[C@H](CC=3NC=NC=3)NC(=O)[C@H](CO)NC(=O)CNC1=O)C(=O)NCC(=O)N[C@@H](CCC(O)=O)C(=O)N[C@@H](CCCNC(N)=N)C(=O)NCC(=O)N[C@@H](CC=1C=CC=CC=1)C(=O)N[C@@H](CC=1C=CC=CC=1)C(=O)N[C@@H](CC=1C=CC(O)=CC=1)C(=O)N[C@@H]([C@@H](C)O)C(=O)N1[C@@H](CCC1)C(=O)N[C@@H](CCCCN)C(=O)N[C@@H]([C@@H](C)O)C(O)=O)C(=O)N[C@@H](CC(N)=O)C(O)=O)=O)CSSC[C@@H](C(N2)=O)NC(=O)[C@H](CCC(N)=O)NC(=O)[C@H](CCC(O)=O)NC(=O)[C@H](C(C)C)NC(=O)[C@@H](NC(=O)CN)[C@@H](C)CC)[C@@H](C)CC)[C@@H](C)O)NC(=O)[C@H](CCC(N)=O)NC(=O)[C@H](CC(N)=O)NC(=O)[C@@H](NC(=O)[C@@H](N)CC=1C=CC=CC=1)C(C)C)C1=CN=CN1 PBGKTOXHQIOBKM-FHFVDXKLSA-N 0.000 description 1
- 208000032839 leukemia Diseases 0.000 description 1
- 239000003446 ligand Substances 0.000 description 1
- 201000005249 lung adenocarcinoma Diseases 0.000 description 1
- 208000003747 lymphoid leukemia Diseases 0.000 description 1
- 239000002609 medium Substances 0.000 description 1
- 239000012528 membrane Substances 0.000 description 1
- 239000000178 monomer Substances 0.000 description 1
- VMGAPWLDMVPYIA-HIDZBRGKSA-N n'-amino-n-iminomethanimidamide Chemical compound N\N=C\N=N VMGAPWLDMVPYIA-HIDZBRGKSA-N 0.000 description 1
- 230000003287 optical effect Effects 0.000 description 1
- 208000013371 ovarian adenocarcinoma Diseases 0.000 description 1
- 201000006588 ovary adenocarcinoma Diseases 0.000 description 1
- 229940049954 penicillin Drugs 0.000 description 1
- 230000004962 physiological condition Effects 0.000 description 1
- 230000003389 potentiating effect Effects 0.000 description 1
- 238000012545 processing Methods 0.000 description 1
- 201000001514 prostate carcinoma Diseases 0.000 description 1
- 108700015048 receptor decoy activity proteins Proteins 0.000 description 1
- 230000009467 reduction Effects 0.000 description 1
- 230000001105 regulatory effect Effects 0.000 description 1
- BOLDJAUMGUJJKM-LSDHHAIUSA-N renifolin D Natural products CC(=C)[C@@H]1Cc2c(O)c(O)ccc2[C@H]1CC(=O)c3ccc(O)cc3O BOLDJAUMGUJJKM-LSDHHAIUSA-N 0.000 description 1
- 238000011160 research Methods 0.000 description 1
- 230000008313 sensitization Effects 0.000 description 1
- 230000001235 sensitizing effect Effects 0.000 description 1
- 239000012679 serum free medium Substances 0.000 description 1
- 239000004017 serum-free culture medium Substances 0.000 description 1
- 230000011664 signaling Effects 0.000 description 1
- 239000007787 solid Substances 0.000 description 1
- 229960005322 streptomycin Drugs 0.000 description 1
- 238000006467 substitution reaction Methods 0.000 description 1
- 239000006228 supernatant Substances 0.000 description 1
- 230000001629 suppression Effects 0.000 description 1
- 239000000725 suspension Substances 0.000 description 1
- 230000009044 synergistic interaction Effects 0.000 description 1
- 231100000816 toxic dose Toxicity 0.000 description 1
- 238000011269 treatment regimen Methods 0.000 description 1
- 238000005829 trimerization reaction Methods 0.000 description 1
- 230000003827 upregulation Effects 0.000 description 1
Images
Classifications
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K31/00—Medicinal preparations containing organic active ingredients
- A61K31/70—Carbohydrates; Sugars; Derivatives thereof
- A61K31/7028—Compounds having saccharide radicals attached to non-saccharide compounds by glycosidic linkages
- A61K31/7034—Compounds having saccharide radicals attached to non-saccharide compounds by glycosidic linkages attached to a carbocyclic compound, e.g. phloridzin
- A61K31/704—Compounds having saccharide radicals attached to non-saccharide compounds by glycosidic linkages attached to a carbocyclic compound, e.g. phloridzin attached to a condensed carbocyclic ring system, e.g. sennosides, thiocolchicosides, escin, daunorubicin
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
- A61K38/16—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- A61K38/17—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- A61K38/19—Cytokines; Lymphokines; Interferons
Landscapes
- Pharmaceuticals Containing Other Organic And Inorganic Compounds (AREA)
- Peptides Or Proteins (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
Abstract
Изобретение относится к медицине и может быть использовано для индукции гибели опухолевых клеток в эксперименте. Для этого опухолевые клетки линий НСТ116, Jurkat, U937 подвергают одновременной комбинированной обработке рекомбинантным препаратом DR5-B и бортезомибом в количестве 0,1 нМ. При этом DR5-B используют в концентрации, при которой полумаксимальная эффективная концентрация препарата DR5-B составляет 0,33±0,08 нг/мл для линии клеток НСТ116, 0,06±0,01 нг/мл для линии клеток Jurkat и 0,09±0,02 нг/мл для линии U937. Изобретение обеспечивает преодоление устойчивости опухолевых клеточных линий к TRAIL DR5-B в эксперименте. 1 з.п. ф-лы, 6 ил., 5 табл., 3 пр.
Description
Область техники
Изобретение относится к области клеточной и молекулярной биологии, конкретно к преодолению устойчивости опухолевых линий клеток человека к цитокину TRAIL с помощью DR5-специфического варианта TRAIL человека. Способ может быть использован как перспективная стратегия лечения злокачественных неоплазий и в качестве средства для исследования механизмов устойчивости клеток опухолевых линий различного происхождения к цитокину TRAIL.
Уровень техники
Цитокин TRAIL (TNF-related apoptosis-inducing ligand, Apo2L, TNFSF10) является одним из членов семейства фактора некроза опухоли TNF (tumor necrosis factor). Как и другие члены семейства TNF, TRAIL играет важную роль в наблюдении за опухолями, антивирусном ответе и участвует в подавлении аутоиммунных заболеваний.
Однако главным отличительным свойством TRAIL является то, что этот цитокин способен селективно вызывать апоптоз по внешнему, рецептор-зависимому механизму, в злокачественно трансформированных клетках без проявления цитотоксичности по отношению к нормальным клеткам.
TRAIL проявляет апоптотическую активность в трехмерной форме, мономером данного цитокина является трансмембранный белок II типа, состоящий из 281 аминокислотного остатка. Внеклеточный домен TRAIL (аминокислоты с 114 по 281) в организме человека может быть отщеплен металлопротеазой 7 с сохранением апоптоз-индуцирующей активности.
Рекомбинантные препараты внеклеточного домена TRAIL с нативной вторичной структурой, без аффинных последовательностей и N-концевых аминокислот, индуцируют апоптоз в широком спектре линий опухолевых клеток и первичных опухолях, не вызывая гибели нормальных клеточных линий и первичных тканей. Рекомбинантные препараты TRAIL показали высокую противоопухолевую эффективность в экспериментах на мышах с привитыми человеческими опухолями. Селективность апоптоз-индуцирующей активности подтверждается в клинических исследованиях.
TRAIL имеет 5 рецепторов: мембранные DR4, DR5, DcR1, DcR2 и растворимый остеопротегерин (OPG). Рецепторы DR4 и DR5 (рецепторы смерти, англ. death receptors) способны проводить сигнал апоптоза в опухолевую клетку. Рецепторы DcR1 и DcR2 (так называемые рецепторы-ловушки, англ decoy receptors) конкурируют с рецепторами смерти за связывание с TRAIL либо активируют в клетке антиапоптотические механизмы. Именно взаимодействие TRAIL с рецепторами-ловушками является одной из причин устойчивости опухолевых клеток к цитокину. Остеопротегерин (OPG) является растворимым рецептором-ловушкой TRAIL, активирующим белок NF-kB (RANKL), и способен взаимодействовать с молекулами лиганда в растворе. OPG скорее играет роль в подавлении остеокластогенеза, но не в регуляции TRAIL-опосредованного апоптоза, так как взаимодействие TRAIL-OPG при физиологических условиях достаточно слабо [Almasan A, Ashkenazi A. Apo2L/TRAIL: apoptosis signaling, biology, and potential for cancer therapy // Cytokine Growth Factor Rev. 2005. Vol. 14, pp. 337-348].
Исследования биологической активности TRAIL показали, что примерно половина опухолевых клеточных линий человека и первичных опухолей нечувствительна к TRAIL [Ashkenazi A, Pai RC, Fong S, Leung S, Lawrence DA et al. Safety and antitumor activity of recombinant soluble Apo2 ligand // J. Clin. Invest. 1999. Vol. 104, pp. 155-162]. К сегодняшнему дню разработано множество способов преодоления устойчивости опухолевых линий к рекомбинантным препаратам TRAIL дикого типа за счет комбинированной обработки клеточных линий препаратами TRAIL и химиотерапевтическими реагентами [Sayers TJ, Murphy WJ. Combining proteasome inhibition with TNF-related apoptosis-inducing ligand (Apo2L/TRAIL) for cancer therapy // Cancer Immunol. Immunother. 2006. Vol. 55, pp. 76-84., Shenoy K, Wu Y, Pervaiz S. LY303511 enhances TRAIL sensitivity of SHEP-1 neuroblastoma cells via hydrogen peroxide-mediated mitogen-activated protein kinase activation and up-regulation of death receptors // Cancer Res. 2009. Vol. 69, pp. 1941-1950 и др.]. Однако дикий тип TRAIL связывается и с рецепторами смерти, и с рецепторами-ловушками с примерно одинаковой аффинностью, что может снизить эффективность индукции апоптоза цитокином.
Ранее было показано, что апоптоз-индуцирующий сигнал во многих опухолевых клетках проводится в основном за счет взаимодействия TRAIL преимущественно с одним из рецепторов смерти. В большинстве типов опухолей, особенно солидных, проведение апоптотического сигнала осуществляется в основном при взаимодействии TRAIL с рецептором смерти DR5. В связи с этим, для преодоления устойчивости клеточных линий к TRAIL, наибольший интерес представляет увеличение специфичности TRAIL по отношению к рецептору DR5.
Были разработаны несколько агонистических антител к рецептору DR5 и рекомбинантных мутантных вариантов TRAIL, с повышенной специфичностью к DR5 рецептору. Однако агонистические антитела к рецептору DR5 имеют ряд существенных недостатков: отсутствие тримеризации, необходимость использования дополнительных сшивающих агентов для проявления апоптотической активности и большая себестоимость наработки. Поэтому использование DR5-специфических мутантных вариантов имеет большую перспективу в качестве стратегии для преодоления устойчивости опухолевых клеток к TRAIL.
К сегодняшнему дню получено несколько DR5-специфических мутантных вариантов TRAIL: DR5-8, D269H, rhTRAIL-DR5, DR5-A и DR5-B. Аминокислотные замены в них приведены в таблице 1.
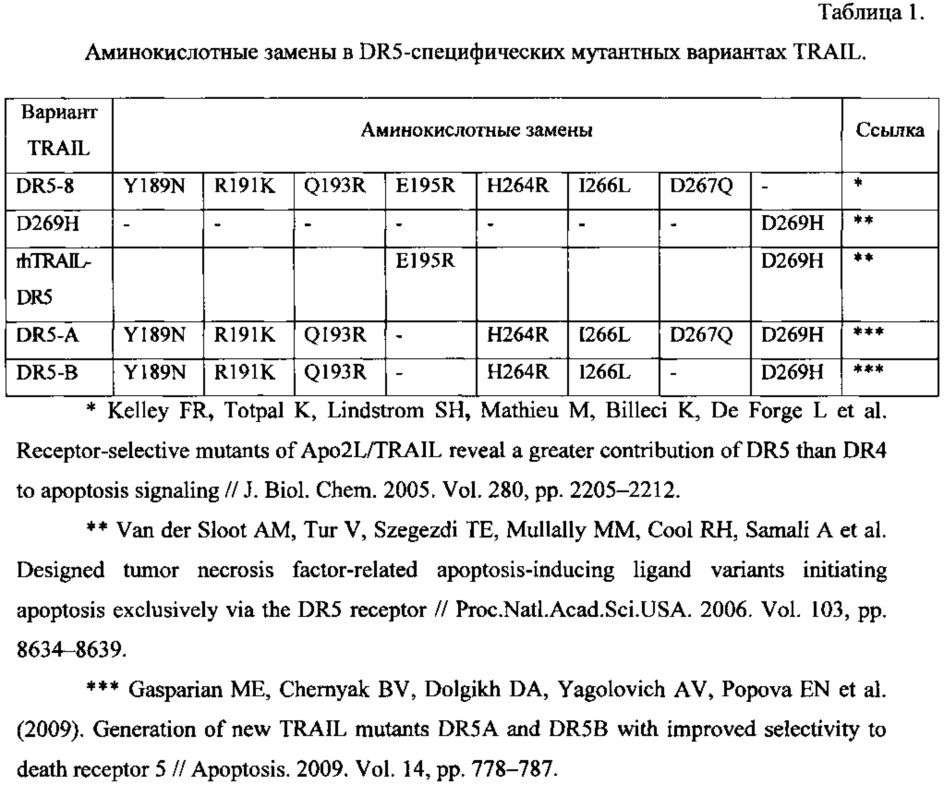
Для рецептор-селективного варианта TRAIL rhTRAIL-DR5 также предложена стратегия усиления апоптоз-индуцирующей активности в клетках карциномы яичника с помощью микромолярных концентраций цисплатина [Duiker EW, de Vries EG, Mahalingam D, Meersma GJ, Boersma-van Ek W et al. Enhanced antitumor efficacy of a DR5-specific TRAIL variant over recombinant human TRAIL in a bioluminescent ovarian cancer xenograft model // Clin. Cancer Res. 2009. Vol. 15, pp. 2048-2057]. Но все существующие на данный момент DR5-селективные варианты TRAIL, кроме DR5-B, взаимодействуют либо с рецептором DR4 (D269H), либо с DcR2 (DR5-8), причем аффинность этих вариантов TRAIL к рецепторам, хоть и снижена в разы, но довольно высока (см. таблицу 2 из Gasparian ME, Chernyak BV, Dolgikh DA, Yagolovich AV, Popova EN et al. (2009). Generation of new TRAIL mutants DR5A and DR5B with improved selectivity to death receptor 5 // Apoptosis. 2009. Vol. 14, pp. 778-787).
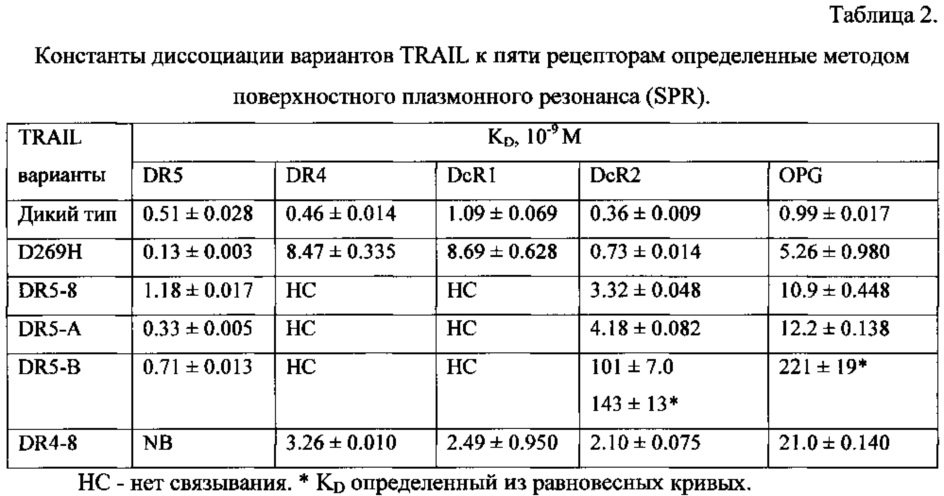
DR5-специфический мутантный вариант TRAIL DR5-B уникален тем, что не связывается с рецептором смерти DR4 и рецептором-ловушкой DcR1 и тем, что его аффинность к рецепторам DcR2 и OPG снижена по сравнению с таковой у других вариантов TRAIL не в разы, а более чем в 280 и 223 раза соответственно (см. таблицу 2). Ранее был запатентован способ получения рекомбинантного препарата DR5-специфического мутантного варианта цитокина TRAIL DR5-B [патент RU №2405038 от 27.11.2010 г.].
Было показано, что DR5-B обладает большей активностью, чем TRAIL дикого типа на DR5-зависимой TRAIL-чувствительной линии Т-клеточной лейкемии Jurkat. Кроме того, противоопухолевая активность рекомбинантного препарата DR5-B на TRAIL-устойчивых линиях клеток HeLa и U937 была также хорошо выражена. Чувствительность клеток к DR5-B могла быть увеличена при одновременной обработке клеток химиотерапевтическими реагентами. Более того, показано, что многие химиотерапевтические агенты вызывают увеличение экспрессии рецептора смерти DR5 на поверхности опухолевых клеток. Таким образом, DR5-B может быть использован при преодолении устойчивости к TRAIL не только DR5, но и изначально DR4-чувствительных клеток.
Наиболее близким к заявляемому является способ обработки опухолевых клеток линий Jurkat, НСТ116, А549, U937, НТ29 и MCF-7 препаратом DR5-B и химиотерапевтическими реагентами доксорубицином, паклитакселом и бортезомибом в количестве 1-100 нМ для преодоления устойчивости опухолевых клеток к цитокину TRAIL дикого типа (BYCHKOV М. Et al., 2013).
Однако остается актуальным поиск эффективных количеств химиотерапевтических препаратов, использующихся для индукции гибели опухолевых клеток, которые при сохранении противоопухолевой активности оказывали бы минимальное токсическое действие на нормальные ткани организма.
Раскрытие изобретения
Заявленное изобретение решает задачу индукции гибели опухолевых клеток, а именно к способу преодоления резистентности опухолевых клеток к цитокину TRAIL дикого типа за счет комбинирования двух подходов: индукции в опухолевых клетках апоптоза при активации DR5 рецептора с помощью рекомбинантного препарата DR5-B, и усиления апоптотической активности рекомбинантного препарата DR5-B с помощью химиотерапевтических реагентов.
Задача преодоления резистентности опухолевых линий к TRAIL решается за счет индукции DR5-опосредованного апоптоза при одновременной комбинированной обработке опухолевых клеток линий НСТ116, Jurkat, U937 в эксперименте рекомбинантным препаратом DR5-B и бортезомибом в количестве 0,1 нМ.
Предпочтительно использовать DR5-B в концентрации, при которой полумаксимальная эффективная концентрация препарата DR5-B составляет 0,33±0,08 нг/мл для линии клеток НСТ116, 0,06±0,01 нг/мл для линии клеток Jurkat и 0,09±0,02 нг/мл для линии U937.
Изобретение тестировалось на 12 линиях опухолевых клеток: аденокарциномы легкого А549, Т-лимфобластной лейкемии Jurkat, гепатоклеточной карциномы HepG2, колоректальных карцином НТ29 и НСТ116, аденокарцином молочной железы MCF-7, MDA-MB-231 и SKBR-3, моноцитарной лейкемии U937, глиобластомы U251 MG, карциномы простаты Du145, а также аденокарциномы яичника SKOV3. Токсичность рекомбинантного препарата DR5-B проверяли на клетках эндотелия пупочной вены человека (HUVEC) и фибробластах крайней плоти (HFF). Клетки А549, Du145, НСТ116, MDA-MB-231, U251 MG, культивировали в питательной среде DMEM с добавлением 10% (по объему) эмбриональной бычьей сыворотки и 2 мМ глутамина. Клетки SKBR-3 и SKOV3 культивировали в среде McCoy 5А с добавлением 10% (по объему) эмбриональной бычьей сыворотки. Опухолевые линии Jurkat, HepG2, НТ29 и U937 культивировали в среде RPMI1640 с добавлением 5% эмбриональной бычьей сыворотки. Для культивации клеток HepG2 к среде RPMI1640 добавляли аминокислоты. Линию карциномы молочной железы MCF-7 культивировали в среде ЕМЕМ с добавлением 10 мкг/мл рекомбинантного человеческого инсулина и 10% (по объему) эмбриональной бычьей сыворотки. Нормальные фибробласты крайней плоти (HFF) культивировали в среде DMEM с добавлением 10% (по объему) эмбриональной бычьей сыворотки. Клетки эндотелия HUVEC культивировали в среде DMEM/F12 с добавлением 15% эмбриональной бычьей сыворотки, 5 нг/мл рекомбинантного основного фактора роста фибробластов (FGF-2) человека, 20 нг/мл рекомбинантного фактора роста эндотелия сосудов (VEGF) человека, 1% аминокислот, 2 мМ L-глутамина, 50 ЕД/мл пенициллина и 50 нг/мл стрептомицина. Все клеточные линии культивировали в культуральных флаконах объемом 75 мл3 (для суспензионных линий клеток Jurkat и U937 использовали необработанные флаконы, для адгезионных клеточных линий - обработанные культуральные флаконы).
Уровень экспрессии рецепторов TRAIL на поверхности опухолевых клеточных линий определяли с помощью проточной цитофлуориметрии. Клетки снимались с культуральных флаконов с помощью 0,05% раствора трипсина-ЭДТА, после чего дважды промывались холодным фосфатно-солевым буфером (ФСБ) и перемешивались. Затем клетки разливали по 5-мл пробиркам (35×103 клеток на одну пробу). К суспензии клеток добавляли FITC-конъюгированные антитела к рецепторам TRAIL - DR4, DR5, DcR1 и DcR2 или антитела изотипического контроля и инкубировали в течение 1 ч при +4°С. Несвязавшиеся антитела дважды отмывали холодным ФСБ, и клетки переносили в FACS-буфер (ФСБ с добавлением 1 мкМ иодида пропидия). Пробы анализировали на проточном цитофлуориметре FACScan («Beckton Dickinson», США). Для анализа полученных данных использовали программу WinMDI 2.9.
Определяли жизнеспособность клеток с помощью МТТ-теста. За 24 часа до определения жизнеспособности адгезионные клетки адсорбировали в лунки 96 луночного обработанного культурального планшета из расчета 104 клеток на лунку. Затем, клетки отмывали от среды и к ним добавляли разведения рекомбинантных препаратов TRAIL либо DR5-B, а также химиотерапевтических реагентов в соответствующей культуральной среде без содержания эмбриональной бычьей сыворотки. После этого, клетки инкубировали в течение 24 ч. Суспензионные клетки U937 и Jurkat осаждали при 900 об/мин в течение 5 мин, суспендировали в среде без сыворотки и наносили на необработанный культуральный планшет в расчете 5×10⁴ клеток на лунку. К клеткам добавляли препараты TRAIL и химиопрепараты, разбавленные в питательной среде без сыворотки. Спустя 24 ч к клеткам добавляли МТТ (конечная концентрация составляет 0,5 мг/мл) и инкубировали в течение 4 ч. После инкубации, содержимое планшетов осаждали в течение 5 мин при 3000 об/мин. Супернатанты удаляли и растворяли образовавшиеся при восстановлении МТТ кристаллы формазана в ДМСО. Жизнеспособность клеток определяли по оптической плотности содержимого лунок, которую детектировали с помощью планшетного спектрофотометра Bio-Rad 680 («Bio-Rad», США) при длине волны 540 нм с вычитанием фона при 655 нм. Апоптотический характер гибели клеток подтверждали по изучению морфологии клеточных ядер при окрашивании красителями Хехст 33342 и иодидом пропидия. Флуоресцентная микроскопия проводилась с помощью микроскопа Nikon Eclipse T100f.
Статистическая обработка данных проводилась с помощью программы Microsoft Office Excel 2013. Все эксперименты повторяли не менее трех раз. Полумаксимальные эффективные концентрации (ЭК50) препаратов TRAIL и DR5-B рассчитывали с помощью программы GraphPad Prism 6.
Техническим результатом заявленного изобретения является разработка нового способа индукции гибели опухолевых клеток. Способ сочетает в себе два подхода: индукцию в опухолевых клетках DR5-опосредованного апоптоза с помощью DR5-специфического мутантного варианта цитокина TRAIL, и увеличение апоптоз-индуцирующей активности DR5-B с помощью химиотерапевтических реагентов. Первый подход позволяет преодолеть устойчивость DR5-зависимых опухолевых линий к TRAIL, а второй подход способствует сенсибилизации DR4-зависимых клеток к DR5-опосредованному апоптозу. Данный способ может быть использован для преодоления устойчивости опухолевых клеточных линий к TRAIL в клеточных и преклинических моделях, а также для изучения механизмов устойчивости клеток к TRAIL.
Способ может быть использован как перспективная стратегия лечения злокачественных неоплазий. Перспективность способа заключается в том, что позволяет использовать указанные химиотерапевтические реагенты в сниженных дозировках, что, в свою очередь, приводит к снижению их токсического действия на нормальные клетки и ткани организма и синергическому взаимодействию препаратов при индукции гибели клеток злокачественных неоплазий. В перспективе - для создания комбинированного препарата. Концентрации рекомбинантного препарата DR5-специфического варианта TRAIL DR5-B и химиотерапевтического реагента подбираются в зависимости от типа опухоли, и их соотношение может варьировать в зависимости от чувствительности клеток к препаратам.
Краткое описание чертежей
Изобретение иллюстрируют рисунки:
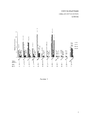
Рисунок 1. Экспрессия рецепторов смерти и ловушек TRAIL на поверхности опухолевых клеток. Клетки инкубировали с FITC-конъюгированными антителами к мембранным рецепторам TRAIL и уровень экспрессии рецепторов определяли с помощью проточной цитофлуориметрии. Значения представлены как средние ± среднеквадратичное отклонение (n=3).
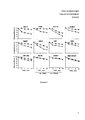
Рисунок 2. Цитотоксичность TRAIL и DR5-B на различных опухолевых клетках. Клетки инкубировали с TRAIL или DR5-B в течение 24 часов и жизнеспособность определяли с помощью МТТ теста. Значения представлены как средние ± среднеквадратичное отклонение (n=3).
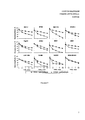
Рисунок 3. Эффект доксорубицина на TRAIL или DR5-B опосредованную гибель опухолевых клеток. Клетки инкубировали в течение 24 часов с указанными количествами TRAIL или DR5-B и доксорубицином (Jurkat - 0,1 нМ, U937 - 1 нМ, MCF-7, НТ29, НСТ116, SKBR-3, А549 и MDA-MB-231 - 100 нМ, Du145 и SKOV3 - 500 нМ, HepG2 - 1 μM и U251 MG - 2 μМ) и жизнеспособность клеток оценивали с помощью МТТ теста. Значения представлены как средние ± среднеквадратичное отклонение (n=3).
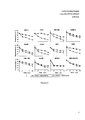
Рисунок 4. Влияние паклитаксела на TRAIL или DR5-B индуцируемый гибель клеток. Указанные раковые клетки инкубировали с указанными количествами вариантов TRAIL и паклитакселом (Jurkat - 0,1 нМ, U937 - 1 нМ, НСТ116 - 5 нМ, НТ29, SKBR-3 и SKOV3 - 10 нМ, MDA-MB-231 - 50 нМ, MCF-7 и А549 - 100 нМ, Du145 - 500 нМ, HepG2 - 1 μM и U251 MG - 10 μМ) в течение 24 часов и жизнеспособность клеток определяли при помощи МТТ-теста. Значения представлены как средние ± среднеквадратичное отклонение, (n=3).
Рисунок 5. Влияние бортезомиба на TRAIL или DR5-B индуцированную гибель опухолевых клеток. Клетки инкубировали в течение 24 часов с TRAIL или DR5-B и бортезомибом (НСТ116, Jurkat, U937 - 0,1 нМ, MDA-MB-231 - 25 нМ, SKBR-3, А549 и Du145 - 50 нМ, MCF-7, НТ29 и SKOV3 - 100 нМ, HepG2 и U251 MG - 500 нМ) и жизнеспособность клеток определяли с помощью МТТ. Значения представлены как средние ± среднеквадратичное отклонение (n=3).
Рисунок 6. DR5-B не проявляет цитотоксическую активность к нормальным клеткам человека. (А) Анализ экспрессии мембранных рецепторов цитокина TRAIL на поверхности фибробластов крайней плоти человека (HFF) и клеток эндотелия пупочной вены человека (HUVEC). Влияние препаратов TRAIL и DR5-B на жизнеспособность HFF (Б) и HUVEC (В). Клетки инкубировали с различными концентрациями препаратов TRAIL и DR5-B в течение 24 ч и их жизнеспособность определяли с помощью МТТ теста. Значения представлены как средние ± среднеквадратичное отклонение (n=3).
Осуществление изобретения
Изобретение иллюстрируют примеры:
Пример 1. Рекомбинантный препарат DR5-B проявляет большую цитотоксичность по сравнению с рекомбинантным препаратом TRAIL дикого на клетках с различным уровнем экспрессии рецепторов TRAIL.
Уровень экспрессии рецепторов TRAIL на поверхности опухолевых клеток Jurkat, U937, MCF-7, НТ29, НСТ116, SKBR-3, А549 и MDA-MB-231, Du145, SKOV3, HepG2 и U251 MG исследовали с помощью метода проточной цитофлуориметрии. Клетки ингибирования с антителами к рецепторам TRAIL, мечеными FITC, либо с антителами изотипического контроля и экспрессия рецепторов на клеточной мембране определялась с помощью цитометра FACScan (рис. 1).
Клеточные линии экспрессируют различное количество рецепторов TRAIL, однако прямой корреляции между чувствительностью раковых клеток к TRAIL и количеством рецепторов смерти не было зафиксировано. Во всех исследованных линиях клеток уровень экспрессии рецепторов ловушек был сравнительно невелик по сравнению с рецепторами смерти (2-11% DcR1 и 6-19% DcR2 от совокупной экспрессии рецепторов). Исключение составили клетки А549 (DcR2 30%) и MDA-MB-231 (DcR1 35,5%), в которых количество рецепторов ловушек было достаточно высоко (рис. 1).
Далее анализировали влияние различных концентраций рекомбинантных препаратов TRAIL и DR5-B на жизнеспособность клеточных линий Jurkat, U937, MCF-7, НТ29, НСТ116, SKBR-3, А549 и MDA-MB-231, Du145, SKOV3, HepG2 и U251 MG (рис. 2). Клетки опухолевых линий инкубировали с препаратами TRAIL в течение 24 часов и определяли их жизнеспособность с помощью МТТ-теста. Анализ результатов исследований показал, что:
1. Половина из 12 проанализированных линий нечувствительны к TRAIL дикого типа (гибель клеток менее 20%).
2. На девяти из двенадцати линий (MCF-7, НТ29, НСТ116, HepG2, Jurkat, U937, А549, SKBR-3 и U251 MG) препарат DR5-B вызывал гибель клеток более эффективно по сравнению с TRAIL дикого типа (рис. 2, табл. 3).
3. Цитотоксичность препаратов TRAIL и DR5-B на трех линиях клеток, в основном (но не полностью) проводящих сигнал к апоптозу через DR4 рецептор (Du145, SKOV3 и MDA-MB-231), практически не отличалась.
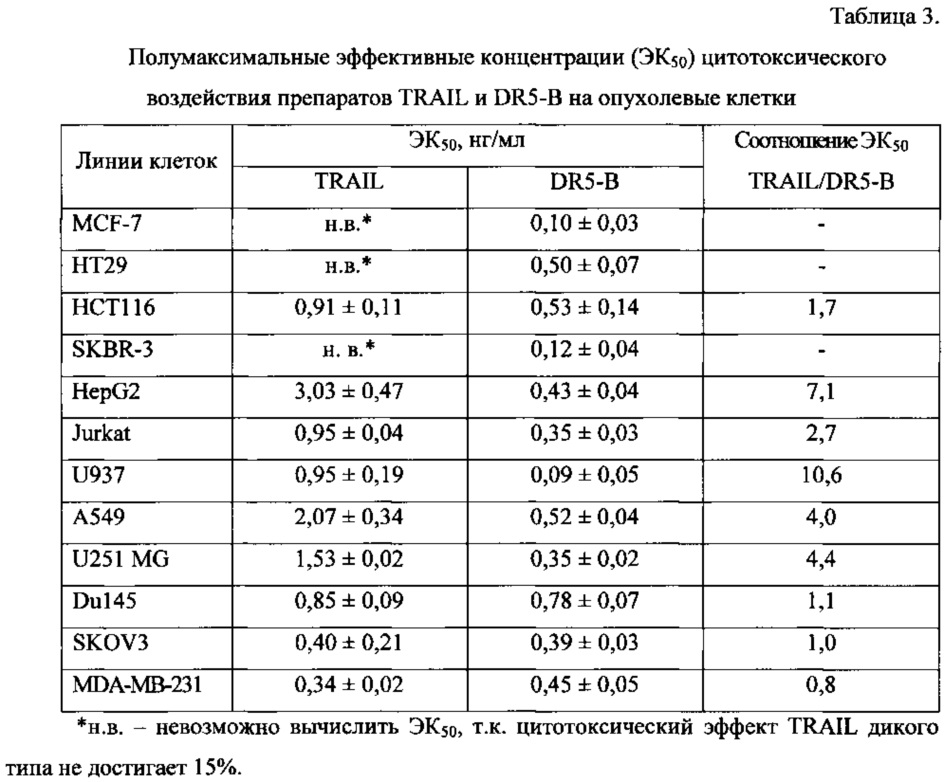
Результаты примера показывают, что рекомбинантный препарат DR5-B превосходит препарат цитокина дикого типа в эффективности индукции апоптоза.
Пример 2. Химиопрепараты доксорубицин, таксол и бортезомиб в большей мере усиливают DR5-B опосредованный апоптоз, по сравнению с TRAIL-индуцированным.
Анализ влияния на жизнеспособность клеточных линий Jurkat, U937, MCF-7, НТ29, НСТ116, SKBR-3, А549 и MDA-MB-231, Du145, SKOV3, HepG2 и U251 MG комбинированного воздействия рекомбинантных препаратов TRAIL и DR5-B и химиотерапевтических реагентов доксорубицина, бортезомиба и таксола проходил по следующей схеме. Подбор концентраций химиопрепаратов для совместной инкубации осуществлялся исходя из их цитотоксичности на клетки. Гибель клеток под действием химиопрепаратов не превышала 30% клеток. После подбора концентраций клетки инкубировали с доксорубицином (рис. 3), паклитакселом (рис. 4) и бортезомибом (рис. 5) в течение 24 часов, после чего их жизнеспособность определялась с помощью МТТ-теста.
Результаты показали, что доксорубицин, паклитаксел и бортезомиб усиливают как TRAIL, так и DR5-B индуцированную гибель клеток, но для большинства клеток этот эффект был более сильно выражен для DR5-B (рис. 3-5). При совместном воздействии химиопрепаратов с DR5-B гибель клеток всех линий превышает 60%, тогда как в случае TRAIL менее половины комбинаций (16 из 36) показали такой результат (табл. 4).
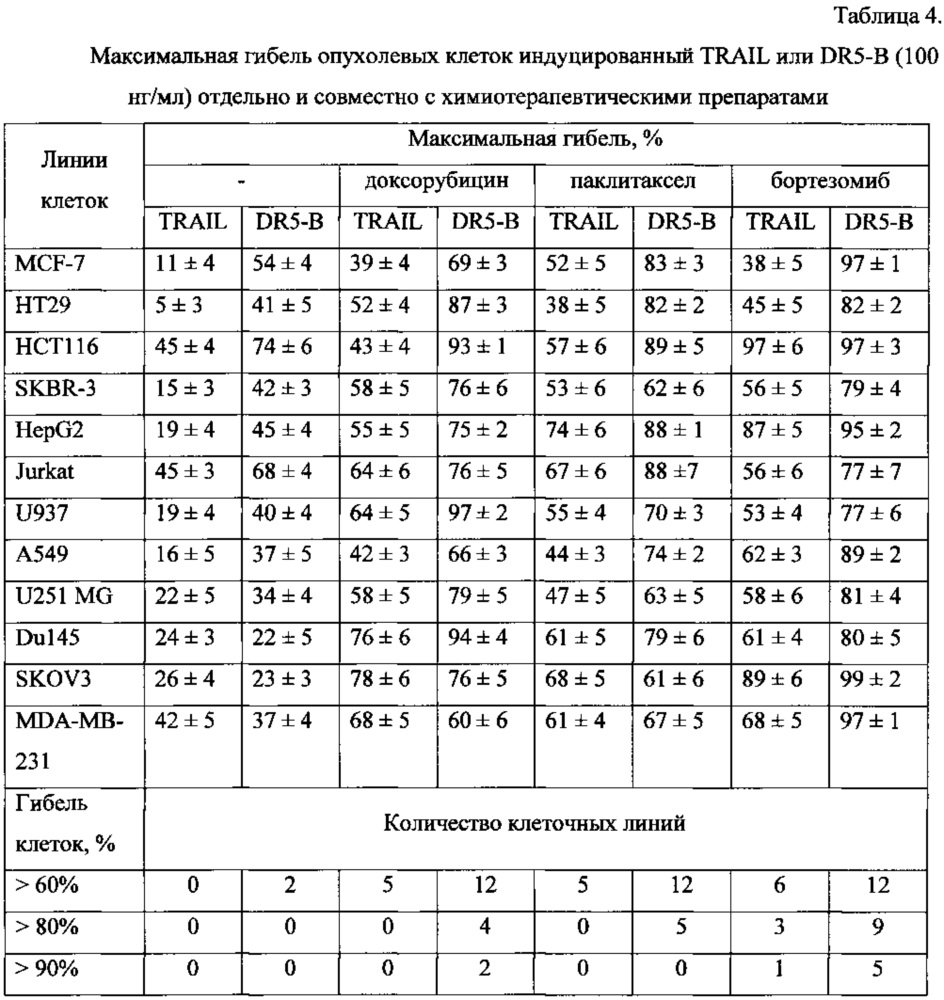
При совместном воздействии доксорубицина или паклитаксела с TRAIL, ни в одной линии не наблюдалась гибель более 80% клеток, тогда как в случае с DR5-B этот барьер преодолевается в пяти линиях. Из трех протестированных химиопрепаратов бортезомиб наиболее эффективно усиливает гибель клеток, вызванную обоими препаратами TRAIL, однако этот сенсибилизирующий эффект сильнее выражается с DR5-В. Так, DR5-B совместно с бортезомибом вызывает гибель свыше 70% клеток во всех клеточных линиях, а для TRAIL-чувствительных линий НСТ116 и MDA-MB-231, равно как и для TRAIL-устойчивых линий клеток MCF-7, HepG2 и SKOV3 наблюдалась гибель более 90% клеток. В то же время TRAIL дикого типа совместно с бортезомибом вызывала гибель 70% клеток только в трех линиях, а на 90% погибли только TRAIL-чувствительные клетки линии НСТ116 (табл. 4).
Полумаксимальные эффективные концентрации (ЭК50) препарата DR5-B на девяти клеточных линиях примерно в 2 -10 раз ниже по сравнению с TRAIL (табл. 3).
Все три протестированные химиопрепарата (доксорубицин, паклитаксел и бортезомиб) значительно снизили значения ЭК50 обоих форм TRAIL (табл. 5), но DR5-B при совместном применении с химиопрепаратами остается в 1,5-10 раз эффективнее, чем TRAIL для большинства клеточных линий. ЭК50 для DR5-B совместно с доксорубицином и паклитакселом составляла менее 0,35 нг/мл и 0,25 нг/мл соответственно для всех клеточных линий. Такие значения ЭК50 для TRAIL дикого типа достигались лишь на четырех линиях с доксорубицином и на шести линиях с паклитакселом. Эффективнее всего цитотоксичность обоих форм TRAIL усиливает бортезомиб. При совместной инкубации с бортезомибом значения ЭК50 для DR5-B снижались несколько раз (менее 0,1 нг/мл у десяти линий), тогда как для TRAIL дикого типа это происходило лишь на линии SKOV3.
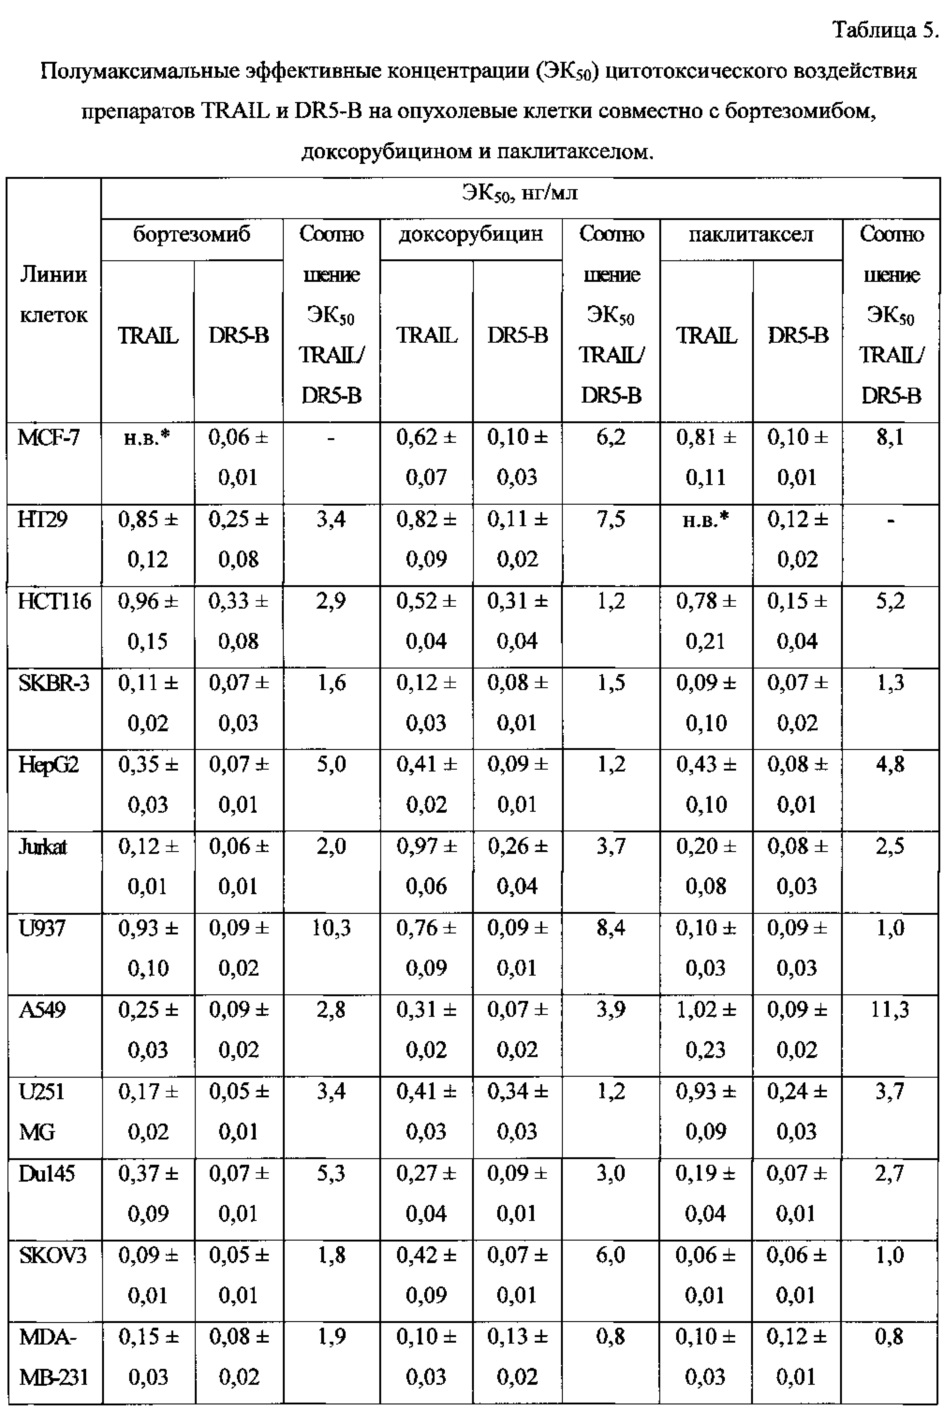
Результаты показывают, что доксорубицин, таксол и бортезомиб в большей мере усиливают DR5-B индуцированную гибель клеток, чем с TRAIL-индуцированный апоптоз.
Пример 3. Рекомбинантный препарат DR5-B не проявляет токсичность по отношению к нормальным клеткам.
Уровень экспрессии рецепторов TRAIL на поверхности клеток эндотелия HUVEC и фибробластов крайней плоти человека HFF исследовали с помощью метода проточной цитофлуориметрии. Клетки инкубировали с антителами к рецепторам TRAIL, мечеными FITC, либо с антителами изотипического контроля и экспрессия рецепторов на клеточной мембране определяли с помощью цитометра FACScan (рис. 6 (А)). Результаты исследования показали, что нормальные клетки, в отличие от опухолевых, экспрессируют меньшие количества как рецепторов смерти TRAIL, так и рецепторов-ловушек цитокина.
Влияние препаратов TRAIL и DR5-B на жизнеспособность HFF и HUVEC анализировали с помощью МТТ-теста после 24-часовой инкубации клеток с рекомбинантными препаратами TRAIL дикого типа и DR5-B (рис. 6 (Б) и (В)). Клетки инкубировали с различными концентрациями препаратов TRAIL и DR5-B в течение 24 ч и их жизнеспособность определяли с помощью МТТ теста. Результаты исследования показали, что рекомбинантные препараты TRAIL и его DR5-специфического мутантного варианта DR5-B являются нетоксичными для нормальных клеток в концентрациях до 10 мкг/мл, что в 100 раз превышает максимальную токсическую концентрацию препаратов на 12 опухолевых линиях клеток различной природы.
Пример 3 показывает, что рекомбинантный препарат DR5-специфического варианта TRAIL DR5-B является нетоксичным по отношению к нормальным клеткам и может быть изучен в преклинических моделях как селективное и высокоактивное противоопухолевое средство.
Claims (2)
1. Способ индукции гибели опухолевых клеток линий НСТ116, Jurkat, U937 в эксперименте, заключающийся в одновременной комбинированной обработке опухолевых клеток рекомбинантным препаратом DR5-B и бортезомибом в количестве 0,1 нМ.
2. Способ по п. 1, заключающийся в том, что DR5-B используют в концентрации, при которой полумаксимальная эффективная концентрация препарата DR5-B составляет 0,33±0,08 нг/мл для линии клеток НСТ116, 0,06±0,01 нг/мл для линии клеток Jurkat и 0,09±0,02 нг/мл для линии U937.
Priority Applications (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| RU2015136918A RU2620165C2 (ru) | 2015-08-31 | 2015-08-31 | Способ индукции гибели опухолевых клеток |
Applications Claiming Priority (1)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| RU2015136918A RU2620165C2 (ru) | 2015-08-31 | 2015-08-31 | Способ индукции гибели опухолевых клеток |
Publications (2)
| Publication Number | Publication Date |
|---|---|
| RU2015136918A RU2015136918A (ru) | 2017-03-06 |
| RU2620165C2 true RU2620165C2 (ru) | 2017-05-23 |
Family
ID=58454140
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| RU2015136918A RU2620165C2 (ru) | 2015-08-31 | 2015-08-31 | Способ индукции гибели опухолевых клеток |
Country Status (1)
| Country | Link |
|---|---|
| RU (1) | RU2620165C2 (ru) |
Cited By (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| RU2687435C1 (ru) * | 2018-08-07 | 2019-05-13 | Федеральное государственное бюджетное учреждение науки институт биоорганической химии им. академиков М.М. Шемякина и Ю.А. Овчинникова Российской академии наук (ИБХ РАН) | Способ получения рекомбинантного противоопухолевого модифицированного белка DR5-B человека |
| RU2727059C1 (ru) * | 2019-04-26 | 2020-07-17 | Федеральное государственное бюджетное учреждение науки институт биоорганической химии им. академиков М.М. Шемякина и Ю.А. Овчинникова Российской академии наук (ИБХ РАН) | Способ подавления роста опухолей генно-модифицированным вариантом цитокина TRAIL |
| RU2830606C2 (ru) * | 2023-04-20 | 2024-11-22 | Андрей Николаевич Кусков | Комбинированные наночастицы на основе амфифильных сополимеров N-винилпирролидона для совместной таргетной доставки лекарственных препаратов |
Citations (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US20090203587A1 (en) * | 2004-10-08 | 2009-08-13 | Deutsches Krebsforschungszentrum Stiftung Des Öffe | Diagnosis and Therapy of Cell Proliferative Disorders Characterized by Resistance to Trail Induced Apoptosis |
| WO2012170640A1 (en) * | 2011-06-07 | 2012-12-13 | The Trustees Of Columbia University In The City Of New York | Methods and compositions for trail-drug combination therapy |
-
2015
- 2015-08-31 RU RU2015136918A patent/RU2620165C2/ru active
Patent Citations (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US20090203587A1 (en) * | 2004-10-08 | 2009-08-13 | Deutsches Krebsforschungszentrum Stiftung Des Öffe | Diagnosis and Therapy of Cell Proliferative Disorders Characterized by Resistance to Trail Induced Apoptosis |
| WO2012170640A1 (en) * | 2011-06-07 | 2012-12-13 | The Trustees Of Columbia University In The City Of New York | Methods and compositions for trail-drug combination therapy |
Non-Patent Citations (2)
| Title |
|---|
| BYCHKOV M. et al., DR5-B - DR5-selective mutant variant of cytokine TRAIL overcomes resistance of cancer cells to TRAIL,SW06.W33-24, FEBS Journal, 2013, Volume 280, Issue Supplement s1. P.597-правая колонка. Version of Record online: 1 JUL 2013. Найдено из Интернета [он-лайн] 13.07.2016 на cайте http://onlinelibrary.wiley.com/doi/10.1111/febs.12340/pdf. * |
| ЯГЛОВИЧ А.В. Повышение противоопухолевой активности цитокина TRAIL путем изменения аминокислотного состава белка, Автореф. дисс. на соиск. уч. ст. к.б.н, Москва, 2010, с.12-19, табл.2,4,5, рис.11-12. YOSHIDA S. et al., TRAIL/Apo2L Ligands Induce Apoptosis in Malignant Rhabdoid Tumor Cell Lines. Pediatric Research, 2003, 54, 709-717, doi:10.1203/01.PDR.0000085038.53151.D0. Найдено из Интернета [он-лайн] 13.07.2016 на сайте: http://www.nature.com/pr/journal/v54/n5/full/pr2003486a.html. * |
Cited By (3)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| RU2687435C1 (ru) * | 2018-08-07 | 2019-05-13 | Федеральное государственное бюджетное учреждение науки институт биоорганической химии им. академиков М.М. Шемякина и Ю.А. Овчинникова Российской академии наук (ИБХ РАН) | Способ получения рекомбинантного противоопухолевого модифицированного белка DR5-B человека |
| RU2727059C1 (ru) * | 2019-04-26 | 2020-07-17 | Федеральное государственное бюджетное учреждение науки институт биоорганической химии им. академиков М.М. Шемякина и Ю.А. Овчинникова Российской академии наук (ИБХ РАН) | Способ подавления роста опухолей генно-модифицированным вариантом цитокина TRAIL |
| RU2830606C2 (ru) * | 2023-04-20 | 2024-11-22 | Андрей Николаевич Кусков | Комбинированные наночастицы на основе амфифильных сополимеров N-винилпирролидона для совместной таргетной доставки лекарственных препаратов |
Also Published As
| Publication number | Publication date |
|---|---|
| RU2015136918A (ru) | 2017-03-06 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| Liu et al. | Boosting natural killer cell-based cancer immunotherapy with selenocystine/transforming growth factor-beta inhibitor-encapsulated nanoemulsion | |
| Lee et al. | Targeting of M2-like tumor-associated macrophages with a melittin-based pro-apoptotic peptide | |
| Jiang et al. | Tunicamycin sensitizes human melanoma cells to tumor necrosis factor–related apoptosis-inducing ligand–induced apoptosis by up-regulation of TRAIL-R2 via the unfolded protein response | |
| Kruyt | TRAIL and cancer therapy | |
| Park et al. | A human scFv antibody against TRAIL receptor 2 induces autophagic cell death in both TRAIL-sensitive and TRAIL-resistant cancer cells | |
| Shin et al. | Enhancement of the tumor penetration of monoclonal antibody by fusion of a neuropilin-targeting peptide improves the antitumor efficacy | |
| Kim et al. | Lipid anchor-mediated NK cell surface engineering for enhanced cancer immunotherapy | |
| CN109071537A (zh) | 用于加强检查点抑制剂的糖皮质激素受体调节剂的应用 | |
| CN111201038A (zh) | Psgl-1拮抗剂及其用途 | |
| JP2018524284A (ja) | 抗ror1抗体 | |
| EA029987B1 (ru) | Антитела к cd33 и их применение в лечении рака | |
| US20190284290A1 (en) | Dr5 receptor agonist combinations | |
| WO2018112266A1 (en) | Il-13 superkine: immune cell targeting constructs and methods of use thereof | |
| Liu et al. | Retargeted human avidin-CAR T cells for adoptive immunotherapy of EGFRvIII expressing gliomas and their evaluation via optical imaging | |
| Zheng et al. | CD147-specific chimeric antigen receptor T cells effectively inhibit T cell acute lymphoblastic leukemia | |
| AU2016227322A1 (en) | Dual signaling protein (DSP) fusion proteins, and methods of using thereof for treating diseases | |
| Wei et al. | VEGFR2 targeted antibody fused with MICA stimulates NKG2D mediated immunosurveillance and exhibits potent anti-tumor activity against breast cancer | |
| Zhang et al. | Engineering nano‐clustered multivalent agonists to cross‐link TNF receptors for cancer therapy | |
| Zheng et al. | Development of inhibitors targeting the V-domain Ig suppressor of T cell activation signal pathway | |
| Verma et al. | TCR mimic monoclonal antibodies induce apoptosis of tumor cells via immune effector-independent mechanisms | |
| CN107847597A (zh) | 包含与抗体组合施予的ido抑制剂的肿瘤治疗剂 | |
| Gasparian et al. | Mutations enhancing selectivity of antitumor cytokine TRAIL to DR5 receptor increase its cytotoxicity against tumor cells | |
| Xu et al. | Acetone extract of Cornus officinalis leaves exerts anti-melanoma effects via inhibiting STAT3 signaling | |
| WO2016172417A2 (en) | Interactions between ceacam and tim family members | |
| Li et al. | Beyond PD‐1/PD‐L1: New Immune Checkpoints and Therapeutic Combinations in Cancer Immunotherapy |