JP6901564B2 - Eprsタンパク質またはその断片を含む抗rnaウイルス用組成物 - Google Patents

Eprsタンパク質またはその断片を含む抗rnaウイルス用組成物 Download PDF

Info

Publication number
JP6901564B2
JP6901564B2 JP2019532908A JP2019532908A JP6901564B2 JP 6901564 B2 JP6901564 B2 JP 6901564B2 JP 2019532908 A JP2019532908 A JP 2019532908A JP 2019532908 A JP2019532908 A JP 2019532908A JP 6901564 B2 JP6901564 B2 JP 6901564B2
Authority
JP
Japan
Prior art keywords
eprs
composition
cells
rna virus
protein
Prior art date
Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
Active
Application number
JP2019532908A
Other languages
English (en)
Other versions
JP2019535803A (ja
Inventor
ヒー キム、ミュン
ヒー キム、ミュン
ヨン リ、ウン
ヨン リ、ウン
フン キム、スン
フン キム、スン
ホ リ、チュル
ホ リ、チュル
Current Assignee (The listed assignees may be inaccurate. Google has not performed a legal analysis and makes no representation or warranty as to the accuracy of the list.)
Korea Research Institute of Bioscience and Biotechnology KRIBB
Original Assignee
Korea Research Institute of Bioscience and Biotechnology KRIBB
Priority date (The priority date is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the date listed.)
Filing date
Publication date
Application filed by Korea Research Institute of Bioscience and Biotechnology KRIBB filed Critical Korea Research Institute of Bioscience and Biotechnology KRIBB
Publication of JP2019535803A publication Critical patent/JP2019535803A/ja
Application granted granted Critical
Publication of JP6901564B2 publication Critical patent/JP6901564B2/ja
Active legal-status Critical Current
Anticipated expiration legal-status Critical

Links

Images

Classifications

    • CCHEMISTRY; METALLURGY
    • C12BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12NMICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
    • C12N9/00Enzymes; Proenzymes; Compositions thereof; Processes for preparing, activating, inhibiting, separating or purifying enzymes
    • C12N9/93Ligases (6)
    • AHUMAN NECESSITIES
    • A61MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61KPREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K38/00Medicinal preparations containing peptides
    • A61K38/16Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
    • A61K38/43Enzymes; Proenzymes; Derivatives thereof
    • A61K38/53Ligases (6)
    • AHUMAN NECESSITIES
    • A61MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61KPREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K47/00Medicinal preparations characterised by the non-active ingredients used, e.g. carriers or inert additives; Targeting or modifying agents chemically bound to the active ingredient
    • A61K47/50Medicinal preparations characterised by the non-active ingredients used, e.g. carriers or inert additives; Targeting or modifying agents chemically bound to the active ingredient the non-active ingredient being chemically bound to the active ingredient, e.g. polymer-drug conjugates
    • A61K47/51Medicinal preparations characterised by the non-active ingredients used, e.g. carriers or inert additives; Targeting or modifying agents chemically bound to the active ingredient the non-active ingredient being chemically bound to the active ingredient, e.g. polymer-drug conjugates the non-active ingredient being a modifying agent
    • A61K47/62Medicinal preparations characterised by the non-active ingredients used, e.g. carriers or inert additives; Targeting or modifying agents chemically bound to the active ingredient the non-active ingredient being chemically bound to the active ingredient, e.g. polymer-drug conjugates the non-active ingredient being a modifying agent the modifying agent being a protein, peptide or polyamino acid
    • A61K47/64Drug-peptide, drug-protein or drug-polyamino acid conjugates, i.e. the modifying agent being a peptide, protein or polyamino acid which is covalently bonded or complexed to a therapeutically active agent
    • AHUMAN NECESSITIES
    • A61MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61PSPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
    • A61P31/00Antiinfectives, i.e. antibiotics, antiseptics, chemotherapeutics
    • A61P31/12Antivirals
    • A61P31/14Antivirals for RNA viruses
    • CCHEMISTRY; METALLURGY
    • C12BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12NMICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
    • C12N15/00Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
    • C12N15/09Recombinant DNA-technology
    • C12N15/11DNA or RNA fragments; Modified forms thereof; Non-coding nucleic acids having a biological activity
    • C12N15/52Genes encoding for enzymes or proenzymes
    • CCHEMISTRY; METALLURGY
    • C12BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12YENZYMES
    • C12Y601/00Ligases forming carbon-oxygen bonds (6.1)
    • C12Y601/01Ligases forming aminoacyl-tRNA and related compounds (6.1.1)
    • C12Y601/01015Proline--tRNA ligase (6.1.1.15)
    • CCHEMISTRY; METALLURGY
    • C12BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12YENZYMES
    • C12Y601/00Ligases forming carbon-oxygen bonds (6.1)
    • C12Y601/01Ligases forming aminoacyl-tRNA and related compounds (6.1.1)
    • C12Y601/01017Glutamate-tRNA ligase (6.1.1.17)
    • CCHEMISTRY; METALLURGY
    • C07ORGANIC CHEMISTRY
    • C07KPEPTIDES
    • C07K2319/00Fusion polypeptide
    • C07K2319/01Fusion polypeptide containing a localisation/targetting motif
    • CCHEMISTRY; METALLURGY
    • C12BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12YENZYMES
    • C12Y601/00Ligases forming carbon-oxygen bonds (6.1)
    • C12Y601/01Ligases forming aminoacyl-tRNA and related compounds (6.1.1)
    • C12Y601/01018Glutamine--tRNA ligase (6.1.1.18)
    • YGENERAL TAGGING OF NEW TECHNOLOGICAL DEVELOPMENTS; GENERAL TAGGING OF CROSS-SECTIONAL TECHNOLOGIES SPANNING OVER SEVERAL SECTIONS OF THE IPC; TECHNICAL SUBJECTS COVERED BY FORMER USPC CROSS-REFERENCE ART COLLECTIONS [XRACs] AND DIGESTS
    • Y02TECHNOLOGIES OR APPLICATIONS FOR MITIGATION OR ADAPTATION AGAINST CLIMATE CHANGE
    • Y02ATECHNOLOGIES FOR ADAPTATION TO CLIMATE CHANGE
    • Y02A50/00TECHNOLOGIES FOR ADAPTATION TO CLIMATE CHANGE in human health protection, e.g. against extreme weather
    • Y02A50/30Against vector-borne diseases, e.g. mosquito-borne, fly-borne, tick-borne or waterborne diseases whose impact is exacerbated by climate change

Landscapes

  • Health & Medical Sciences (AREA)
  • Life Sciences & Earth Sciences (AREA)
  • Chemical & Material Sciences (AREA)
  • Engineering & Computer Science (AREA)
  • Bioinformatics & Cheminformatics (AREA)
  • Organic Chemistry (AREA)
  • General Health & Medical Sciences (AREA)
  • Genetics & Genomics (AREA)
  • Wood Science & Technology (AREA)
  • Zoology (AREA)
  • Proteomics, Peptides & Aminoacids (AREA)
  • Medicinal Chemistry (AREA)
  • Molecular Biology (AREA)
  • General Engineering & Computer Science (AREA)
  • Pharmacology & Pharmacy (AREA)
  • Animal Behavior & Ethology (AREA)
  • Public Health (AREA)
  • Veterinary Medicine (AREA)
  • Biochemistry (AREA)
  • Epidemiology (AREA)
  • Biomedical Technology (AREA)
  • Biotechnology (AREA)
  • Immunology (AREA)
  • Gastroenterology & Hepatology (AREA)
  • Microbiology (AREA)
  • Virology (AREA)
  • Physics & Mathematics (AREA)
  • Biophysics (AREA)
  • Plant Pathology (AREA)
  • Oncology (AREA)
  • Communicable Diseases (AREA)
  • Chemical Kinetics & Catalysis (AREA)
  • General Chemical & Material Sciences (AREA)
  • Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
  • Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
  • Pharmaceuticals Containing Other Organic And Inorganic Compounds (AREA)
  • Micro-Organisms Or Cultivation Processes Thereof (AREA)
  • Enzymes And Modification Thereof (AREA)
  • Medicinal Preparation (AREA)
  • Cosmetics (AREA)

Description

本発明は、EPRS(glutamyl-prolyl-tRNA synthetase)タンパク質またはその断片を含む抗RNAウイルス用組成物、RNAウイルス感染疾患の予防または治療用組成物、及び前記組成物を用いたRNAウイルス感染疾患の予防または治療方法に関する。
ARS(Aminoacyl-tRNA synthetases)はアミノアシル化を触媒するのに必要不可欠な酵素であって、高性能タンパク質の合成を保障する。ARSの触媒領域は、3つの系(kingdom)に高いレベルで保存されている。細胞質に存在するARSは原核生物のホモログ(homologues)にも存在していないばかりか、酵素的コア部分も存在しない独特な構造的特性を有する新しいドメインのスイッチの追加を含めて、高等動物が進化する過程で大きく変化した。特に、前記追加領域は広い範囲の生物学的機能と関連がある。そこで、ARSは、タンパク質の合成を越えて新たな分類の調節タンパク質として知られている。高等生物において多数のARSの活性は、MSC(multi-tRNA synthetase complex)と呼ばれる細胞質保存システム内に存在することにより調節されることが分かった。前記MSCは、ほとんどの場合、追加のドメインを介して組み立てられ、EPRS(glutamyl-prolyl-tRNA syntetase)、及び3つのARS相互作用の多機能タンパク質(AIMP1/p43、AIMP2/p38、及びAIMP3/p38)を含む8種のtRNA合成酵素で構成されている(非特許文献1)。
ストレス条件下で、EPRS、MRS(methionyl-tRNA synthetase)、KRS(lysyl-tRNA synthetase)、AIMP1、及びAIMP2を含むいくつかのMSCの構成要素は、翻訳後の変形過程を経て複合体から放出され、非翻訳過程での炎症、細胞代謝、血管新生及び腫瘍形成のような活性を示すことが分かった( 非特許文献2)。リン酸化は、細胞内でARSの非翻訳的機能を決定する重要な調節作用機序である。代表的な例として、唯一の二作用(bifunctional)tRNA合成酵素であるEPRSがある。EPRSは、ERS及びPRSが、3つのWHEPドメインを含むリンカーを介して相互に連結された形態で構成されている。MSCから放出を誘導しうる特性に照らして、EPRSはMSCの外部に存在すると考えられる。EPRSのERS及びPRSのドメイン間に位置するSer886及びSer999残基は、IFN‐γで刺激され、連続的にリン酸化され、これにより、MSCからの放出が促進される。EPRSがMSCから放出されると、NSAP1(NS1-associated protein 1)、リン酸化されたリボソームタンパク質L13a、及びGAPDH(glyceraldehyde-3-phosphate dehydrogenase)と相互作用して、GAIT(IFN-γ-activated inhibitor of translation)複合体を形成する。前記調節複合体は、セルロプラスミン(ceruloplasmin、Cp)のような炎症タンパク質をコードするmRNAの特定の3’‐UTR(untranslated region)に結合して、これらの翻訳を抑制する。このような特異的機能は、感染の初期に、これに反応して生成される有害な前炎症性分子の発現を調節することにより、慢性炎症を緩和するのに寄与すると考えられる。しかし、IFN‐γは、感染後期の後天性免疫反応の間に生成されるものであり、主にIL‐12によって活性化されたNK(natural killer)細胞またはTh1細胞によって分泌されるという事実に注目する必要がある。
先天性免疫反応は、感染初期に最初のシールドとなる。抗ウイルスのシグナル伝達は、ウイルス感染に反応して進化した核心的な細胞過程である。前記シグナル伝達は、ウイルスRNAを検出する重要な細胞センサーRIG‐I(retinoic acid-inducible gene-I)とMDA5(melanoma differentiation-associated protein 5)を含むRIG‐I類似受容体(RLR)経路によって主に活性化される。その後、前記センサーは、重要な抗ウイルスのシグナル伝達タンパク質MAVS(mitochondria antiviral signaling protein)と相互作用し、細胞内のリン酸化酵素であるIKKとTBK1を介して各々転写因子NF‐kB及びIRF3を活性化させる。前記シグナル伝達は、最終的にはI型IFN及びその他の抗ウイルス分子の誘導を引き起こす(非特許文献3)。このシグナル伝達経路は、タンパク質の複合体ネットワークを介して抗ウイルス反応を調節する陽性及び陰性調節作用機序によって適切に調節される。したがって、ウイルスのRNAによってRLR経路が活性化され、これにより、MAVSによって免疫反応が活性化されるので、MAVSの分解を防ぐ場合、RNAウイルスに対して汎用的な抗ウイルス活性を有する。
Trends Biochem. Sci, 2007, 35: 158-164 Trends Biochem. Sci, 2009, 34: 324-331 Cell, 2006, 124: 783-801
本発明者らは、ウイルス感染を予防または治療することができる抗ウイルス用組成物を開発するために鋭意努力した結果、MSCの構成要素の一つであるEPRSタンパク質またはその断片が感染特異的な変形を介して重要な抗ウイルスシグナル伝達タンパク質MAVSの陰性調節者であるPCBP2(poly(rC)-binding protein2)からMAVSを保護し、最終的には、ウイルス感染に対する予防及び治療効果を有することを確認することにより、本発明を完成した。
本発明の一つの目的は、EPRS(glutamyl-prolyl-tRNA synthetase)タンパク質またはその断片を含み、前記EPRSタンパク質の断片が、配列番号63の168〜186番目のアミノ酸配列を含むものである、抗RNAウイルス用組成物を提供することにある。
本発明の他の目的は、抗RNAウイルス活性を有するEPRSタンパク質またはその断片であって、前記EPRSタンパク質の断片は、配列番号63の168〜186番目のアミノ酸配列を含むものである、タンパク質またはその断片を提供することにある。
本発明のもう一つの目的は、前記タンパク質またはその断片をコードするポリヌクレオチドを提供することにある。
本発明のもう一つの目的は、前記ポリヌクレオチドを含むベクターを提供することにある。
本発明のもう一つの目的は、前記ポリヌクレオチドまたはベクターを含む、形質転換体を提供することにある。
本発明のもう一つの目的は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または治療用薬学組成物を提供することにある。
本発明のもう一つの目的は、前記抗RNAウイルス用組成物を個体に投与する段階を含む、RNAウイルス感染疾患の治療方法を提供することにある。
本発明のもう一つの目的は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用医薬部外品組成物を提供することにある。
本発明のもう一つの目的は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用食品組成物を提供することにある。
本発明のもう一つの目的は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用化粧料組成物を提供することにある。
本発明のもう一つの目的は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用飼料組成物を提供することにある。
本発明のもう一つの目的は、前記抗RNAウイルス用組成物を投与する段階を含む、MAVSタンパク質分解の予防または抑制方法を提供することにある。
本発明のEPRSタンパク質またはその断片を含む組成物は、PCBP2タンパク質に結合して、すべての抗RNAウイルス活性において重要な役割をするMAVSシグナル伝達経路を活性化させることにより、汎用的な抗RNAウイルス効果を有するため、RNA感染疾患の予防または治療用組成物として優れた効果がある。
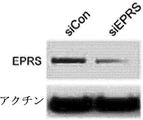
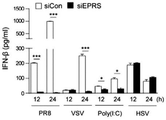
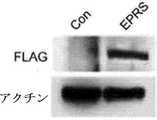
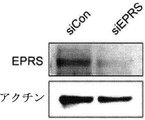
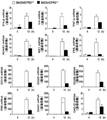
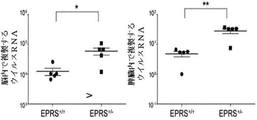
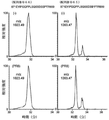
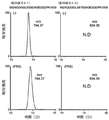
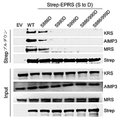
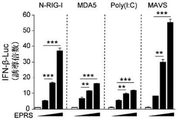
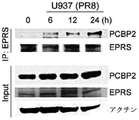
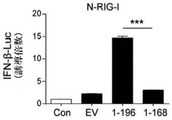
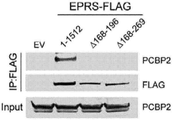
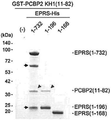
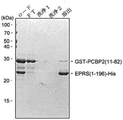
PR8に感染された気管支上皮細胞におけるMSC遺伝子(1.5倍以上の変化)の上向調節(灰色)、あるいは下向調節(黒)を示した。 EPRSのIFN‐βプロモーター活性の誘導効果を確認した。選別されたMSCの遺伝子のルシフェラーゼ分析のためにRIG‐IのN‐ターミナルドメイン(N-RIG-1)及びIFN‐βプロモーターを暗号化するプラスミドを293T細胞に形質転換させた。ConはN‐RIG‐Iに形質転換しない。 ウイルスに感染されたさまざまな細胞株におけるEPRS発現を確認した。 EPRS発現を免疫ブロット分析で確認した。RAW246.7細胞は、非標的対照群siRNA(siCon)またはsiEPRSで形質転換させた。 蛍光顕微鏡でウイルス複製の分析を行った(蛍光顕微鏡、上段パネル;位相差顕微鏡、下段パネル)。RAW264.7細胞は、siControl(siCon)またはsiEPRSで形質転換させた。 PR8‐GFP(MOI=1)またはVSV‐GFP(MOI=0.5)に感染された後、24時間後に蛍光分析及びプラーク分析を示した。RAW264.7細胞をsiControl(siCon)またはsiEPRSで形質転換させた。 HSV‐GFP(MOI=1)に感染させた後、ウイルス力価を確認した。RAW246.7細胞は、非標的対照群siRNA(siCon)またはsiEPRSで形質転換させた。 PR8‐GFP、VSV‐GFP、またはHSV‐GFP(MOI=1)に感染させたり、またはpoly(I:C)(80μg)を処理した細胞の培養上清液からIFN‐βのレベルを確認した。RAW264.7細胞をsiControl(siCon)またはsiEPRSで形質転換させた。 PR8‐GFP、VSV‐GFP、またはHSV‐GFP(MOI=1)に感染させたり、またはpoly(I:C)(80μg)を処理した細胞の培養上清液からIL‐6のレベルを確認した。RAW264.7細胞をsiControl(siCon)またはsiEPRSで形質転換させた。 siConまたはsiEPRSで36時間形質転換させた後、VSV‐GFP(MOI=0.0001)に感染させた293T細胞の蛍光顕微鏡の写真を示した。 siConまたはsiEPRSで36時間形質転換させた後、VSV‐GFP(MOI=0.0001)に感染させた293T細胞でウイルスの複製を確認した。 siConまたはsiEPRSで36時間形質転換させた後、VSV‐GFP(MOI=0.0001)に感染させた293T細胞でIFN‐βまたはIL‐6の分泌レベルを確認した。 PR8‐GFP(MOI=1)に感染させた細胞におけるEPRS発現の免疫ブロット分析を示した。RAW264.7細胞は、非標的対照群shRNA(shCon)またはEPRSshRNA(shEPRS)を導入した後、ピューロマイシンで選別して使用した。 PR8‐GFP(MOI=1)に感染させた細胞の蛍光顕微鏡写真を示した。RAW264.7細胞は、非標的対照群shRNA(shCon)またはEPRSshRNA(shEPRS)を導入した後、ピューロマイシンで選別して使用した。 PR8‐GFP(MOI=1)に感染させた細胞におけるPR8力価を示した。RAW264.7細胞は、非標的対照群shRNA(shCon)またはEPRSshRNA(shEPRS)を導入した後、ピューロマイシンで選別して使用した。 PR8‐GFP(MOI=1)に感染させた細胞におけるIFN‐βまたはIL‐6の分泌レベルを示した。RAW264.7細胞は、非標的対照群shRNA(shCon)またはEPRSshRNA(shEPRS)を導入した後、ピューロマイシンで選別して使用した。 VSV‐GFP(MOI)に感染させた安定的EPRS欠損細胞の蛍光顕微鏡写真を示した。RAW264.7細胞は、非標的対照群shRNA(shCon)またはEPRSshRNA(shEPRS)を導入した後、ピューロマイシンで選別して使用した。 VSV‐GFP(MOI)に感染させた安定的EPRS欠損細胞におけるVSV力価を示した。RAW264.7細胞は、非標的対照群shRNA(shCon)またはEPRSshRNA(shEPRS)を導入した後、ピューロマイシンで選別して使用した。 VSV‐GFP(MOI)に感染させた安定的EPRS欠損細胞におけるIFN‐βまたはIL‐6の分泌レベルを示した。RAW264.7細胞は、非標的対照群shRNA(shCon)またはEPRSshRNA(shEPRS)を導入した後、ピューロマイシンで選別して使用した。 IRF3及びSTAT1のリン酸化または不活性化、及びEPRS及びアクチンの発現を免疫ブロット分析で確認した。EPRSに対するshRNA(shEPRS)または対照群shRNA(shCon)を発現するRAW264.7細胞を示された時間にPR8‐GFPに感染させた。 EPRS発現の免疫ブロット分析を示した。RAW264.7細胞は、FLAGタグ空ベクター(Con)またはEPRS‐FLAG(EPRS)プラスミドで形質転換させた後、ピューロマイシンで選別した。 PR8‐GFPに感染された空ベクター(Con)またはEPRSノックイン(knock-in)RAW264.7細胞に対する蛍光顕微鏡分析を示した。 PR8‐GFPに感染された空ベクター(Con)またはEPRSノックイン(knock-in)RAW264.7細胞に対する蛍光分析及びプラーク分析を示した。 PR8‐GFPに感染された空ベクター(Con)またはEPRSノックイン(knock-in)RAW264.7細胞のIFN‐βまたはIL‐6の分泌を確認した。 VSV‐GFP(MOI=0.5)に感染させたEPRS過発現細胞の蛍光顕微鏡写真を示した。RAW264.7細胞は、FLAGタグ空ベクター(Con)またはEPRS‐FLAG(EPRS)プラスミドで形質転換させた後、ピューロマイシンで選別した。 VSV‐GFP(MOI=0.5)に感染させたEPRS過発現細胞におけるVSV力価を確認した。RAW264.7細胞は、FLAGタグ空ベクター(Con)またはEPRS‐FLAG(EPRS)プラスミドで形質転換させた後、ピューロマイシンで選別した。 VSV‐GFP(MOI=0.5)に感染させたEPRS過発現細胞におけるIFN‐βまたはIL‐6の分泌レベルを確認した。RAW264.7細胞は、FLAGタグ空ベクター(Con)またはEPRS‐FLAG(EPRS)プラスミドで形質転換させた後、ピューロマイシンで選別した。 プラーク分析でウイルス力価を確認した。EPRS+/+及びEPRS+/-マウスのBMDMをVSV‐GFP(MOI=5)及びPR8‐GFP(MOI=3)に感染させた。 ウイルス感染後、12または24時間後の培養上清液でIFN‐β、及びIL‐6レベルを確認した。EPRS+/+及びEPRS+/-マウスのBMDMをVSV‐GFP(MOI=5)及びPR8‐GFP(MOI=3)に感染させた。 poly(I:C)処理後、12または24時間後の培養上清液でIFN‐β及びIL‐6レベルを確認した。EPRS+/+及びEPRS+/-マウスのBMDMをpoly(I:C)(40μg)で処理した。 BMDMにおけるEPRS発現を免疫ブロット分析で確認した。BMDMは、非標的対照群siRNA(siCon)またはsiEPRSで36時間形質転換させた。 感染して12及び24時間後にプラーク分析を行い、ウイルス力価を確認した。BMDMは、PR8‐GFP(MOI=3)またはVSV‐GFP(MOI=5)に感染させた。 感染して12及び24時間後にELISAを行い、IFN‐β及びIL‐6レベルを測定した。BMDMは、PR8‐GFP(MOI=3)またはVSV‐GFP(MOI=5)に感染させた。 40μgPoly(I:C)を処理したBMDM培養上清液でIFN‐β及びIL‐6レベルを測定した。 VSV‐GFPに感染させ、12時間後にEPRS+/+及びEPRS+/-マウス由来のBMDMでIFN‐β、IL‐6、及びその他のIFN関連の抗ウイルス遺伝子の発現を確認した。 ウイルス感染細胞におけるIFN‐βmRNAまたはIFN関連の抗ウイルス遺伝子の発現が誘導されるかどうかを確認した。RAW264.7細胞は、siConまたはsiEPRSに36時間形質転換させた後、PR8‐GFP(MOI=1)で12時間感染させた。グラフは、示された遺伝子をgapdhに対して標準化させて誘導倍数で示した。 HSV‐GFPに感染させた後、細胞培養の上清液におけるウイルス力価(プラーク分析で確認)を示した。EPRS+/+及びEPRS+/-マウス由来のBMDMは、HSV‐GFP(MOI=2)に感染させた。 HSV‐GFPに感染させた後、細胞培養の上清液におけるIFN‐βまたはIL‐6の分泌レベルを確認した。EPRS+/+及びEPRS+/-マウス由来のBMDMは、HSV‐GFP(MOI=2)に感染させた。 年齢及び性別が同一のEPRS+/+(n=15)及びEPRS+/-(n=14)マウスにVSVインディアナを静脈投与(2×10pfu/mouse)した後、10日間の生存率を確認した。 EPRS+/+及びEPRS+/-マウス(n=6)を感染させ、5日後、脳と脾臓組織でプラーク分析を行い、ウイルスの量を確認した。 VSV転写体(n=5)に対してqPCRを行い、ウイルスの量を確認した。 プラーク分析でウイルス量を確認した。EPRS+/+及びEPRS+/-マウス(n=8)をVSV‐GFPに感染させ(2×10pfu/mouse)、12時間後に回収した血清を分析に使用した。 IFN‐β、IFN‐α及びIL‐6レベルをELISAで確認した。 EPRS+/+及びEPRS+/-マウス(n=8)をVSV‐GFPに感染させ(2×10pfu/mouse)、12時間後に回収した血清を分析に使用した。 EPRS+/+及びEPRS+/-マウス(n=4)をVSVインディアナに感染させ、5日後に脳組織切片をH&E染色し、神経柔組織(parenchyma)を確認した(i-iii)。脳柔組織で反応性ミクログリア細胞(microglial cell)及び単核球細胞によって形成された膠細胞結節(glial nodule)は黒い矢印で示し、血管周囲浸潤は矢印の先で示した。単核球細胞の大量浸潤で側脳室(lateral ventricle、LV)に脳室膜線が破壊されたことが観察された(赤い矢印、iv)。Conは、ウイルスに感染されてない標本である。 VSVインディアナに感染されて3日及び5日後の抗VSV‐G抗体で脳切片(n=4)を染色した免疫組織分析の結果を示した。核はDAPIで染色した。VSV陽性GFPシグナルは白い矢印で示した。Conは、ウイルスに感染されてない標本である。 U937細胞をPR8‐GFPに感染させたり(MOI=3)またはIFN‐γで処理(500unit/ml)した後、抗EPRS抗体で内因性の共同‐IPを行い、抗KRS及び抗AIMP3(MSC構成要素)、及び抗NSAP1及び抗GAPDH(GAIT複合体の構成要素)抗体で免疫ブロッティングを行った結果を示した。 ウイルス感染がMSC構成要素のタンパク質からEPRSの放出を誘導することを確認した。PR8‐GFP(MOI=1)に感染させたRAW264.7細胞の溶解物を用いて、抗EPRS抗体でIPを行った後、抗KRS、抗MRS、抗AIMP3、及び抗GAPDH抗体で免疫ブロット分析を行った。 ウイルス感染がMSC構成要素のタンパク質からEPRSの放出を誘導することを確認した。PR8‐GFP(MOI=1)に感染させたRAW264.7細胞の溶解物を用いて、抗KRS抗体でIPを行った後、抗EPRS、及び抗AIMP3抗体で免疫ブロット分析を行った。 内因性EPRS(赤)及びKRS(緑)をコンフォーカル顕微鏡で確認して、共同位置で検出されるかどうかを確認した。細胞はPR8(MOI=5)に6または12時間感染させたり、IFN‐γ(1000unit/ml)で12時間処理した。スケールバー、10μm。 EPRS及びKRSの共同位置のインデックスを示す。 PR8(MOI=5)に6または12時間感染させたHeLa細胞における内因性EPRS(赤)及びKRS(緑)の発現をコンフォーカル顕微鏡で確認した。IFN‐γ(1000unit/ml)を12時間処理して比較した。スケールバー、10μm(拡大写真は2μm)。 PR8‐GFP(MOI=5)に感染されたり、または感染されていない(−)293T細胞でStrep沈降分析で精製したStrep‐EPRSをSilver染色した。EPRSタンパク質は*で示した。EV、Strepタグ空ベクター。 非感染(− 、上段パネル)及びPR8感染(PR8、下段パネル)の条件で収得した2価イオンEPRSペプチドEYIPGQPPLSQSSDSpS*PTR(MH+=2125.93、z=2+、配列番号65)のMS/MSスペクトルを示した。前記ペプチドは、S886のリン酸化位置(*で表示)を含む。切片イオンは質量分析においてペプチド切片化に対する命名法に基づいて表示した。 非感染(− 、上段パネル)及び感染(PR8、下段パネル)の条件下でトリプシン分解を行い、非リン酸化(左)及びリン酸化(右)EPRS由来の2価イオンEYIPGQPPLSQSSDSSPTR(MH+=2044.96、z=2+、配列番号66)ペプチドに対するXIC(Extracted ion chromatogram)を示した。 *は、リン酸化された残基を示し、N.D.は検出されないことを示す。 非感染(− 、上段パネル)及び感染(PR8、下段パネル)の条件下でトリプシン分解を行い、非リン酸化EPRS由来の2価イオンNQGGGLSSSGAGEGQGPK(MH+=1586.72、z=2+、配列番号67)ペプチド(左)及びリン酸化EPRS由来の2価イオンNQGGGLSS*SGAGEGQGPK(配列番号68)ペプチド(右)のXIC(Extracted ion chromatogram)を示した。 *は、リン酸化された残基を示し、N.D.は検出されないことを示す。 3価イオンEPRSペプチド、KDPSKNQGGGLSSSGAGEGQGPK [MH+=2142.02、z=3+、配列番号69;非感染条件(−、左パネル)]、及びKDPpS*KNQGGGLSSSGAGEGQGPK [MH+=2222.99、z=3+、配列番号70; PR8感染条件(PR8、右側のパネル)]のMS/MSスペクトルを示した。後者は、Ser990リン酸化の位置を含む(*印)。 非感染(− 、上段パネル)及び感染(PR8、下段パネル)の条件下でトリプシン分解を行い、非リン酸化(左)及びリン酸化(右)EPRS由来の3価イオンKDPSKNQGGGLSSSGAGEGQGPK(MH+=2142.02、z=3+、配列番号69)ペプチドに対するXIC(Extracted ion chromatogram)を示した。 *は、リン酸化された残基を示し、N.D.は検出されないことを示す。 PR8‐GFPに感染されたり、IFN‐γを処理したU937細胞のEPRSSer990のリン酸化を免疫ブロット分析で確認した。 PR8‐GFP(MOI=1)に感染されたRAW264.7細胞におけるEPRSSer990のリン酸化を免疫ブロット分析で確認した。 PR8‐GFP(MOI=5)に感染された293T細胞におけるEPRSSer990のリン酸化を免疫ブロット分析で確認した。 VSV‐GFP( MOI=0.001)に感染された293T細胞におけるEPRSSer990のリン酸化を免疫ブロット分析で確認した。 Poly(I:C)2μgで形質転換させた細胞におけるEPRSSer990のリン酸化を免疫ブロット分析で確認した。 PR8‐GFPに感染されたり、IFN‐γを処理したU937細胞におけるEPRSSer886のリン酸化を免疫ブロット分析で確認した。 PR8‐GFPに感染されたり、IFN‐γを処理したU937細胞におけるEPRSSer999のリン酸化を免疫ブロット分析で確認した。 PR8‐GFPまたはVSV‐GFPに感染されたU937細胞におけるIFN‐γ分泌レベルを確認した。陽性対照群としてIFN‐γ(1000unit/ml)を24時間処理した細胞を使用した。 PR8‐GFPまたはVSV‐GFPに感染されたRAW264.7細胞におけるIFN‐γ分泌レベルを確認した。陽性対照群としてIFN‐γ(1000unit/ml)を24時間処理した細胞を使用した。 PR8‐GFPに感染されたRAW264.7細胞におけるCp発現を免疫ブロット分析で確認した。 Ser990のリン酸化模倣EPRSがMSCから放出されることを確認した結果である。293T細胞は、空ベクター(EV)、Strep-EPRSWT、または3つのリン酸化模倣の形態で形質転換させ、Strep沈降を行った後、抗KRS、抗AIMP3、及び抗MRS抗体で免疫ブロット分析を行った。 EPRS‐FLAGプラスミド(0、50、200、または800ng)と一緒にN‐RIG‐I、MDA5、poly(I:C)またはMAVSで形質転換させた293T細胞におけるIFN‐βプロモーターの活性を確認した。 EPRS‐FLAGプラスミド(0、50、200、または800ng)と一緒にTRAF3、TBK1、またはIRF7で形質転換させた293T細胞におけるIFN‐βプロモーターの活性を確認した。 293T細胞をStrep‐EPRSプラスミドで形質転換させた後、PR8‐GFP(MOI=5)に6時間感染させ、24時間後、細胞から分離したStrep‐EPRS複合体をSilver染色した。*で示したタンパク質は、PCBP2(38kDa)を示す。配列は質量分析で究明されたペプチドを示す。 PR8に感染されたRAW264.7細胞を抗EPRS抗体で免疫沈降した後、抗PCBP2抗体で免疫ブロット分析を行い、EPRS及びPBP2の相互作用を確認した。 PR8に感染されたU937細胞を抗EPRS抗体で免疫沈降した後、抗PCBP2抗体で免疫ブロット分析を行い、EPRS及びPBP2の相互作用を確認した。 PR8ウイルス(MOI=5)に感染されたHeLa細胞における内因性EPRS(赤)及びPCBP2(緑)の発現をコンフォーカル分析で確認した。スケールバー、10μm。 本発明で用いられたEPRS及びその断片の模式図を示した。PCBP2にEPRSが結合するかどうか(+または−)を示した。GST、GST様ドメイン;L、リンカー;CD、触媒ドメイン;tRNA、tRNA結合ドメイン;W、WHEPドメイン。 EPRS及びその断片がPCBP2と相互作用するかどうかを確認した。293T細胞を空ベクター(EV)、PCBP2またはEPRSプラスミドで形質転換させた。 ルシフェラーゼのレポーター分析でIFN‐βプロモーターの活性を確認した。293T細胞をEVまたは示されたEPRSプラスミドと一緒にN‐RIG‐I、IFN‐βプロモーター、及びTK‐Renillaを含む発現プラスミドで形質転換させた。 EPRS及びその断片がPCBP2と相互作用するかどうかを確認した。293T細胞を空ベクター(EV)、PCBP2またはEPRSプラスミドで形質転換させた。 ルシフェラーゼのレポーター分析でIFN‐βプロモーターの活性を確認した。293T細胞をEVまたは示されたEPRSプラスミドと一緒にN‐RIG‐I、IFN‐βプロモーター、及びTK‐Renillaを含む発現プラスミドで形質転換させた。 EPRS及びその断片がPCBP2と相互作用するかを確認した。293T細胞を空ベクター(EV)、PCBP2またはEPRSプラスミドで形質転換させた。 ルシフェラーゼのレポーター分析でIFN‐βプロモーターの活性を確認した。293T細胞をEVまたは表示されたEPRSプラスミドと一緒にN‐RIG‐I、IFN‐βプロモーター、及びTK‐Renillaを含む発現プラスミドで形質転換させた。 PCBP2コンストラクトを模式的に示した。PCBP2がEPRSに結合するかどうかを示した。 PCBP2KH1がEPRSとの相互作用に核心的であることを確認した。Strep沈降でStrep‐EPRS及びさまざまな形態のGST‐PCBP2を発現する293T細胞の溶解物を沈降させて、抗GST抗体で免疫ブロットを行い、PCBP2との相互作用を確認した。 EPRS(aa1‐732、aa1‐196及びaa1‐168)及びPCBP2KH1(aa11‐82)ドメイン間の直接結合するかどうかをインビトロ沈降分析で確認した。黒い矢印は、精製過程でEPRSから由来したタンパク質の切片を示す。示されたバンドのN‐末端配列はEPRSのMRFDD(aa234‐238)及びMVTFI(aa565‐569)の配列であることが確認された。赤い矢印の先は、PCBP2KH1ドメインを示す。 EPRS及びPCBP2の間の相互作用を確認した。精製されたHisタグEPRS(aa1‐196)をGST融合PCBP2KH1(aa11‐82)と混合した。Hisタグ沈降後、タンパク質を用いてSDS‐PAGEを行った後、Coomassie Brilliant Blueで染色した。FTは、flow‐through分画を意味する。 EPRS及びPCBP2の間の相互作用を確認した。精製されたHisタグEPRS(aa1‐186)をGST融合PCBP2KH1(aa11‐82)と混合した。Higタグ沈降後、タンパク質を用いてSDS‐PAGEを行った後、Coomassie Brilliant Blueで染色した。FTは、flow‐through分画を意味する。 PCBP2KH1ドメインとMAVSの相互作用を確認した。MAVS及びさまざまなPCBP2プラスミドで形質転換させた293T細胞の溶解物を抗FLAG抗体で共同IPし、抗GST抗体で免疫ブロット分析を行って、PCBP2との相互作用を確認した。 PCBP2KH1ドメインとMAVSの相互作用を確認したインビトロ沈降分析を示した。矢印の先は、MAVSタンパク質を示す。 MAVSとPCBP2間の相互作用を示した。精製されたGST融合MAVS(aa460‐540)をHisタグPCBP2KH1(aa11‐82)と混合した。タンパク質の混合物をNi‐NTAアガロースビーズにロードして、イミダゾール溶出緩衝液で溶出させた。FTは、flow‐through分画を意味する。 MAVSとPCBP2間の相互作用を示したものである。精製されたGST-融合MAVS(aa460‐540)をHisタグPCBP2リンカー(aa 168-279)と混合した。タンパク質の混合物をNi‐NTAアガロースビーズにロードしてイミダゾール溶出緩衝液で溶出させた。FTは、flow‐through分画を意味する。 抗FLAGまたは抗Strep抗体でそれぞれMAVS(最初のパネル)またはEPRS(2番目のパネル)とPCBP2との相互作用をGST沈降及び免疫ブロット分析により確認した。293T細胞は、MAVS及びPCBP2で形質転換させて、EPRSの量を多様に処理した。 PCBP2とITCH(最初のパネル)またはEPRS(2番目のパネル)との相互作用を評価するために、GST沈降分析を行った。 PCBP2とEPRSまたはMAVS間の内因性相互作用を確認した。抗PCBP2抗体でPR8に感染されたRAW264.7細胞の溶解物から内因性PCBP2を免疫沈降させ、抗EPRS(最初のパネル)または抗MAVS(2番目のパネル)抗体で免疫ブロットを行った。 EPRS、PCBP2、ITCH、及びUbをさまざまな組み合わせで発現する293T細胞をMG‐132で処理した後、その溶解物から免疫沈降させた外因性MAVSを抗K48Ub抗体で免疫ブロット分析を行った。 EPRS、PCBP2、ITCH、及びUbをさまざまな組み合わせで発現する293T細胞をMG‐132で処理した後、その溶解物から免疫沈降させた内因性MAVSを抗K48Ub抗体で免疫ブロット分析を行った。 PCBP2で形質転換させた293T細胞にさまざまな濃度のEPRSを処理した後、外因性MAVSの発現を確認した。グラフは、アクチンに対して標準化したMAVSバンドの強度を示す。 PCBP2で形質転換させた293T細胞にさまざまな濃度のEPRSを処理した後、内因性MAVSの発現を確認した。グラフは、アクチンに対して標準化したMAVSバンドの強度を示す。 抗Ub抗体で免疫ブロットを行い、MAVSユビキチン化を確認したインビトロ分析を示した。精製されたMAVSタンパク質をユビキチン、E1、E2、及び精製されたEPRS、PCBP2、及びITCHタンパク質の組み合わせと一緒にインキュベーションした。 細胞透過性のTatと融合したEPRSL1(aa168‐196)ドメインがMAVSユビキチン化を抑制することを確認した。293T細胞をPCBP2、ITCH、またはUbプラスミドで293T細胞を形質転換させ、さまざまな濃度のTat‐Epep(20、50、及び100μM)を処理した後、抗MAVS抗体を用いて、内因性MAVSを沈降させた。沈降物は抗K48Ubで免疫ブロットした。EPRSアミノ酸168‐196及びTatを融合して合成したペプチド(Tat‐Epep)配列を示した。 PCBP2で形質転換させた293T細胞に、さまざまな濃度のTat‐Epep(20、50、及び100μM)を処理し、内因性MAVSのレベルを確認した。グラフは、アクチンに対して標準化させたMAVSタンパク質バンドの強度を示す。 VSVに感染されたRAW264.7細胞でTat‐EpepがIFN‐β及びIL‐6の分泌を濃度依存的な方式で促進させることを確認した。Con、陰性対照群にPBSを処理したVSV感染RAW264.7細胞。 VSV‐GFPに感染されたRAW264.7細胞を100μMTatまたはTat‐Epeで処理した代表的な蛍光画像を示した。 VSVに感染されたRAW264.7細胞でTat‐EpepがVSV力価を用量依存的に減少させることを確認した。Con、陰性対照群にPBSを処理したVSV感染RAW264.7細胞。 HSV‐GFP(MOI=1)に12時間感染されたRAW264.7細胞でTat‐Epepがウイルス複製に有意な効果がないことを確認した。Conは、陰性対照群であり、PBSを処理したHSV‐GFP感染RAW264.7細胞である。 HSV‐GFP(MOI=1)に12時間感染されたRAW264.7細胞でTat‐EpepがIFN‐βの分泌に有意な効果がないことを確認した。Conは、陰性対照群であり、PBSを処理したHSV‐GFP感染RAW264.7細胞である。 HSV‐GFP(MOI=1)に12時間感染されたRAW264.7細胞でTat‐EpepがIL‐6の分泌に有意な効果がないことを確認した。Conは、陰性対照群であり、PBSを処理したHSV‐GFP感染RAW264.7細胞である。 さまざまな濃度のTat‐Epepを12時間処理した後、MTS分析でRAW264.7細胞の生存性を測定した。Conは、陽性対照群であり、溶解性界面活性剤(digitonin、30μg/ml)を293T細胞に処理したものである。 Tat‐Epepを12または24時間処理した後、293T細胞の生存性を確認した。Conは、陽性対照群であり、溶解性界面活性剤(digitonin、30μg/ml)を293T細胞に処理したものである。 VSVインディアナ(2×10pfu/mouse)を静脈投与し、4日目からTat‐tag(1.05μM/kg)またはTat‐Epep(0.53μM/kgまたは11.05μM/kg)を3日間毎日腹腔注射したマウスの脳組織(n=7)でウイルス量をプラーク分析で確認した結果である。 NewTat‐EpepのVSVウイルス量の減少効果を確認した。 VSV‐GFPに感染されたRAW264.7細胞にTat‐Epepを処理する時にウイルス増殖が減少することを示し、NewTat‐Epepはウイルス増殖抑制能力がより強いことを蛍光写真で示した。 Tat‐EpepまたはNewTat‐Epep処理によるIFN‐βの分泌を確認した。 Tat‐EpepまたはNewTat‐Epep処理によるIL‐6の分泌を確認した。
本発明者らはMSC(Multi-tRNA synthetase complex)の構成要素であるEPRS(glutamyl-prolyl-tRNA synthetase)タンパク質またはその断片が抗RNAウイルス活性を有することを確認した。具体的に、本発明のEPRSタンパク質またはその断片は、汎用的な抗RNAウイルス活性において重要な役割をするMAVSを分解するPCBP2にMAVSと競争的に結合することにより、MAVSの分解を抑制するところ、前記タンパク質またはその断片を含む組成物を用いてRNAウイルス感染疾患を汎用的かつ効果的に治療することができる。
これを具体的に説明すると次のとおりである。一方、本発明で開示された各説明及び実施形態は、それぞれの他の説明及び実施形態にも適用することができる。すなわち、本発明で開示されたさまざまな要素のすべての組み合わせが本発明の範囲に属する。また、下記に記述された具体的な叙述によって、本発明の範囲が制限されると見ることができない。
前記目的を達成するための本発明の一つの態様は、EPRS(glutamyl-prolyl-tRNA synthetase)タンパク質またはその断片を含む抗RNAウイルス用組成物である。具体的に、前記EPRSタンパク質の断片は、配列番号63の168〜186番目のアミノ酸配列を含むものであってもよく、より具体的には、配列番号63の1〜196番目のアミノ酸配列、1〜269番目のアミノ酸配列、1〜457番目のアミノ酸配列、1〜506番目のアミノ酸配列、1〜682番目のアミノ酸配列、168〜506番目のアミノ酸配列、168〜269番目のアミノ酸配列及び168〜196番目のアミノ酸配列からなる群から選択されたアミノ酸配列を含むものであってもよいが、これに制限されるものではない。
また、前記EPRSの断片は、配列番号63の168〜186番目のアミノ酸配列と少なくとも80%以上、90%以上、95%以上、97%以上、または99%以上の相同性を有するポリペプチドを含んでもよい。例えば、このような相同性を有しながら前記配列番号63の168〜186番目のアミノ酸配列からなるタンパク質と相応する効能を示すアミノ酸配列であれば、一部の配列が欠失、変形、置換、または付加されたアミノ酸配列を有しても、本発明の範囲内に含まれることは自明である。
また、配列番号63の168〜186番目のアミノ酸配列からなるポリペプチドと相応する活性を有する場合は、アミノ酸配列の前後の無意味な配列を追加または自然に発生しうる突然変異、あるいはそのサイレント突然変異(silent mutation)を除くものではない。
本発明において、用語、「相同性」は、与えられたアミノ酸配列または塩基配列と一致する程度を意味し、パーセンテージで表示されてもよい。本明細書で、与えられたアミノ酸配列または塩基配列と同一または類似の活性を有するその相同性配列が「%相同性」と示される。例えば、スコア(score)、同一性(identity)及び類似性(similarity)などのパラメータ(parameter)を計算するための標準ソフトウェア、具体的にBLAST2.0を用いたり、定義された厳格な条件下でサザン混成化実験によって配列を比較することにより確認することができ、定義されている適切な混成化条件は、該技術の範囲内であり、当業者によく知られている方法(例えば、J. Sambrook et al., Molecular Cloning, A Laboratory Manual, 2nd Edition, Cold Spring Harbor Laboratory press, Cold Spring Harbor, New York, 1989; F.M. Ausubel et al., Current Protocols in Molecular Biology, John Wiley & Sons, Inc., New York)で決定されてもよい。
本発明において、用語、「RNAウイルス」は、RNAを遺伝物質として用いるすべてのウイルスを意味する。例えば、前記RNAウイルスは、アマルガウイルス科(Amalgaviridae)、ビルナウイルス科(Birnaviridae)、クリソウイルス科(Chrysoviridae)、シストウイルス科(Cystoviridae)、エンドルナウイルス科(Endornaviridae)、ハイポウイルス科(Hypoviridae)、メガビルナウイルス科(Megabirnaviridae)、パルティティウイルス科(Partitiviridae)、ピコビルナウイルス科(Picobirnaviridae)、レオウイルス科(Reoviridae)、トチウイルス科(Totiviridae)、クアドリウイルス科(Quadriviridae)、アルテリウイルス科(Arteriviridae)、コロナウイルス科(Coronaviridae)、メソニウイルス科(Mesoniviridae)、ロニウイルス科(Roniviridae)、ジシストロウイルス科(Dicistroviridae)、イフラウイルス科(Iflaviridae)、マルナウイルス科(Marnaviridae)、ピコルナウイルス科(Picornaviridae)、セコウイルス科(Secoviridae)、アルファフレキシウイルス科(Alphaflexiviridae)、ベータフレキシウイルス科(Betaflexiviridae)、ガンマフレキシウイルス科(Gammaflexiviridae)、チモウイルス科(Tymoviridae)、ボルナウイルス科(Bornaviridae)、フィロウイルス科(Filoviridae)、パラミクソウイルス科(Paramyxoviridae)、ラブドウイルス科(Rhabdoviridae)、ニヤミウイルス科(Nyamiviridae)、カリシウイルス科(Caliciviridae)、フラビウイルス科(Flaviviridae )、ルテオウイルス科(Luteoviridae)、トガウイルス科(Togaviridae)、ニューモウイルス科(Pneumoviridae)、アレナウイルス科(Arenaviridae)、デルタウイルス(Deltavirus)、及びオルソミクソウイルス科(Orthomyxoviridae)ウイルスであってもよいが、これらに制限されるものではない。
本発明のEPRSタンパク質またはその断片は、PCBP2に結合してPCBP2とMAVSの間の結合を防ぐことにより、MAVSの分解を抑制する効果を有する。したがって、分解されないMAVSは、そのシグナル伝達経路が活性化され、ウイルス感染に対する先天性免疫反応を活性化させることができる。
本発明において、用語、「EPRS(glutamyl-prolyl-tRNA synthetase)タンパク質」は、ARS(aminoacyl-tRNA synthetase)の一つであり、MSC(multi-tRNA synthetase complex)と呼ばれる細胞質保存システムの一構成要素としてタンパク質合成に関与することが知られている。しかし、EPRSの抗ウイルス活性については全く報告されていない。
EPRSタンパク質またはこれをコードする遺伝子情報は、NCBI(National Center for Biotechnology Information)のGenBankのような公知のデータベースから取得することができ、例えば、配列番号63のアミノ酸配列を有するものであってもよいが、これらに制限されるものではない。
本発明において、用語、「MAVS(Mitochondrial antiviral-signaling protein)」は、RIG‐I及びMDA5がRNAウイルスを認識した後に活性化され、さまざまな種類の抗ウイルス性サイトカインを作る重要シグナル伝達のタンパク質をいう。MAVSがない場合、RNAウイルス感染に非常に脆弱になることが知られている。したがって、本発明のEPRSタンパク質またはその断片は、MAVSの分解を防ぎ、そのシグナル伝達を活性化させることができるため、EPRSタンパク質またはその断片を含む組成物は、すべてのRNAウイルスに対して抗ウイルス活性を誘導することができる。
本発明の具体的な一実施例では、EPRSノックダウン細胞でPR8及びVSV感染によるウイルス複製が増加し(図5及び図6)、ウイルス感染またはウイルス遺伝子の形態を模倣したpoly(I:C)処理に対して抗ウイルス性サイトカイン生産が減少することを確認した(図8及び図9)。一方、EPRSを過発現させた細胞でPR8及びVSV感染によるウイルス複製が著しく減少し、IFN‐β、及びIL‐6の生産が増加することを確認した(図22〜図27)。また、EPRS+/-マウスでは、ウイルス感染の時、EPRS+/+マウスに比べて、ウイルス力価が高く、血清にIFN‐β、IFN‐α及びIL‐6レベルが低いことを確認して(図40〜図43)、EPRSがRNAウイルスに対する先天性免疫反応を陽性調節しうることを確認した。
本発明の他の具体的な一実施例では、さまざまなサイズのEPRS断片を用いて、免疫反応の調節に関与しているEPRS領域を確認し、これにより、EPRSL1領域(配列番号63の168〜196番目のアミノ酸)、より具体的には、配列番号63の168〜186番目のアミノ酸配列がEPRSの抗ウイルス活性に必須であることを確認した(図75〜図81)。結論として、EPRSタンパク質、または前記配列番号63の168〜186番目のアミノ酸配列を含むEPRSタンパク質の断片は、抗RNAウイルス活性を有するので、抗RNAウイルス用組成物として有用に用いられることが分かった。
前記EPRSタンパク質またはその断片は、細胞透過性を高めるためにさらに細胞透過性ペプチド(cell-penetrating peptide)と融合した形態で用いられてもよい。すなわち、前記EPRSタンパク質またはその断片は、N‐末端、C‐末端、または両末端に細胞透過性ペプチドをさらに含んでもよい。このとき、EPRSタンパク質またはその断片、及び細胞透過性ペプチドの間にリンカーをさらに含んでもよく、これは当業者によって適切に行われてもよい。
本発明において、用語、「細胞透過性ペプチド」は、ナノ粒子、化合物、DNA、タンパク質などのさまざまな物質の細胞内摂取/吸収を促進させうる短いペプチドをいう。具体的に、前記細胞透過性ペプチドは、Tat、アンテナペディア(Antennapedia)、トランスポータン(Transportan)、VP22、Hph‐1、R11(R9)、シグナル配列ベースのペプチド、または両親媒性(Amphipathic)ペプチドであってもよいが、これらに制限されるものではなく、本発明のEPRSタンパク質またはその断片の細胞内移動を促進させることができる細胞透過性ペプチドであれば、当業者によって適切に選択されてもよい。さらに、当業者は、用いられる細胞透過性ペプチドの種類に応じてこれを適用するために、本発明のEPRSタンパク質またはその断片を適切に変形して用いてもよい。すなわち、本発明のEPRSタンパク質またはその断片は、本発明で提示するアミノ酸配列のみに限定されるものではなく、当業者に自明な範囲内で、細胞透過性ペプチドの適用に適切な形態でアミノ酸配列を付加/置換/除去して用いてもよい。
本発明の具体的な一実施例では、HIV‐1 Tatタンパク質変換ドメイン(transduction domain、配列番号60)とEPRSL1ペプチド(配列番号63の168〜196)を融合した融合ペプチド(Tat‐Epep:配列番号61)の抗ウイルス活性を調査した結果(図99〜図109)、試験管内及び生体内で前記Tat‐EpepがMAVS生存性及びI型IFNの生産を増加させて、ウイルスに感染されたマウスの脳組織におけるウイルス力価を著しく削減させる、優れた抗RNAウイルス活性を有することを確認した。
本発明の他の具体的な一実施例では、HIV‐1 Tatタンパク質変換ドメイン(transduction domain、配列番号60)とEPRSL1ペプチド断片(配列番号63の168〜186)を融合した融合ペプチド(NewTat‐Epep:配列番号64)が、前記Tat‐Epepよりも著しくウイルスに感染されたマウスの脳におけるウイルス力価を減少させ、抗ウイルスサイトカインであるIFN‐β、及びIL‐6の分泌を促進させることを確認した(図110〜図113)。
また、本発明のEPRSタンパク質またはその断片は、細胞透過性を高めるため、細胞にタンパク質を伝達したり、伝達効率を増進させることができる当業界に公知された試薬と一緒に用いられてもよい。前記試薬は、例えば、Chariot(Active motif, Cat. 30025)などを用いてもよいが、本発明のEPRSタンパク質またはその断片を細胞に伝達させることができる限り、前記の例に特に制限されるものではない。
本発明の抗RNAウイルス用組成物は、薬学組成物、医薬部外品組成物、食品組成物、化粧料組成物または飼料組成物として用いられてもよいが、これらに制限されるものではない。
本発明の他の一つの態様は、抗RNAウイルス活性を有するEPRSタンパク質またはその断片であって、前記EPRSタンパク質の断片は、配列番号63の168〜186番目のアミノ酸配列を含むものである、タンパク質またはその断片である。
本発明のもう一つの態様は、前記タンパク質またはその断片をコードするポリヌクレオチドである。
本発明のもう一つの態様は、前記ポリヌクレオチドを含むベクターである。
本発明のもう一つの態様は、前記ポリヌクレオチドまたは前記ベクターを含む、形質転換体である。
抗RNAウイルス活性を有するEPRSタンパク質またはその断片は、前記で説明したとおりである。
前記ポリヌクレオチドは、本発明のEPRSタンパク質またはその断片をコードするヌクレオチド配列、またはそれと少なくとも80%以上、90%以上、95%以上、97%以上、または99%以上の相同性を有するヌクレオチド配列を有するものであってもよく、それから翻訳されたポリペプチド(すなわち、タンパク質もしくはその断片)が本発明のEPRSタンパク質またはその断片と相応する効能を示すものであれば、ヌクレオチド配列の5’及び/または3’末端に無意味な配列の付加、あるいは一部の配列の欠失、変形、置換された場合も、本発明の範囲に含まれてもよい。前記ポリヌクレオチドは、公知のプロモーター配列と作動可能に連結された発現カセット、または前記ポリヌクレオチドを含むベクターの形態で用いられてもよく、ポリヌクレオチド、発現カセットまたはベクターの製造は、当業者が公知の方法を介して適切に行ってもよい。プロモーター及びベクターの種類は、特に制限されず、目的に応じて当業者が適宜選択してもよい。また、前記ポリヌクレオチド、発現カセットまたはベクターを宿主細胞に形質転換させて形質転換体を製造して用いてもよく、このときの形質転換方法も当業者が公知の方法を制限なく用いてもよい。前記形質転換体は、本発明のEPRSタンパク質またはその断片を発現させようとする対象体であって、微生物、植物または動物であってもよく、ヒトを除いたものであってもよいが、これに制限されるものではない。
当業者は、さまざまな目的で前記EPRSタンパク質またはその断片を適用/生産するためにこれをコードするポリヌクレオチドを含むベクター、あるいは前記ベクターを含む形質転換体を製造して用いてもよい。例えば、前記ポリヌクレオチドあるいは前記ベクターを用いて直接的にRNAウイルス感染疾患に対する治療用途で用いてもよく、これを含んでEPRSタンパク質もしくはその断片を発現する形質転換体を用いて前記タンパク質またはその断片を生産したり、治療目的で用いてもよいが、これに制限されるものではない。
本発明のもう一つの態様は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または治療用薬学組成物である。
抗RNAウイルス用組成物については、前記で説明したとおりである。
本発明において、用語、「RNAウイルス感染疾患」は、RNAウイルスの感染によって宿主に発生しうるすべての疾患を意味するもので、本発明のEPRSタンパク質またはその断片を用いて、前記疾患の予防及び/または治療効果を期待することができる。例えば、RNAウイルス感染疾患は、インフルエンザ(influenza)、急性灰白髄炎(poliomyelitis anterior acuta)、無菌性髄膜炎(aseptic meningitis)、手足口病(hand-foot-mouth disease)、ヘルパンギーナ(herpangina)、急性出血性結膜炎(acute hemorrhagic conjunctivitis)、流行性胸膜炎(epidemic pleurodynia)、心膜炎(pericarditis)、心筋炎(myocarditis)、乳幼児の白色硬性下痢症、風疹(rubella)、先天性風疹症候群(Congenital rubella syndrome)、黄熱病(yellow fever )、デング熱(Dengue fever)、デング出血熱(Dengue hemorrhagic fever)、日本脳炎(Japanese encephalitis)、単純ヘルペス脳炎(Herpes simplex encephalitis)、流行性耳下腺炎(epidemic parotitis)、麻疹(measles)、狂犬病(rabies)、マールブルグ病(Marburg disease)、エボラ出血熱(Ebola hemorrhagic fever)、腎症候性出血熱(Hemorrhagic fever with renal syndrome)、ハンタウイルス肺症候群(HPS)、クリミアコンゴ出血熱(Congo-Crimean hemorrhagic fever)、AIDS(Acquired immunodeficiency disease)、成人T細胞白血病(Adult T-cell leukemia)、HTLV‐1関連脊髄症(HTLV-1 associated myelopathy)、HTLV‐1ブドウ膜炎(HTLV-1 uveitis )及びラッサ熱(Lassa fever)からなる群から選択された一つ以上であってもよいが、これに制限されるものではなく、RNAウイルスによって引き起こされる疾患及び症状は、すべて本発明の範囲に含まれる。
本発明において、用語、「予防」は、本発明に係る組成物の投与で前記RNAウイルス感染疾患の発病を抑制または遅延させるすべての行為をいい、「治療」は、本発明に係る組成物の投与で前記RNAウイルス感染疾患の症状が好転したり、有利に変更されるすべての行為をいう。
前記RNAウイルス感染疾患の予防または治療は、本発明のEPRSタンパク質またはその断片がPCBP2タンパク質に結合することにより達成されることであってもよく、さらにMAVSのシグナル伝達が活性化されることによるものであってもよい。したがって、本発明のEPRSタンパク質またはその断片を含む組成物は、前述したように、抗RNAウイルス活性を有するので、RNA感染疾患の予防または治療用組成物として有用に用いられる。
本発明の薬学組成物は、薬学組成物の製造に通常に用いられる適切な担体、賦形剤または希釈剤をさらに含んでもよい。薬学的に許容可能な担体を含む組成物は、経口または非経口のさまざまな剤形であってもよく、具体的に、非経口剤形であってもよいが、これに制限されるものではない。製剤化する場合は、通常用いられる充填剤、増量剤、結合剤、湿潤剤、崩解剤、界面活性剤などの希釈剤または賦形剤を用いて調製されてもよい。経口投与のための固形製剤には、錠剤丸剤、散剤、顆粒剤、カプセル剤などが含まれてもよく、これらの固形製剤は、一つ以上の化合物に少なくとも一つ以上の賦形剤、例えば、澱粉、炭酸カルシウム、スクロース(sucrose)またはラクトース(lactose)、ゼラチンなどを混ぜて調剤してもよい。また、単純な賦形剤以外にステアリン酸マグネシウム、タルクなどの潤滑剤も用いられてもよい。経口投与のための液状製剤としては、懸濁剤、内用液剤、乳剤、シロップ剤などが該当するが、よく用いられる単純希釈剤である水、リキッドパラフィンの他にさまざまな賦形剤、例えば、湿潤剤、甘味剤、芳香剤、保存剤などが含まれてもよい。非経口投与のための製剤には、滅菌された水溶液、非水性溶剤、懸濁剤、乳剤、凍結乾燥製剤、坐剤が含まれてもよい。非水性溶剤、懸濁溶剤としては、プロピレングリコール(propylene glycol)、ポリエチレングリコール、オリーブオイルのような植物油、オレイン酸エチルのような注射可能なエステルなどが用いられてもよい。坐剤の基剤としては、ウイテプゾール(witepsol)、マクロゴール、ツイン(tween)61、カカオ脂、ラウリン脂、グリセロゼラチンなどが用いられてもよい。
また、本発明の薬学組成物は、これに制限されないが、錠剤、丸剤、散剤、顆粒剤、カプセル剤、懸濁剤、内用液剤、乳剤、シロップ剤、滅菌された水溶液、非水性溶剤、懸濁剤、乳剤、凍結乾燥製剤及び坐剤からなる群から選択されるいずれか1つの剤形を有してもよい。
前記本発明の薬学組成物は薬学的に有効な量で投与する。
本発明において、用語、「投与」は、ある適切な方法で対象に本発明の薬学組成物を導入することをいい、投与経路は目的組織に到達することができる限り、経口または非経口の多様な経路を介して投与されてもよく、具体的に、非経口で投与されてもよいが、これに制限されるものではない。
前記薬学組成物は、目的または必要に応じて当業界で用いられる通常の方法、投与経路、投与量に応じて適宜個体に投与されてもよい。投与経路の例としては、経口、非経口、皮下、腹腔内、肺内、及び鼻腔内に投与されてもよく、非経口注入には、筋肉内、静脈内、動脈内、腹腔内または皮下投与が含まれる。また、当業界に公知された方法に応じて適切な投与量及び投与回数が選択されてもよく、実際に投与される本発明の薬学組成物の量及び投与回数は、治療しようとする症状の種類、投与経路、性別、健康状態、食餌、個体の年齢及び体重、及び疾患の重症度のようなさまざまな因子によって適切に決定されてもよい。
本発明において、用語、「薬学的に有効な量」は、医学的用途に適用可能な合理的な恩恵/リスク比であり、血管透過性の増加を抑制または緩和するのに十分な量を意味し、有効容量レベルは、個体の種類及び重症度、年齢、性別、薬物の活性、薬物に対する敏感度、投与時間、投与経路、及び排出比率、治療期間、同時に使用される薬物を含む要素及びその他医学分野でよく知られている要素に応じて決定されてもよい。本発明の組成物は、個別治療薬で投与するか、他の治療薬と併用して投与されてもよく、従来の治療薬とは順次的または同時に投与されてもよい。そして、単一または多重投与されてもよい。前記要素をすべて考慮して副作用のない最小限の量で最大の効果を得ることができる量を投与することが重要であり、当業者によって容易に決定されてもよい。
本発明のもう一つの態様は、前記抗RNAウイルス用組成物を個体に投与する段階を含む、RNAウイルス感染疾患の予防または治療方法である。
抗RNAウイルス用組成物及びRNAウイルス感染疾患の予防または治療は、前記説明したとおりである。
本発明において、用語、「個体」は、本発明のRNAウイルス感染疾患が発症したり、発症しうるヒトを含むすべての動物を意味する。また、ヒト以外の動物を意味してもよいが、これに制限されるものではない。本発明の抗RNAウイルス用組成物を個体に投与することにより、RNAウイルス感染疾患を予防または治療することができる。
本発明のもう一つの態様は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用医薬部外品組成物を提供する。
抗RNAウイルス用組成物、RNAウイルス感染疾患及び予防については、前記説明したとおりである。
本発明の用語、「改善」は、本発明の組成物の投与により、RNAウイルス感染疾患が好転または有利に変更されるすべての行為を意味する。
本発明の用語、「医薬部外品」は、ヒトや動物の疾病を治療、軽減、処置または予防する目的で用いられる繊維、ゴム製品、またはこれと類似したもの、人体に対する作用が弱いか、人体に直接作用することなく、器具または機械ではないものとこれに類似したもの、感染予防のために殺菌、殺虫及びこれらに類似する用途に用いられる製剤のいずれかに該当する物品であって、ヒトや動物の疾病を診断、治療、軽減、処置または予防する目的で使用する物品のうち器具、機械または装置がないもの及びヒトや動物の構造と機能に薬理学的影響を与える目的で使用する物品のうち器具、機械または装置がないものを除いた物品を意味し、具体的に、皮膚外用剤または個人衛生用品であってもよいが、これに制限されない。
本発明の抗RNAウイルス用組成物をRNAウイルス感染疾患の予防または改善の目的で医薬部外品組成物に添加する場合、前記抗RNAウイルス用組成物をそのまま添加したり、他の医薬部外品の成分と一緒に用いてもよく、通常の方法に応じて適宜使用してもよい。有効成分の混合量は、使用目的に応じて適切に決定してもよい。
前記皮膚外用剤は、特にこれに制限されないが、例えば、軟膏剤、ローション剤、スプレー剤、パッチ剤、クリーム剤、散剤、懸濁剤、ゲル剤またはゲルの形態で製造されて用いられてもよい。前記個人衛生用品には特にこれに制限されないが、具体的には、石鹸、化粧品、ウェットティッシュ、ティッシュペーパー、シャンプー、スキンクリーム、顔クリーム、歯磨き粉、口紅、日焼け止めローション、または洗浄ゲルであってもよい。また、本発明の医薬部外品組成物の別の例として、消毒清潔剤、シャワーフォーム、ウェットティッシュ、洗剤石鹸、ハンドソープ、または軟膏剤がある。
本発明のもう一つの態様は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用食品組成物を提供する。
抗RNAウイルス用組成物、RNAウイルス感染疾患、予防、改善については、前記説明したとおりである。
本発明の用語、「食品」は、肉類、ソーセージ、パン、チョコレート、キャンディ類、スナック類、菓子類、ピザ、ラーメン、その他麺類、ガム類、アイスクリーム類を含む酪農製品、各種スープ、飲料、お茶、ドリンク剤、アルコール飲料、ビタミン複合剤、健康機能食品及び健康食品などがあり、通常の意味での食品のすべてを含む。
前記健康機能(性)食品(health functional food)は、特定保健用食品(food for special health use、FoSHU)と同じ用語であり、栄養供給のほか、生体調節機能が効率的に示されるよう加工された医学、医療効果が高い食品を意味する。ここで、「機能(性)」は、人体の構造及び機能に対して栄養素を調整したり、生理学的作用のような保健の用途に有用な効果を得ることを意味する。前記健康食品(health food)は、一般食品に比べて積極的な健康維持や増進効果を有する食品を意味し、健康補助食品(health supplement food)は、健康補助の目的の食品を意味する。場合によっては、健康機能食品、健康食品、健康補助食品の用語は、混用されてもよい。
具体的に、前記健康機能食品は本発明の抗RNAウイルス用組成物を飲料、お茶類、香辛料、ガム、菓子類などの食品素材に添加したり、カプセル化、粉末化、懸濁液などで製造した食品であり、これを摂取する場合、健康上の特定効果をもたらすことを意味するが、一般医薬品とは異なり、食品を原料として薬の長期服用時に発生しうる副作用がないという長点がある。
本発明の食品は、当業界で一般的に使用される方法によって製造されてもよく、当業界で一般的に添加する原料及び成分を添加して製造してもよい。また、前記食品組成物は、食品として認められる剤形であれば、さまざまな形態の剤形で制限なく製造されてもよい。
また、前記食品組成物は、生理学的に許容可能な担体をさらに含んでもよいが、担体の種類は特に制限されず、当該技術分野で一般的に用いられる担体であれば、いかなるものでも用いてもよい。
また、前記食品組成物は、食品組成物に通常用いられて、香り、味、視覚などを向上させうる追加の成分を含んでもよい。例えば、ビタミンA、C、D、E、B1、B2、B6、B12、ナイアシン(niacin)、ビオチン(biotin)、葉酸(folate)、パントテン酸(panthotenic acid)などを含んでもよい。また、亜鉛(Zn)、鉄(Fe)、カルシウム(Ca)、クロム(Cr)、マグネシウム(Mg)、マンガン(Mn)、銅(Cu)、クロム(Cr)などのミネラル;及びリジン、トリプトファン、システイン、バリンなどのアミノ酸を含んでもよい。
また、前記食品組成物は、防腐剤(ソルビン酸カリウム、安息香酸ナトリウム、サリチル酸、デヒドロ酢酸ナトリウムなど)、殺菌剤(さらし粉と高度さらし粉、次亜塩素酸ナトリウムなど)、酸化防止剤(ブチルヒドロキシアニソール(BHA)、ブチルヒドロキシトルエン(BHT)など)、着色剤(タール色素など)、発色剤(亜室酸ナトリウム、亜硝酸ナトリウムなど)、漂白剤(亜硫酸ナトリウム)、調味料(MSGグルタミン酸ナトリウムなど)、甘味料(ズルチン、シクラメート、サッカリン、ナトリウムなど)、香料(バニリン、ラクトン類など)、膨張剤(ミョウバン、D‐酒石酸水素カリウムなど)、強化剤、乳化剤、増粘剤(糊料)、皮膜剤、ガム基礎剤、泡抑制剤、溶剤、改良剤などの食品添加物(food additives)を含んでもよい。前記添加物は、食品の種類に応じて選別して適切な量で用いてもよい。
本発明のもう一つの態様は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用化粧料組成物を提供する。
抗RNAウイルス用組成物、RNAウイルス感染疾患、予防、改善については、前記説明したとおりである。
前記化粧料組成物の剤形は、溶液、外用軟膏、クリーム、フォーム、栄養化粧水、柔軟化粧水、香水、パック、柔軟水、乳液、メイクアップベース、エッセンス、石鹸、液体洗浄料、入浴剤、日焼け止めクリーム、サンオイル、懸濁液、乳濁液、ペースト、ゲル、ローション、パウダー、石鹸、界面活性剤含有クレンジング、オイル、粉末ファンデーション、乳濁液ファンデーション、ワックスファンデーション、パッチまたはスプレーであってもよいが、これに制限されるものではない。
前記化粧料組成物は、一般的な皮膚化粧料に配合される化粧品学的に許容可能な担体を1種以上さらに含んでもよく、通常の成分として、例えば、油分、水、界面活性剤、保湿剤、低級アルコール、増粘剤、キレート剤、無機塩類、色素、酸化防止剤、殺菌剤、防腐剤、香料などを適切に配合してもよいが、これに制限されるものではない。
前記化粧品学的に許容可能な担体は、前記化粧料組成物の剤形に応じてさまざまである。
前記剤形は、軟膏、ペースト、クリーム、またはゲルの場合には、担体成分として、動物性油、植物性油、ワックス、パラフィン、デンプン、トラカント、セルロース誘導体、ポリエチレングリコール、シリコン、ベントナイト、シリカ、タルク、または酸化亜鉛などが用いられてもよいが、これに制限されるものではない。これらは単独で用いても、2種以上混合して用いてもよい。
前記剤形がパウダーまたはスプレーである場合には、担体成分として、ラクトース、タルク、シリカ、水酸化アルミニウム、ケイ酸カルシウム、ポリアミドパウダーなどが用いられてもよく、特にスプレーの場合には、さらにクロロフルオロ炭化水素、プロパン/ブタンまたはジメチルエーテルのような推進剤を含んでもよいが、これに制限されるものではない。これらは単独で用いても、2種以上混合して用いてもよい。
前記剤形が溶液または乳濁液である場合には、担体成分として、溶媒、溶解化剤または油濁化剤などが用いられてもよく、例えば、水、エタノール、イソプロパノール、エチルカーボネート、エチルアセテート、ベンジルアルコール、ベンジルベンゾエート、プロピレングリコール、1,3‐ブチルグリコールオイルなどが用いられてもよく、特に、綿実油、ピーナッツ油、コーン胚種オイル、オリーブオイル、ヒマシ油、及びごま油、グリセロール脂肪族エステル、ポリエチレングリコール、またはソルビタンの脂肪酸エステルが用いられてもよいが、これに制限されるものではない。これらは単独で用いても、2種以上混合して用いてもよい。
前記剤形が懸濁液である場合には、担体成分として、水、エタノールまたはプロピレングリコールのような液状の希釈剤、エトキシル化イソステアリルアルコール、ポリオキシエチレンソルビトールエステル及びポリオキシエチレンソルビタンエステルのような懸濁剤、微小結晶性セルロース、メタ水酸化アルミニウム、ベントナイト、アガーまたはトラカントなどが用いられてもよいが、これに制限されるものではない。これらは単独で用いたり、2種以上混合して用いてもよい。
本発明の剤形が石鹸である場合には、担体成分として、脂肪酸のアルカリ金属塩、脂肪酸ヘミエステル塩、脂肪酸タンパク質加水分解物、イセチオン酸、ラノリン誘導体、脂肪族アルコール、植物油、グリセロール、糖などが用いられてもよいが、これに制限されるものではない。これらは単独で用いたり、2種以上混合して用いてもよい。
本発明のもう一つの態様は、前記抗RNAウイルス用組成物を含む、RNAウイルス感染疾患の予防または改善用飼料組成物を提供する。
抗RNAウイルス用組成物、RNAウイルス感染疾患、予防、改善については、前記説明したとおりである。
本発明の用語、「飼料」は、動物が食べて、摂取し、消化させるための、またはこれに適した任意の天然または人工規定食、一食などまたは前記一食の成分として前記抗RNAウイルス用組成物を有効成分として含む飼料は、当業界の公知のさまざまな形態の飼料に製造可能であり、好ましくは濃厚飼料、粗飼料及び/または特殊飼料が含まれてもよい。
本発明のもう一つの態様は、前記抗RNAウイルス用組成物を投与する段階を含む、MAVSタンパク質分解の予防または抑制方法を提供する。
抗RNAウイルス用組成物は、前記説明したとおりである。
以下、本発明を実施例を通じてより詳細に説明する。しかし、これらの実施例は、本発明を例示的に説明するためのもので、本発明の範囲がこれらの実施例に限定されるものではない。
実施例1:細胞培養及び形質転換str
HEK293T、HeLa、MDCK、Vero及びRAW264.7細胞は10%FBS(Fetal bovine serum、Gibco-BRL)及び1%ペニシリン‐Strepマイシン(Gibco-BRL)を含有するDMEM培地で培養し、U937細胞は、10%FBS及び1%ペニシリン‐Strepマイシンを含有するRPMI1640培地(Gibco-BRL)で培養した。前記細胞は、すべてATCC(American Type Culture Collection)から分譲された。
BMDM(Bone marrow derived macrophage)は5〜6週齢のマウスから分離し、赤血球はACK(ammonium-chloride-potassium)溶解バッファー(Gibco-BRL)で溶解させた。次に収得したBMDMは、10%FBS、10%L929細胞‐CM(conditioned medium)及びGM‐CSF(R&D Systems)を含有するDMEMで培養した。培地は2日ごとに新しい完全培地に交換し、培養7日目の細胞を実験に使用した。
安定的なEPRSノックダウンRAW264.7細胞株は、shRNA(kindly provided by Dr. Jae U. Jung, University of Southern California)を処理して少なくとも2週間の間に2μg/mlのピューロマイシンで選別して製作した。
pIRESまたはpIRES‐EPRS‐FLAGを安定的に発現するRAW264.7細胞株は、対応するDNAコンストラクトで形質転換させて製作し、1μg/mlのピューロマイシンを含有するDMEMで培養した。
HEK293T細胞は、X‐tremeGENEHPDNA形質転換試薬(Roche)を用いてDNAプラスミドコンストラクトで形質転換させた。U937、RAW264.7及びBMDM細胞はnucleotransfector(Lonza, Cologne AG, Germany)で形質転換させ、すぐにOpti‐MEM培地(Gibco-BRL)で6時間培養した後、24時間、10%FBSを含有する完全培地で培養した。
実施例2:マウス及びウイルス感染
C57BL/6EPRStm1bヘテロ接合ノックアウトマウスは、TorontoCenterforPhenogenomics(Ontario, Canada)から分譲されて、水と飼料を自由に提供して22±2℃で12時間、明/暗サイクルの特異病原菌がない施設で飼育した。マウスの子は次のプライマーを用いてPCRで遺伝子型を確認した。
A:5’‐TACTGTGCTGAATGAAAAGTGCC‐3’(配列番号1)及びB:5’‐GGTAGAAGTGCTAAGTAGGATGAGG‐3’(配列番号2)(218bpWTバンドに特異的);C:5’‐CCATTACCAGTTGGTCTGGTGTC‐3’(配列番号3)及びD:5’‐TGCCTGTGACCACCAATAAGAAAGCC‐3’(配列番号4)(462bp変異バンドに特異的)
すべてのマウスはCOで窒息させて犠牲をさせた。すべての動物実験は、韓国生命工学研究院の実験動物運営委員会で承認され、実験動物の管理と使用に関する指針(米国国立衛生研究所から発刊)に基づいて実行した。
ウイルス感染実験のために、6〜7週齢のマウスの尾にVSV-Indiana(2×10pfu/マウス)またはVSV‐GFP(2×10pfu/マウス)を静脈内注射して感染させた。
実施例3:試薬及び抗体
免疫ブロッティング及び免疫蛍光実験では、次の1次抗体を使用した:抗EPRS(ab31531)、抗MRS(ab50793)、抗KRS(ab186196)、抗PCBP2(ab110200)、抗Ceruloplasmin(ab135649)、及び抗VSV‐G(ab1874)(Abcam);抗MAVS(human-specific; 3993, rodent-specific; 4983)、抗L13a(2765)、抗IRF3(4302)、抗phospho‐IRF3(4947)、抗STAT1(9172)、抗phospho‐STAT1(7649)、及び抗Actin‐HRP(12620)(Cell Signaling Technology);抗NSAP1(AV40641)、抗GAPDH(G9545)、及び抗FLAG(F3165)(Sigma);抗Ub(sc‐8017)、抗GFP(sc‐9996)、及び抗GST(sc‐459)(Santa Cruz Biotechnology);抗AIMP3(NMS-01-0002, Neomics, Seoul, Korea);抗V5‐HRP(46‐0708、Invitrogen);抗K48‐linkedpolyubiquitinchains(05‐1307、Millipore);抗Strep‐HRP(2-1509-001, IBA, Germany)。
Ser990に対するaffinity‐purifiedラビットポリクローナルリン酸特異的抗体は、983DGQRKDP(p)SKNQGGG996ペプチド(配列番号5)(AbClon, Seoul, Korea)を用いて生産した。リン酸特異的Ser886及びSer999抗体はDr. PaulL. Fox(Lerner Research Institute, Cleveland Clinic, CLV, USA)から提供された。ヤギ抗マウス(7076)または抗ウサギ(7074)IgG‐HRP(Cell Signaling Technology)を免疫ブロッティングの2次抗体として用いた。Alexa488結合抗マウスIgG(A11059, Invitrogen)及びAlexa594結合抗ラビットIgG(A11037, Invitrogen)は、免疫蛍光実験に2次抗体として用いた。その他の試薬及び材料としてMG132(Sigma)、ピューロマイシン(Gibco-BRL)、poly(I:C)(InvivoGen)、IFN‐γ(R&D Systems)、ジギトニン(digitonin、Sigma)、proteinA/GPLUS‐agarose(sc‐2003、Santa Cruz Biotechnology)、GluTathioneSepharose4FastFlow(17‐5132‐01、GE Healthcare)、抗FLAGM2affinitygel(A2220、Sigma)、Strep‐TactinSepharose(2-1201 -002、IBA)、Ni‐NTAagarose(30230、Qiagen)、GFP‐trap(gta‐20、ChromoTek、Germany)、及びSuperdex20010/300GLcolumn(GE Healthcare)を用いた。
実施例4:プラスミドの製作
EPRSコンストラクトは、FLAG、Strep、HisまたはGFPタグを貼り付けて製作した。具体的に、各ドメインを保有するEPRS断片をPCRで増幅させた後GFP、Strep、His、またはFLAGタグを含むベクターでサブクローニングした。EPRSのphosphomimetic変異体(S886D、S990D、S999D、S886D/S990D及びS886D/ S999D)はQuikChangesite‐directedmutagenesiskit(Stratagene、Amsterdam、Netherlands)を用いてPCRを介して製作した。位置特異的な突然変異のためのPCRプライマーは、表1に示した。
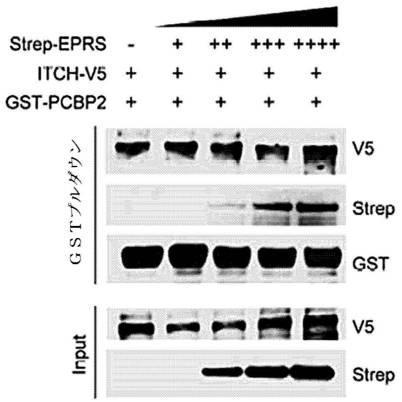
Figure 0006901564
Figure 0006901564
Figure 0006901564
Figure 0006901564
Figure 0006901564
Figure 0006901564
FLAG、Strep、HisまたはGSTがタグ付けされた全長及び断片PCBP2も製作した。MAVSは、FLAG、GSTあるいはStrepタグを含むベクターにクローニングした。ルシフェラーゼレポーター分析に用いられたこのベクターはDr.JaeU. Jung(University of Southern California)から提供された。
実施例5:RNA‐Seq解析
初代NHBE(normal human bronchial epithelial)細胞は、ScienCellResearchLaboratoriesから購入し、従来知られている方法で分化させた。断層のNHBE細胞をA/PR/8/34インフルエンザウイルス(MOI=1)で8時間もしくは24時間、感染させた。総RNAは、RNeasyRNA抽出ミニキット(Qiagen)を用いて感染した細胞から分離し、分離されたRNAの質(quality)はアガロースゲル電気泳動で確認した。
シーケンスライブラリは、TruSeqRNAsamplepreparationkitv2(Illumina)を用いて製造した。具体的に、poly‐T oligo‐attached磁石ビーズを用いて総RNAに分離したmRNAを切片化してcDNAに転換させた。前記cDNAにアダプターを連結し、これをPCRで増幅した。Paired‐endシーケンス(101×2)は、Hiseq2000(Illumina)を用いて実施した。各条件で繰り返して配列を分析した。人間の標準遺伝体配列のデータはUniversityofCaliforniaSantaCruzGenomeBrowserGateway(assembly ID:hg19)から得た。標準遺伝体インデックスはSAMtools(v. 0.1.19)及びBowtie2‐buildcomponentofBowtie2(v. 2.1.0)を用いて樹立した。Tophat2(v. 2.0)を用いて標準遺伝体をマッピングして読み出した。46,895個のRefSeq(UCSChg19)遺伝子モデルの各遺伝子に対するrpkm(reads per kilobase per million mapped reads)数は、Cufflinks(v. 2.2.1)を用いて計算し、ヒートマップ(heat map)は、Mev(v. 4.9.0)を用いて構築した。統計分析及びグラフの構築は、R(v. 3.1.0)とPYTHON(v. 2.7.6)を用いて行った。本発明で記述したRNA‐seqデータは、NCBIのGEO(Gene Expression Omnibus)にaccessioncodeGSE75699として登録された。
実施例6:ルシフェラーゼ分析
ルシフェラーゼレポータープラスミド、レニラ(renilla)ルシフェラーゼ内部対照群ベクター(phRL-TK; Promega)及び各プラスミドを含有する混合物でHEK293T細胞を形質転換させた。ルミノメーター(luminometer、Promega)と二重ルシフェラーゼレポーター分析システム(Promega)を用いて、形質転換して24時間後にレポーター遺伝子分析を実施した。データは、レニラルシフェラーゼ活性に対する相対的なホタルルシフェラーゼ活性を標準化して示した。レポーター及びレニラプラスミドのみを発現する細胞のプロモーター活性を対照群(Con)として測定した。
実施例7:RNA干渉(interference)
TransIT‐TKOtransfectionreagent(Mirus)を用いて製造プロトコルに基づいてduplexsiRNAで細胞を形質転換させた。EPRS特異的siRNA配列は前記表1に示した。非標的siRNAを対照群として用い、細胞はウイルスに露出させる前の36時間から48時間の間にsiRNAもしくは対照群を添加した条件で培養した。
実施例8:ウイルスの複製の分析
1%FBSを含有する培地で細胞を2時間ウイルスに感染させた。次に、完全培地に培地を交替して超過したウイルスを除去した。ウイルス力価は標準プラーク分析(standard plaque assay)を用いてMDCK細胞(PR8‐GFP)もしくはVero細胞(VSV‐GFP、HSV‐GFP)で確認した。マウス組織に存在するウイルスを滴定するとき、凍結‐解凍組織抽出物の均質物を用いてプラークカウントを行った。GloMax(R)Multi‐MicroplateMultimodeReader(Promega)の蛍光モジュールを用いてGFPがタグ付けされたウイルスの複製を測定した。Nikon eclipse Timicroscope fitted witha20×1.4 NA Plan‐Apochromat objective lensを用いて写真を撮った。
実施例9:ELISA
ELISAで感染した細胞培養の上清液、あるいはマウスの血清からサイトカインレベルを測定した。次のELISAキットをメーカーの指示に従って使用した:マウスまたはヒトIL‐6(BD Biosciences)、IFN‐α及びIFN‐β(PBL interferon source)、及びIFN‐γ(KOMA、Korea)。
実施例10:定量的リアルタイム(real‐time)PCR
総RNAは、RNeasy RNA extraction Mini‐Kit(Qiagen)を用いて細胞及びマウス組織から抽出した。cDNAはEnzynomix kit(Enzynomix)を用いて合成し、定量的PCRは、遺伝子特異的プライマーセット(Bioneer、Daejeon、Korea)及びSYBRGreen PCR MasterMix(Roche)を用いて行った。リアルタイムPCRは、メーカーの指示に基づいてRotor‐Gene Qinstrument(Qiagen)を用いて実施した。データはgapdh発現に対して標準化し、相対的な発現は、delta‐deltaCT方法で計算した。用いられたプライマー配列は、前記表1にまとめた。
実施例11:免疫ブロッティング分析及び免疫沈降分析
免疫ブロッティング分析のために、細胞をprotease inhibitor cocktail及びphosphatase inhibitor cocktail(Roche)を含有するRIPAバッファー(20mMTris‐HCl、pH7.4、150mMNaCl、1%NP‐40、及び1mMEDTA)に溶解させた。総細胞溶解物(50〜100μg)を用い、SDS‐PAGEを行った後、それぞれの抗体で免疫ブロッティングを実施した。
リン酸化されたタンパク質を検出するために、4℃でproteaseinhibitorcocktailを含むPhosphosafe抽出バッファー(Millipore)で細胞溶解物を製造した。
免疫沈降反応のために、細胞溶解物をproteinAビーズと一緒に4℃で1時間インキュベーションして前洗浄した。前記前洗浄された細胞溶解物をそれぞれの抗体と一緒に4℃で一晩インキュベーションした後、30μlのproteinA/GPLUSアガロースビーズと一緒に4℃で3〜4時間インキュベーションした。その後、免疫沈降物を回収し、免疫ブロッティング分析の前に溶解バッファーで5回洗浄した。
実施例12:タンパク質の精製及びサイズ排除クロマトグラフィー
His(hexahistidine)‐tagged EPRS(aa1‐732、aa1‐196、及びaa1‐168)、His‐tagged PCBP2(aa11‐82及びaa168‐279)、GST‐fused PCBP2(aa11‐82)、またはGST‐fused MAVS(aa460‐540)タンパク質を発現するプラスミドを大腸菌BL21‐CodonPlus(DE3)‐RIPL細胞に形質転換させ、18℃で18時間、0.5mMのIPTGで処理して発現を誘導した。その後、前記細胞をバッファーA(50mMTris‐HCl、pH7.5、及び150mMNaCl)に懸濁させ、氷の上でソニケーション(sonication)で溶解させた。次に、細胞溶解物を4℃で1時間、25,000gで遠心分離した。HigタグEPRSドメインまたはPCBP2ドメインが含まれている上清液をNi‐NTAアガロースカラムにロードし、バッファーAで洗浄した後、250mMのイミダゾールで溶出させた。GSTが融合したPCBP2またはMAVSドメインを含む上清液はGlutathione Sepharose 4Bカラムにロードし、バッファーAで洗浄した後、10mMの還元されたグルタチオンで溶出させた。次に、精製されたタンパク質をバッファーAで透析し、使用前まで−80℃で保管した。4℃でSuperdex 200 10/300 GLカラムを用いてサイズ排除クロマトグラフィーを行い、精製されたEPRS(aa1‐732)を調査した。分子量基準としては、アルコール脱水素酵素(150kDa)及びアルブミン(66kDa)を用いた。溶出されたすべてのタンパク質は、SDS‐PAGEで分析し、Coomassie Brilliant Blueで染色した。
実施例13:試験管内プルダウン(pull‐down)の分析
精製されたHigタグEPRSドメイン(10μM)及びGST融合PCBP2ドメイン(20μM)を結合バッファー(50mMTris‐HCl、pH7.5、及び300mMNaCl)で混合させた。次に、精製されたGST融合MAVS(10μM)はHigタグPCBP2ドメイン(5μM)と結合バッファーで混合させた。その後、前記タンパク質の混合物を4℃で1時間50μlのNi‐NTAアガロースビーズと一緒にインキュベーションした。洗浄バッファー(50mMTris‐HCl、pH7.5、300mMNaCl、及び10mMイミダゾール)で洗浄した後、結合されたタンパク質を溶出バッファー(50mMTris‐HCl、pH7.5、300mMNaCl、及び250mMイミダゾール)で溶出させた。標本は4‐12%SDS‐PAGEゲルにロードし、タンパク質のバンドはクマシブルー(Coomassie Blue)染色で確認した。
実施例14:組織分析
脳試料は4%パラホルムアルデヒドで固定し、パラフィンに封入して、4μm厚さの切片に切断した。切片はキシレンで脱パラフィン化させた後、H&Eで染色した。
VSVを検出するために、脳切片をキシレンで脱パラフィン化させてクエン酸緩衝液(pH6.5)でマイクロ波を加え、抗原を回収した。VSV‐G抗体(ラビット、1:200)で染色して後、切片をAlexa488結合抗ラビットIgG(1:250)とインキュベーションした後、DAPI染色を行った。
蛍光画像は、Nikon laser scanning confocal microscope(C2plus, Tokyo, Japan)でキャプチャし、NIS‐Elements software(Nikon)を用いて作業した。
実施例15:コンフォーカル顕微鏡
HeLa細胞は、8ウェルプレート(Labtek)に接種した。ウイルスを感染させた後、感染された細胞を室温で20分間4%パラホルムアルデヒドで固定させた。 MSC複合体の鮮明な画像を得るために、氷の上で10分間、25μg/mlのジギトニンと一緒に細胞をインキュベーションした。−20℃で20分間、100%MeOHで透過処理した後、室温で1時間2%BSAを含有したPBSで細胞をブロッキングさせた。次に、細胞をPBS‐T(0.05%Tween20含有PBS)で3回洗浄し、4℃で適切な1次抗体と一緒に一晩インキュベーションした。次に、3回洗浄し、適切な2次抗体と室温で1時間インキュベーションした。次に、細胞を室温で10分間DAPIで染色し、PBS‐Tで3回洗浄した後、マウント溶液で封入した。画像は Nikon laser scanning confocal microscope(C2plus)にNIS‐Elementsソフトウェアを用いて分析した。ピアソン相関係数に基づいたCo‐localization指数はソフトウェアツールで計算した。
実施例16:EPRSのリン酸化位置及び相互作用体(interactome)を究明するための質量分析(mass spectrometry)
HEK293T細胞を24時間Strep‐EPRSプラスミドで形質転換させ、6時間PR8‐GFP(MOI=5)に感染させた。感染された細胞はタンパク質分解酵素阻害剤及びホスファターゼ阻害剤カクテル(Roche)を含む溶解バッファー(20 mMTris‐HCl、pH8.0、150mM NaCl、0.5%‐NP40、及び1mM EDTA)で回収し、4℃でStrep‐Tactin Superflow high capacity resin(IBA)で一晩インキュベーションした。次に、レジンを溶解バッファーで5回洗浄し、結合されたタンパク質を溶出バッファー(100mMTris‐HCl、pH8.0、150mM NaCl、1mM EDTA、及び2.5mMデスチオビオチン(desthiobiotin)で溶出させた。最後に、溶出された画分をAmicon Ultra‐4(10K MWCO)遠心分離装置(Millipore)で濃縮した。前記試料はSDS‐PAGE及びSilver染色で分析した。次に、染色されたタンパク質のバンドを切ってゲル上でトリプシンで分解した。前記トリプシン分解ペプチドを回収してEksigent MDLCシステムに結合されたreversed-phase Magic 18aq(5μM、200A、Michrom BioResourecs)カラム(15 cm×75μM、packed in-house)にロードした。前記ペプチドを、40分間5‐40%アセトニトリル含有酸性水(0.1%ギ酸)で直線勾配し、300nL/分の流速で溶出させた。 HPLCシステムは、LTQ XL‐Orbitrap質量分析計(Thermo Scientific)に結合させた。
前駆体選別及びペプチド荷電量を確認するために、100,000の解像度でSurvey full-scan MS spectra(300‐2,000m/z)を獲得した。イオン化パラメータのソースは以下の通りである:噴霧電圧(spray voltage)、1.9 kV;キャピラリー温度(capillary temperature)、250℃。
MS1のスキャンで2以上の電荷状態で最も強いイオンのMS/MSspectraは、以下のオプションを用いて得た:isolation width、2.0m/z;normalized collision energy、35%;and dynamic exclusion duration、30 s。生データは、Proteome Discoverer 1.4(Thermo Scientific)のSEQUESTアルゴリズム及びMASCOTサーチエンジン(v. 2.3.01; Matrix Science)を用いて求めた。ヒトUniprotデータベース(2013.07公開)は次のパラメータを用いて求めた。全体トリプシン分解ペプチドの切断特異性(full tryptic peptide cleavage specificity)、2つの誤った切断(two missed cleavages)、carbamidomethylシステインの固定された変形(+57.021Da)、酸化されたメチオニンのさまざまな変形(+15.995Da)、及びリン酸化されたセリン、スレオニン、及びチロシン(+79.9799Da)。
実施例17:生体内及び試験管内ユビキチン化の分析
HEK293T細胞をMAVS-FLAG、ITCH-V5、GST-PCBP2及びStrep‐EPRSプラスミドのさまざまな組み合わせで形質転換した。24時間後、細胞を10μMMG‐132で6時間処理してRIPAバッファーで溶解した後、4℃で6時間anti‐FLAG親和性ゲルで免疫沈降反応を実施した。内因的MAVSのユビキチン化を見るために、細胞溶解物をanti‐MAVS抗体と一緒に一晩インキュベーションし、4℃で3時間protein A/G PLUSアガロースビーズとインキュベーションさせた。次に、免疫複合体を溶解バッファーで5回洗浄し、10分間SDSサンプルバッファーで加熱した。ユビキチン化は、anti‐Ubあるいはanti‐K48抗体を用いて分析した。試験管内ユビキチン分析のために、Strep-MAVS、Strep-PCBP2及びStrep‐EPRSタンパク質を各プラスミドで形質転換されたHEK293Tの溶解物で沈殿させた。ITCH‐V5タンパク質はanti‐V5抗体と溶解物をインキュベーションして準備し、protein A/G PLUSアガロースビーズと一緒にインキュベーションした。精製されたタンパク質は、Mg2+‐ATPを含有する反応バッファーでUbiquitin、E1及びUbcH5bのE2(Boston Biochem)と一緒に37℃で1時間インキュベーションした。この反応は、1 mM DTTを含有するSDSサンプルバッファーを添加して10分間加熱することで終結し、ユビキチン化はanti‐Ub抗体で感知した。
実施例18:ペプチドの設計及び合成
EPRSL1(aa168‐196)を細胞透過性HIV‐1 TATペプチド(aa47‐57、YGRKKRRQRRR;配列番号60)と融合させた。融合ペプチドは、(Tat‐Epep)を合成した後、逆相HPLC(AbClon)で93%以上の精製をした。Tat‐Epep配列はYGRKKRRQRRR‐GG‐DVSTTKARVAPEKKQDVGKFVELPGAEMG(配列番号61)である。TAT潜伏YGRKKRRQRRR配列(配列番号60)は、コントロールペプチドとして用い、凍結乾燥されたペプチドは−80℃で乾燥剤と保管して使用前にPBSで溶解させた。
実施例19:細胞毒性の分析
HEK293TあるいはRAW264.7細胞を96ウェルプレート(10,000 per well)に接種し、0‐24時間Tat‐Epep(20‐200μM)を処理した。次に、MTS [3‐(4,5-dimethylthiazole‐2‐yl)‐5‐(carboxymethoxyphenyl)‐2‐(4‐sulfophenyl)‐2H‐tetrazolium salt](Promega)を用いて比色分析法で細胞毒性を確認した。MTS 20μlを37℃で1時間、各ウェルに添加した。Automated microplate reader(BioTek)を用いて光学密度490nmで測定し、630nmのバックグラウンド吸光度を各サンプルreadingから差し引いた。
実施例20:設計されたペプチドを用いた動物実験
C57BL/6マウス(雌、7週齢)をゴアテック(平沢、韓国)から購入し、VSVインディアナ(2×10pfu/マウス)を静脈内投与して感染させた。24時間後、Tat‐Epep(2.5mg/kg[0.53μM/kgまたは5mg/kg [1.05μM/kg])を3日間毎日マウスに腹腔内投与した。Tat PTDペプチド(1.65mg/kg [1.05μM/kg])を対照群として用いた。4日目に、マウスから脳組織を回収した。回収した標本をTissueLyser機器(Qiagen)を用いてすぐに均質化させ、前述した方法でウイルス力価を測定した。
実施例21:統計分析
統計分析は、Prism(Version 6.0, GraphPad Software)を用いて行った。データは、スチューデントのt検定 (Student's unpaired t-test) 、 ログランク検定(log-RNAk test)またはノンパラメトリック Mann-Whitney検定(non-parametric Mann-Whitney test) を適切に利用して分析した。データの標準化は、Kolmogorov‐Smirnov testを用いて評価した。データは言及しない限り、平均値±SDで示し、すべての実験は少なくとも3回繰り返した。分析に基づいて* <0.05、** <0.01、または*** <0.001のP値を有意とした。
実験例1:EPRS(glutamyl-prolyl-tRNA synthetase)の抗ウイルス能の確認
ARS(Aminoacyl-tRNA synthetases)は、複数の非翻訳細胞プロセスで重要な役割をするが、ウイルス感染においてこれらの役割はほとんど報告されてない。したがって、本発明者らは、インフルエンザAウイルスに感染されたヒト気管支上皮細胞でMSC(Multi-tRNA synthetase complex)の構成要素をコードする遺伝子の発現パターンを調査するために、RNAシーケンスを用いて、グローバル転写体分析を実施した。これにより、前記遺伝子の非均一的な発現及び一時的な変動を観察し、これはウイルス感染に反応したときに、前記遺伝子が任意の役割をするということを示唆する(図1)。
次に、本発明者らは、抗ウイルス反応を誘発する可能性があるMSCタンパク質を調査し、EPRS(glutamyl-prolyl-tRNA synthetase)が相当な水準でIFN‐βプロモーター活性を誘導することを確認した(図2)。さらに、ウイルスが感染されたさまざまな細胞株でEPRS mRNA発現が徐々に誘導されることを確認した(図3)。また、RAW264.7細胞株でsiRNAを用いてEPRSをノックダウンさせた場合(図4)、RNAウイルス(PR8インフルエンザAウイルス及び水疱性口内炎ウイルス(vesicular stomatitis virus、VSV)の複製が増加されたが(図5及び図6)、単純ヘルペスウイルス(herpes simplex virus、HSV)(DNAウイルス)は複製に影響を受けないことを確認した(図7)。EPRSノックダウン細胞は、ウイルス感染または合成dsRNApoly(I:C)処理について、抗ウイルス性サイトカイン(IFN‐β及びIL‐6)の生産が大幅に減少した(図8及び図9)。ただし、HSVはサイトカイン誘導を大きく変化させなかった(図8及び図9)。EPRSノックダウンHEK293T細胞株(図10〜図12)及びshRNAを用いて安定的にEPRSをノックダウンさせたRAW264.7細胞株(図13〜図19)でもこれと同等の結果を確認した。さらに、EPRSノックダウン細胞でIFN関連シグナル伝達分子であるIRF3及びSTAT1の活性化が著しく減少した(図20)。一方、EPRSを安定的に過発現させたRAW264.7細胞(図21)では、PR8(図22〜図24)またはVSV(図25〜図27)感染によりウイルスの複製が大幅に減少し、IFN‐β及びIL‐6生産は増加した。
総合すると、前記データは、EPRSが特にRNAウイルスに対する抗ウイルス先天性免疫反応を陽性調節することを実証するものである。
実験例2:ウイルス感染のEPRSに対する生体内防御反応の確認
本発明者らは、EPRSの同型欠損(homozygous deletion)マウスは、離乳前段階(pre-weaning stage)で死ぬため、異形EPRS+/-マウスを用いて、抗ウイルス免疫反応でのEPRSの生理学的役割を調査した。PR8またはVSVに感染された野生型(WT、EPRS+/+)及びEPRS+/-マウスから分離されたBMDM(bone marrow-derived macrophage)を調査したとき、EPRS+/-BMDMでのウイルス力価はWT BMDMよりもはるかに高かった(図28)。これと共に、ウイルス感染(図29)及びpoly(I:C)処理(図30)に対し、EPRS+/- BMDMでIFN‐β及びIL‐6の生産レベルはEPRS+/+細胞に比べて著しく低いことを確認した。siRNAで形質転換したEPRS欠乏BMDMを用いた場合にも同様の結果を確認した(図31〜図34)。さらに、IFN‐βのレベル、抗ウイルス性IFN関連遺伝子の発現、及び炎症関連遺伝子の発現も、VSVに感染されたEPRS+/+細胞より、VSVに感染されたEPRS+/- BMDMで顕著に減少した(図35)。EPRSノックダウンRAW264.7細胞のPR8感染に対する抗ウイルス性遺伝子の誘導も対照群細胞に比べて大幅に減少した(図36)。対照的に、HSVに感染されたEPRS+/+及びEPRS+/- BMDMの間では、ウイルス複製またはサイトカインの分泌に有意な差はなかった(図37及び図38)。
次に、EPRS+/+及びEPRS+/-マウスにVSVインディアナ菌株を静脈投与し、それらの生存を毎日観察した。EPRS+/-マウスは、43%(6/14)が感染6日以内に死亡したが、EPRS+/+マウスは、わずか7%(1/15)のみ死ぬことを確認した(図39)。マウス組織におけるウイルス量を確認するために、ウイルス感染の5日目にマウスの脳と脾臓を回収して分析した。EPRS+/-マウスの脳及び脾臓におけるウイルス力価はEPRS+/+マウスに比べて大幅に高かったが(図40及び図41)、これはEPRS+/-マウスがVSV感染にさらに感受性を有することを意味する。
次に、免疫反応におけるEPRSの機能的重要性をさらに確認するために、組換えVSV‐GFPをEPRS+/+及びEPRS+/-マウスに静脈投与し、感染12時間後の血清標本でウイルス量及び抗ウイルス性サイトカインレベルを測定した。その結果、ウイルス血症(viremia)は高く(図42)、血清中のIFN‐β、IFN‐α、及びIL‐6レベルは低いことを確認した(図43)。
最後に、感染0〜5日目に脳組織標本を収集し、VSVによって誘導された組織学的特徴を調べた。H&E(hematoxylin-eosin)で染色されたEPRS+/-マウスの脳切片では、EPRS+/+マウスに比べて炎症性細胞の浸透が著しく多く観察(特に、側脳室領域の周辺)された(図44)。さらに、脳組織切片を抗VSV‐G抗体で染色した免疫組織化学分析で、炎症の周辺位置で感染されたウイルスの存在を確認し、EPRS+/+マウスに比べてEPRS+/-マウスからのウイルス除去はゆっくり進行された(図45)。
総合すると、前記結果は、EPRSがウイルス感染に対してマウス細胞内先天性免疫反応に関連していることを証明するものである。
実験例3:抗ウイルス活性に対するEPRSの感染 - 特異的変形
従来の研究結果では、リン酸化などの翻訳後の変形過程がMSCからARSを放出させ、その後の下流有効分子との相互作用及び非正規(non-canonical)機能の活性に重要な役割をすることが報告された。例えば、EPRSのSer886及びSer999のIFN‐γ依存的な順次的リン酸化は、MSCからEPRSを放出させ、GAIT複合体の形成を誘導する。ウイルス感染に対するEPRSの機能を評価するために、本発明者らはIFN‐γ活性と関連してEPRSの研究に主に使用される細胞株であるヒトのマクロファージ類似U937細胞をPR8ウイルスに感染させた。その結果、ウイルス感染によってKRS及びAIMP3とEPRSの相互作用が著しく減少したことを確認したが、これはMSCからEPRSが分離されたことを意味するものである(図46)。EPRSのSer886のリン酸化を介してEPRSに直接結合する前駆GAIT複合体の構成要素であるNSAP1に対する抗体を用いた免疫ブロット分析では、24時間後にEPRSがNSAP1に弱く結合することを確認した。しかし、EPRSは機能的複合体の形成のためにEPRSSer999位置のリン酸化に必要なGAIT複合体の構成成分であるGAPDHには結合しなかった(図46)。
次に、PR8に感染されたRAW264.7マクロファージ溶解物を抗EPRSまたは抗KRS抗体と共同免疫沈降(co‐IP)させ、ウイルスによってMSCからEPRSの放出が誘発されるかどうかを確認した(図47及び図48)。コンフォーカル顕微鏡の分析もEPRSがKRSと同じ位置に存在することを示したが、ウイルス感染によって同じ位置に存在するシグナルが減少することを確認した(図49〜図51)。前記結果は、EPRS活性と関連する明確なウイルス特異的作用の機序が存在することを意味する。
EPRS活性の作用機序及びその抗ウイルス反応での役割を解明するために、本発明者らは次のように質量分析ベースのタンパク質分析アプローチを用いて、StrepタグEPRSを異所性に発現するHEK293T細胞における特異的な翻訳後の変異を確認しようとした(図52)。非感染及び感染細胞の両方でSer886のリン酸化が検出されたのに対し、Ser999(IFN‐γ刺激に対してリン酸化された)では、すべての条件で変形されないことを確認した(図53〜図55)。予想とは異なり、ウイルス感染はEPRSのSer990のリン酸化を誘導した(図56及び図57)。前記結果を確認するために、抗原としてリン酸ペプチド983DGQRKDP(p)SKNQGGG996(配列番号62)を用いて、この位置に対するラビット多クローン抗体を製造した。EPRSSer990位置のリン酸化は、U937細胞にPR8が感染された後に徐々に増加した(図58)。一方、IFN‐γ処理は、Ser990のリン酸化を誘導しなかった(図58)。他のウイルスまたは合成RNAを処理した細胞でも同様の結果を観察することができた(図59〜図62)。
また、本発明者らは非感染細胞で、IFN‐γで刺激した後に観察されたものよりは弱く増加するが、PR8感染によって増加するSer886のリン酸化が低レベルで検出されることを確認した(図63)。ウイルス感染は、Ser999のリン酸化を誘導しないが、IFN‐γ刺激は明らかにSer999のリン酸化を誘導した(図64)。さらに、ウイルス感染は、IFN‐γの分泌またはGAIT複合体の標的であるCpの発現抑制に影響を与えなかった(図65〜図67)。異所性に発現されたEPRSのリン酸化模倣(phosphomimetics)を活用した従来の研究結果では、Ser886及びSer999のリン酸化がMSCからEPRSの放出を誘導すると報告されている。特に、StrepタグEPRSモノリン酸化模倣、S990DはMSCの構成要素であるKRS、AIMP3及びMRSとの相互作用が欠如され、MSCから誘導性により放出された(図68)。
総合すると、前記結果は、ウイルスによって誘導されるEPRS Ser990のリン酸化がMSCからEPRSの放出を誘導して、IFN‐γによって活性化されるGAIT翻訳沈黙経路での役割とは区別される機能を果たすことを意味する。
実験例4:EPRS及びPCBP2の相互作用の確認
ウイルスが細胞内に入ると、細胞内のセンサーであるRIG‐Iが活性化される。次に、RIG‐IはMAVSと相互作用してI型IFNの生産で終わるシグナル伝達カスケードを誘発することになる。前記シグナル伝達カスケードを分析した結果、EPRSは容量依存的方式でRIG‐I‐、MDA5‐、poly(I:C)‐ 、及びMAVS媒介IFN‐βプロモーターの活性を増加させることを確認した(図69 )。しかし、TRAF3、TBK1、またはIRF7の存在下ではIFN‐βプロモーターの有意な活性は観察されなかった(図70)。前記結果は、EPRSがI型IFN経路の陽性調節者として、MAVSの下流及びTRF3シグナル伝達軸の上流に作用することを意味する。
ウイルスに感染される間、MAVSのシグナル伝達を調節するEPRS相互作用分子を究明するために、PR8に感染された細胞から分離されたStrepEPRSに特異的な複合体を用いて、タンパク質の分析を行った(図71)。その結果、MSCタンパク質は存在したが、GAITタンパク質(NSAP、GAPDH及びL13a)は存在しなかった。特に、EPRSは、ウイルス感染時にMAVSのユビキチン化及び分解を誘発することが知られているPCBP2と相互作用した。内因的共同IP分析を通じ、RAW264.7及びU937細胞におけるウイルスで誘導されたEPRS及びPCBP2の相互作用を確認し、前記2つのタンパク質の相互作用は時間に応じて増加した(図72及び図73)。さらに、既存の研究結果からも報告されているように、PCBP2はウイルス感染時に核から細胞質に移動して、EPRSと同じ位置に存在することを確認した(図74)。
次に、PCBP2と相互作用するEPRS領域を究明するために、さまざまなEPRSドメインを含むプラスミドコンストラクトを製造した(図75)。EPRSの全長アミノ酸配列は、配列番号63で示される1512個の配列である。その次に共同IPを実行して、各EPRS領域及びPCBP2の相互作用を確認した。その結果、GST様ドメイン及びリンカー領域L1(aa1‐196)を含有するEPRSのN‐末端領域がPCBP2との相互作用に決定的であり、前記領域は全長EPRSによって誘導されるものと同様のレベルでIFN‐βプロモーターの活性を誘導することを確認した。しかし、GST様ドメイン単独(aa1‐168)としては、抗ウイルス活性を誘導しなかった(図75〜図79)。前記結果は、GST様ドメイン及びERS間のL1領域(aa168‐196)がPCBP2との相互作用及び抗ウイルス反応に必須であるということを意味する。本発明者らは、L1欠損変異がPCBP2と相互作用せず、IFN‐βを誘導する能力が減少することを確認して、L1領域(aa168−196)及びL1領域を含む断片(aa 168‐269)が抗ウイルス効果を有することを確認した(図80及び図81)。
一方、本発明者らは、PCBP2のリンカー領域ではなく、N‐末端のKH1ドメイン(aa1-81)がEPRS結合に十分であることを確認した(図82及び図83)。試験管内沈降分析を通じ、PCBP2KH1はEPRSのGST及びL1領域と特異的に相互作用し、GST様領域単独(aa1-168)としては、相互作用しないことを確認した(図84〜図86)。総合すると、前記のデータは、Ser990のリン酸化に誘導されたMSCからのEPRSの放出は、そのPCBP2との相互作用を促進し、これにより、MAVSのシグナル伝達を調節することできることを示唆する。
実験例5:MAVSのPCBP2媒介ユビキチン化に対するEPRSの保護効果の確認
PCBP2は、ウイルス感染によって誘導されてMAVSと相互作用することにより、プロテアソーム分解でMAVSユビキチン化を引き起こすことが報告された。したがって、本発明者らは、EPRSがPCBP2媒介ユビキチン化を防いでMAVSを保護するという仮説を立てた。そこで、PCBP2とMAVSの相互作用を再評価し、MAVSがEPRSに結合するドメインであるPCBP2 KH1ドメインと特異的に相互作用することを確認した(図87〜図90)。EPRSとMAVSが同じKH1ドメインを標的とすることは、EPRSがMAVSと競争的に作用してMAVSとPCBP2との相互作用を防ぐことができるということを示唆する。
実際に、PCBP2とMAVSの相互作用は、EPRS存在下に顕著に減少した(図91)。しかし、EPRSはPCBP2がITCH E3リガーゼ(ligase)に結合することを妨げはしなかったが(図92)、これはEPRSはMAVSがPCBP2 KH1に結合することを特異的に競争的に作用することを意味する。前記結果は、PR8感染後にMAVSに結合するPCBP2が徐々に減少するが、MAVSとEPRSの相互作用は著しく増加することを示す内因性相互作用の分析を介して確認されたものである。これらの結果は、ウイルスに感染した細胞でEPRSはPCBP2がMAVSに内因的に結合するのに妨害する役割をすることを意味する(図93)。
PCBP2はITCHE3リガーゼを引き込んでMAVSのユビキチン(Ub) 媒介分解を促進させる。したがって、本発明者らは、293T細胞で外因的に発現されるMAVS‐FLAGがITCHによってユビキチン化され、PCBP2の添加により前記反応が著しく増加することを確認した(図94)。しかし、EPRSは容量依存的にPCBP2媒介MAVSのユビキチン化を抑制した(図94)。同様に、PCBP2によって内因的MAVSのユビキチン化は著しく向上したが、EPRSの存在下では大幅に減少することを確認した(図95)。前記ユビキチン化分析の結果と同様に、外因性(図96)及び内因性(図97)MAVSは、PCBP2によって分解されたが、EPRSの添加により回復されることを確認した。
最後に、精製されたEPRSを再構成された無細胞(cell-free)システムに添加した結果、PCBP2誘導MAVSのユビキチン化が著しく減少することを確認した(図98)。したがって、EPRSはMAVSのPCBP2媒介の陰性調節を特異的に防ぎ、強力な抗ウイルス免疫反応を維持させることができる。
実験例6:EPRS由来ペプチドの抗ウイルス活性
実験例6‐1:Tat‐Epepの試験管内及び生体内の抗ウイルス活性
今まで、本発明者らは、抗ウイルス免疫反応でEPRSがMAVSのPCBP2媒介分解を抑制し、特にEPRS L1領域(aa168‐196)がPCBP2の相互作用に必須であり、抗ウイルスI型IFNのシグナル伝達を向上させる役割をすることを確認した。そこで、次に、本発明者らはHIV‐1 Tatタンパク質変換ドメイン(transduction domain)とEPRS L1ペプチドを融合した細胞透過性ペプチド(以下、「Tat‐Epep」と命名、配列番号61)を製造し、その抗ウイルス活性を調べた。Tat‐EpepはPCBP2媒介の内因性MAVSユビキチン化を抑制させ(図99)、MAVSの細胞内レベルを回復させた(図100)。Tat‐Epepは、また、ウイルス感染細胞でIFN‐β、及びIL‐6の産生を増加させ(図101)、RAW264.7細胞で容量依存的にVSV複製を減少させた(図102及び図103)。しかし、Tat‐EpepはHSVに感染されたRAW264.7細胞で抗ウイルス活性を示さなかったが(図104〜図106)、これはTat‐EpepがRNAウイルス感染に特異的であることを意味する。Tat‐Epepは、テストした濃度の範囲でRAW264.7または293T細胞の生存性に影響を及ぼさなかったが、これはウイルス力価の減少がペプチド媒介の細胞毒性によるものではないことを意味する(図107及び図108)。前記結果は、Tat‐EpepがMAVS生存性及びI型IFNの生産を増加させる抗RNAウイルス製剤として優れた効果があることを示唆する。
生体内でTat‐Epepの抗ウイルス効果をより調査するために、本発明者らは、マウスのVSVインディアナ菌株を静脈投与した。投与後、TatまたはTat‐Epepをマウス腹腔内に3日間毎日投与した。その結果、Tat‐Epepを処理したマウスは、Tatタグを処理したマウスに比べて脳組織におけるウイルス力価が著しく減少した(図109)。前記データは、Tat‐Epepが抗RNAウイルス製剤として優れた効果があることをさらに実証する。
実験例6‐2:New Tat‐Epepの試験管内及び生体内の抗ウイルス活性
本発明者らは、前記Tat‐EpepのEPRS L1ペプチド部分を21マー(aa166‐186)にさらに限定して新規ペプチド(以下、「New Tat‐Epep」と命名)を製造した。New Tat‐Epepは、YGRKKRRQRRR‐GG‐KWDVSTTKARVAPEKKQDVGK(配列番号64)のアミノ酸配列を有する。これに対し、実施例6‐1と同様の方法でVSVを静脈内投与したマウスに処理(TAT対照群:100μg、7匹;New Tat‐Epep:200μg、3匹)した結果、Tat‐Epepの場合と同様に、マウスの脳でVSVウイルスの力価を減少させることを確認した(図110)。さらに、New Tat‐EpepをVSV‐GAPウイルスに感染したRAW264.7細胞に処理したとき、抗ウイルスのサイトカインであるIFN‐β、及びIL‐6の分泌をTat‐Epepに比べて2〜3倍以上促進させることを確認した(図111〜図113)。前記結果を通じ、New Tat‐Epepも抗RNAウイルス製剤として優れた効果があることが分かった。
これにより、EPRS L1(aa168‐196)でaa187‐196の部分がない、aa168‐186の断片だけでも優れた抗RNAウイルス活性を有することが分かった。
以上の説明から、本発明が属する技術分野の当業者は、本発明がその技術的思想や必須の特徴を変更せず、他の具体的な形態で実施されうることを理解できるだろう。これに関連し、以上で記述した実施例は、すべての面で例示的なものであり、限定的なものではないものと理解しなければならない。本発明の範囲は、前記の詳細な説明ではなく、後述する特許請求の範囲の意味及び範囲そしてその等価概念から導出されるすべての変更または変形された形態が、本発明の範囲に含まれるものと解釈されるべきである。

Claims (12)

  1. EPRS(glutamyl-prolyl-tRNA synthetase)タンパク質またはその断片を含み、前記EPRSタンパク質またはその断片が、配列番号63の168〜186番目のアミノ酸配列を含むものである、抗RNAウイルス用組成物。
  2. 前記EPRSタンパク質の断片が、配列番号63の1〜196番目のアミノ酸配列、1〜269番目のアミノ酸配列、1〜457番目のアミノ酸配列、1〜506番目のアミノ酸配列、1〜682番目のアミノ酸配列、168〜506番目のアミノ酸配列、168〜269番目のアミノ酸配列、及び168〜196番目のアミノ酸配列からなる群から選択されるアミノ酸配列を含むものである、請求項1に記載の抗RNAウイルス用組成物。
  3. 前記RNAウイルスが、アマルガウイルス科(Amalgaviridae)、ビルナウイルス科(Birnaviridae)、クリソウイルス科(Chrysoviridae)、シストウイルス科(Cystoviridae)、エンドルナウイルス科(Endornaviridae)、ハイポウイルス科(Hypoviridae)、メガビルナウイルス科(Megabirnaviridae)、パルティティウイルス科(Partitiviridae)、ピコビルナウイルス科(Picobirnaviridae)、レオウイルス科(Reoviridae)、トチウイルス科(Totiviridae)、クアドリウイルス科(Quadriviridae)、アルテリウイルス科(Arteriviridae)、コロナウイルス科(Coronaviridae)、メソニウイルス科(Mesoniviridae)、ロニウイルス科(Roniviridae)、ジシストロウイルス科(Dicistroviridae)、イフラウイルス科(Iflaviridae)、マルナウイルス科(Marnaviridae)、ピコルナウイルス科(Picornaviridae)、セコウイルス科(Secoviridae)、アルファフレキシウイルス科(Alphaflexiviridae)、ベータフレキシウイルス科(Betaflexiviridae)、ガンマフレキシウイルス科(Gammaflexiviridae)、チモウイルス科(Tymoviridae)、ボルナウイルス科(Bornaviridae)、フィロウイルス科(Filoviridae)、パラミクソウイルス科(Paramyxoviridae)、ラブドウイルス科(Rhabdoviridae)、ニヤミウイルス科(Nyamiviridae)、カリシウイルス科(Caliciviridae)、フラビウイルス科(Flaviviridae )、ルテオウイルス科(Luteoviridae)、トガウイルス科(Togaviridae)、ニューモウイルス科(Pneumoviridae)、アレナウイルス科(Arenaviridae)、デルタウイルス(Deltavirus)、及びオルソミクソウイルス科(Orthomyxoviridae)ウイルスからなる群から選択される1つ以上のものである、請求項1に記載の抗RNAウイルス用組成物。
  4. 前記EPRSタンパク質またはその断片が、N-末端、C-末端、または両末端に細胞透過性ペプチドをさらに含むものである、請求項1に記載の抗RNAウイルス用組成物。
  5. 前記細胞透過性ペプチドが、Tat、アンテナペディア(Antennapedia)、トランスポータン(Transportan)、VP22、Hph‐1、R11(R9)、シグナル配列ベースのペプチド、及び両親媒性(Amphipathic)ペプチドからなる群から選択される1つ以上のものである、請求項4に記載の抗RNAウイルス用組成物。
  6. 前記EPRSタンパク質またはその断片が、PCBP2に結合してMAVSとPCBP2の結合を抑制するものである、請求項1に記載の抗RNAウイルス用組成物。
  7. 前記抗RNAウイルス用組成物が、薬学組成物、医薬部外品組成物、食品組成物、化粧料組成物または飼料組成物として用いられるものである、請求項1〜6のいずれか一項に記載の抗RNAウイルス用組成物。
  8. EPRSタンパク質またはその断片のRNAウイルス感染疾患の予防または治療用薬剤の製造のための使用であって、前記EPRSタンパク質またはその断片が、配列番号63の168〜186番目のアミノ酸配列を含むものである、使用。
  9. EPRSタンパク質またはその断片をコードするポリヌクレオチドのRNAウイルス感染疾患の予防または治療用薬剤の製造のための使用であって、前記EPRSタンパク質またはその断片が、配列番号63の168〜186番目のアミノ酸配列を含むものである、使用。
  10. ポリヌクレオチドを含むベクターのRNAウイルス感染疾患の予防または治療用薬剤の製造のための使用であって、前記ポリヌクレオチドが、配列番号63の168〜186番目のアミノ酸配列を含むEPRSタンパク質またはその断片をコードする、使用。
  11. ポリヌクレオチドまたはベクターを含む形質転換体のRNAウイルス感染疾患の予防または治療用薬剤の製造のための使用であって、前記ポリヌクレオチドが、配列番号63の168〜186番目のアミノ酸配列を含むEPRSタンパク質またはその断片をコードし、前記ベクターは前記ポリヌクレオチドを含むものである、使用。
  12. 請求項1〜6のいずれか一項に記載の抗RNAウイルス用組成物のRNAウイルス感染疾患の予防または治療用薬剤の製造のための使用。
JP2019532908A 2016-08-23 2017-08-23 Eprsタンパク質またはその断片を含む抗rnaウイルス用組成物 Active JP6901564B2 (ja)

Applications Claiming Priority (3)

Application Number Priority Date Filing Date Title
KR20160107037 2016-08-23
KR10-2016-0107037 2016-08-23
PCT/KR2017/009224 WO2018038539A2 (ko) 2016-08-23 2017-08-23 Eprs 단백질 또는 이의 단편을 포함하는 항rna-바이러스용 조성물

Publications (2)

Publication Number Publication Date
JP2019535803A JP2019535803A (ja) 2019-12-12
JP6901564B2 true JP6901564B2 (ja) 2021-07-14

Family

ID=61246186

Family Applications (1)

Application Number Title Priority Date Filing Date
JP2019532908A Active JP6901564B2 (ja) 2016-08-23 2017-08-23 Eprsタンパク質またはその断片を含む抗rnaウイルス用組成物

Country Status (6)

Country Link
US (1) US11173192B2 (ja)
EP (1) EP3505624A4 (ja)
JP (1) JP6901564B2 (ja)
KR (1) KR101853403B1 (ja)
CN (1) CN110234757B (ja)
WO (1) WO2018038539A2 (ja)

Families Citing this family (2)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
CN112322589A (zh) * 2020-11-24 2021-02-05 吉林省农业科学院 一种提高球孢白僵菌菌丝生长速度的产黄青霉科双链rna真菌病毒
IL308209A (en) * 2021-05-05 2024-01-01 Cedars Sinai Medical Center Exposure to UVA light increases mitochondrial antiviral protein expression in tracheal cells through cell-to-cell communication and its uses

Family Cites Families (5)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
US7248971B1 (en) * 2000-11-14 2007-07-24 International Business Machines Corporation Method and apparatus for discovering patterns in a set of sequences
JP2005533793A (ja) * 2002-06-17 2005-11-10 パーカー ヒューズ インスティテュート 抗ウイルス活性を有するアメリカヤマゴボウ抗ウイルス・タンパク質ポリペプチド
ES2552773T3 (es) * 2009-02-27 2015-12-02 Atyr Pharma, Inc. Motivos estructurales de polipéptidos asociados con la actividad de señalización celular
CN102858985A (zh) * 2009-07-24 2013-01-02 西格马-奥尔德里奇有限责任公司 基因组编辑方法
AU2011248100B2 (en) * 2010-05-04 2017-01-19 Pangu Biopharma Limited Innovative discovery of therapeutic, diagnostic, and antibody compositions related to protein fragments of glutamyl-prolyl-tRNA synthetases

Also Published As

Publication number Publication date
US11173192B2 (en) 2021-11-16
EP3505624A4 (en) 2020-07-08
WO2018038539A2 (ko) 2018-03-01
KR20180022613A (ko) 2018-03-06
EP3505624A2 (en) 2019-07-03
KR101853403B1 (ko) 2018-06-14
CN110234757A (zh) 2019-09-13
CN110234757B (zh) 2023-05-16
WO2018038539A3 (ko) 2018-04-12
US20190321455A1 (en) 2019-10-24
JP2019535803A (ja) 2019-12-12

Similar Documents

Publication Publication Date Title
Itakura et al. Beclin 1 forms two distinct phosphatidylinositol 3-kinase complexes with mammalian Atg14 and UVRAG
Lee et al. Infection-specific phosphorylation of glutamyl-prolyl tRNA synthetase induces antiviral immunity
KR101731908B1 (ko) p62 ZZ 도메인에 결합하는 리간드 또는 아르기닌화된 BiP에 의해 매개되는 오토파지 활성을 통한 신경변성 질환 예방 및 치료
Gonzalez de Mejia et al. Lunasin, with an arginine–glycine–aspartic acid motif, causes apoptosis to L1210 leukemia cells by activation of caspase‐3
Hinault et al. Stable α-synuclein oligomers strongly inhibit chaperone activity of the Hsp70 system by weak interactions with J-domain co-chaperones
JP2018172395A (ja) 抗炎症活性を有するペプチド、及びそれを含む組成物
JP6142077B2 (ja) 呼吸器ウイルス感染の阻害活性を有するペプチド、その使用、およびその製造方法
JPWO2018079702A1 (ja) ラクトフェリン/アルブミン融合タンパク質及びその製造方法
Pastorino et al. Identification of cellular proteome modifications in response to West Nile virus infection
Park et al. p62/SQSTM1 enhances NOD2-mediated signaling and cytokine production through stabilizing NOD2 oligomerization
JP2013535954A (ja) ペプチド、構造体およびその使用
Kong et al. BAG3 sensitizes cancer cells exposed to DNA damaging agents via direct interaction with GRP78
US11173192B2 (en) Anti-RNA virus composition comprising EPRS protein or fragment thereof
Wellslager et al. Porphyromonas gingivalis activates Heat-Shock-Protein 27 to drive a LC3C-specific pro-bacterial form of select autophagy that is redox sensitive for intracellular survival in human gingival mucosa
Freisem et al. A naturally occurring 22-amino acid fragment of human hemoglobin A inhibits autophagy and HIV-1
KR20250083110A (ko) Mam 활성 조절용 융합 펩타이드 및 이의 용도
JP2010254699A (ja) Fas関連因子1(fasassociatedfactor1)
WO2022149068A1 (en) Lectin protein for treatment and prevention of neurodegenerative diseases
KR102152977B1 (ko) 암 예방 또는 치료용 펩타이드 및 이를 포함하는 약학적 조성물
Han et al. Polydatin attenuates LPS-induced acute lung injury in rats via targeting HSP90AB1
KR20240087587A (ko) Cd82와 brcc3 또는 nlrp3과의 상호작용을 억제하는 제제를 유효성분으로 포함하는 대장염 예방 또는 치료용 약학적 조성물
KR101835180B1 (ko) 재조합 BTG2(B cell translocation gene 2) 단백질 및 이의 생산방법
US20250171496A1 (en) Fusion peptide for regulating activation of mam and use thereof
KR20230156270A (ko) vIRF3 유래 펩타이드 및 이의 암 예방 또는 치료 용도
KR20250169645A (ko) 세포 투과성 hspe1 융합단백질을 포함하는 파킨슨병 예방 또는 치료용 약학 조성물

Legal Events

Date Code Title Description
A621 Written request for application examination

Free format text: JAPANESE INTERMEDIATE CODE: A621

Effective date: 20190418

A131 Notification of reasons for refusal

Free format text: JAPANESE INTERMEDIATE CODE: A131

Effective date: 20200526

A521 Request for written amendment filed

Free format text: JAPANESE INTERMEDIATE CODE: A523

Effective date: 20200826

A131 Notification of reasons for refusal

Free format text: JAPANESE INTERMEDIATE CODE: A131

Effective date: 20201215

A521 Request for written amendment filed

Free format text: JAPANESE INTERMEDIATE CODE: A523

Effective date: 20210311

TRDD Decision of grant or rejection written
A01 Written decision to grant a patent or to grant a registration (utility model)

Free format text: JAPANESE INTERMEDIATE CODE: A01

Effective date: 20210518

A61 First payment of annual fees (during grant procedure)

Free format text: JAPANESE INTERMEDIATE CODE: A61

Effective date: 20210617

R150 Certificate of patent or registration of utility model

Ref document number: 6901564

Country of ref document: JP

Free format text: JAPANESE INTERMEDIATE CODE: R150

R250 Receipt of annual fees

Free format text: JAPANESE INTERMEDIATE CODE: R250

R250 Receipt of annual fees

Free format text: JAPANESE INTERMEDIATE CODE: R250