JP2017537065A - 生物学的作用強度の高いハロゲン化インスリン類似体 - Google Patents
生物学的作用強度の高いハロゲン化インスリン類似体 Download PDFInfo
- Publication number
- JP2017537065A JP2017537065A JP2017521099A JP2017521099A JP2017537065A JP 2017537065 A JP2017537065 A JP 2017537065A JP 2017521099 A JP2017521099 A JP 2017521099A JP 2017521099 A JP2017521099 A JP 2017521099A JP 2017537065 A JP2017537065 A JP 2017537065A
- Authority
- JP
- Japan
- Prior art keywords
- insulin
- xxx
- chain
- codon
- analog
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Pending
Links
Images





Classifications
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K33/00—Medicinal preparations containing inorganic active ingredients
- A61K33/24—Heavy metals; Compounds thereof
- A61K33/30—Zinc; Compounds thereof
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
- A61K38/16—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- A61K38/17—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- A61K38/22—Hormones
- A61K38/27—Growth hormone [GH], i.e. somatotropin
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
- A61K38/16—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- A61K38/17—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- A61K38/22—Hormones
- A61K38/28—Insulins
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P3/00—Drugs for disorders of the metabolism
- A61P3/08—Drugs for disorders of the metabolism for glucose homeostasis
- A61P3/10—Drugs for disorders of the metabolism for glucose homeostasis for hyperglycaemia, e.g. antidiabetics
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/575—Hormones
- C07K14/62—Insulins
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K2300/00—Mixtures or combinations of active ingredients, wherein at least one active ingredient is fully defined in groups A61K31/00 - A61K41/00
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
Landscapes
- Health & Medical Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Chemical & Material Sciences (AREA)
- General Health & Medical Sciences (AREA)
- Endocrinology (AREA)
- Medicinal Chemistry (AREA)
- Animal Behavior & Ethology (AREA)
- Veterinary Medicine (AREA)
- Public Health (AREA)
- Pharmacology & Pharmacy (AREA)
- Diabetes (AREA)
- Epidemiology (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Gastroenterology & Hepatology (AREA)
- Zoology (AREA)
- Organic Chemistry (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Engineering & Computer Science (AREA)
- Immunology (AREA)
- Toxicology (AREA)
- Molecular Biology (AREA)
- Inorganic Chemistry (AREA)
- Genetics & Genomics (AREA)
- Biochemistry (AREA)
- Biophysics (AREA)
- General Chemical & Material Sciences (AREA)
- Emergency Medicine (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Obesity (AREA)
- Hematology (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
- Peptides Or Proteins (AREA)
Abstract
【解決手段】 インスリン分子は、B10位にAsp置換、A8、B28、およびB29に相当する1若しくはそれ以上の位置にGlu、B24位にハロゲン化フェニルアラニンを有する。前記類似体は、選択的に(i)B鎖からの1、2、または3残基のN末端欠失、(ii)少なくとも1つの酸性残基を含むB鎖のモノペプチドまたはジペプチドC末端の伸長、および(iii)インスリンの安定性を向上させる、当該分野で既知の他の修飾を含んでもよい。インスリン類似体単量体当たりの亜鉛イオン0.00〜0.10の亜鉛イオン非存在下または存在下、少なくとも7.0〜8.0の範囲のpH値の可溶性溶液に溶解した、U−100〜U−1000の連続強度の上記類似体製剤。患者の血糖値を低下させる方法は、患者に生理学的有効量のインスリンを投与する工程を有する。【選択図】 図1
Description
連邦政府の支援を受けた研究又は開発に関する記述
本発明は、助成金番号DK040949およびDK074176として米国国立衛生研究所との共同契約のもと、政府支援を受けて行われた。米国政府は本発明に対して一定の権利を有する。
本発明は、助成金番号DK040949およびDK074176として米国国立衛生研究所との共同契約のもと、政府支援を受けて行われた。米国政府は本発明に対して一定の権利を有する。
本発明は、熱力学的安定性の増加および/または作用強度の増加など、薬剤学的性質の向上を示すポリペプチドホルモン類似体に関する。より具体的には、本発明は、(野生型インスリンと比較し)製剤強度が高くなったときに即効性を示す、および/または(野生型インスリンと比較し)患者に投与したホルモン類似体1ナノモル当たりの生物学的作用強度が高いスンスリン類似体に関する。したがって、本発明の類似体は、前記類似体が(i)二価金属イオンがなく、熱力学的安定性の向上を示す、(ii)タンパク質濃度0.6mM以上で自己会合の低下を示す、および(iii)in vivoにおいてナノモル単位で生物学的作用強度の上昇を示すように、すなわち、野生型ヒトインスリンと比較し、糖尿病の哺乳類に皮下または静脈内注射した場合、同程度の血糖濃度低下を誘発するために必要なインスリン類似体分子が少なくなるように、A鎖および/またはB鎖に酸性アミノ酸置換の新規組み合わせを含むポリペプチド鎖2本から成る。好ましくない分裂促進性の上昇を避けるため、本発明の類似体は、(芳香環のオルト、メタ、またはパラ位など)B24位のフェニルアラニンの芳香環にハロゲン原子(フッ素(F)、塩素(Cl)、臭素(Br)、またはヨウ素(I))を含み、即効性を与えるため、当該分野で既知のB28およびB29位などAまたはBドメインの他の部位に標準的または非標準的アミノ酸置換を選択的に含んでもよい。
治療薬およびワクチンを含む非標準的タンパク質の設計は、広く医学的および社会的利益を有する可能性がある。一般に、ヒト、その他の哺乳類、脊椎生物、無脊椎生物、または真核細胞でコードされる天然タンパク質は、細胞内で選択的に機能するように進化した可能性があるが、それにもかかわらず、治療用途では最適には及ばない。そのようなタンパク質の類似体は、生物物理学的、生化学的、または生化学的特性が向上する可能性がある。タンパク質類似体の利益は、(糖尿病の哺乳類または糖尿病患者の血糖濃度を低下させる代謝調節など)「on−target」活性を向上させ、癌細胞の増殖促進など、意図しないおよび/または好ましくない副作用は抑制することであろう。そのようなタンパク質を設計する別の利益は、より高い強度の製剤を達成するタンパク質濃度で、速い作用発現を維持できることであろう。さらに別の社会的利益の例は、室温以上での分解抵抗性を増大させ、輸送、販売、および使用しやすくするものであろう。治療用タンパク質の例はインスリンにより示される。RNAスプライシングの別の形式、または翻訳後糖鎖付加の別のパターンにより生成した受容体イソ型とは関係なく、他の哺乳類遺伝子でコードされ、インスリン受容体に結合する野生型ヒトインスリンおよびインスリン分子は、複数の臓器および多様な細胞に存在する。また、野生型インスリンは、相同的1型インスリン様成長因子受容体(IGF−1R)に対し、低いが有意な親和性で結合する。
医学的利益のさらなる例は、可溶性インスリン類似体製剤の薬物速度論的特性を最適化したものであり、強度U−200〜U−1000の範囲、すなわち、従来のU−100インスリン製剤よりも2倍から10倍高い強度の製剤で(当該分野ではU−100の強度で知られるプランディアル・インスリン(prandial insulin)類似体に特徴的であるような)作用発現の速さが保持されている(この命名法では、「U−X」が溶液または懸濁液1mlあたり体内にX単位が投与されることを示す)。強度を上げたインスリン製剤は、著しいインスリン抵抗性を示す患者に特に有益であることが保証され、体内または体外インスリンポンプにも有用と考えられ、リザーバの寿命が延長し、新世代のポンプ技術ではリザーバの小型化が可能である。既存のインスリン製剤は、インスリンまたはインスリン類似体濃度を増加させ、製剤強度をU−200(200国際単位/ml)超とすると、典型的には薬物動態学的および薬動力学的特性の延長を示す。このように延長すると、上記製剤を皮下注射した場合にプランディアル血糖コントロールへの有効性が損なわれ、ポンプによる連続皮下注入の有効性および安全性が損なわれる。これらの不都合な点を考慮すると、即効型インスリン類似体製剤の治療上および社会的利益は、U−200〜U−1000の強度で即効性を保持するインスリン類似体を設計することで向上するだろう。新規可溶性インスリン類似体の1型IGF受容体に対する親和性が野生型ヒトインスリンと比較して弱い場合、新たに利益が生じ、これはoff−target効果(二次的な標的への効果)の例として示される。ヒト癌細胞株のインスリン刺激による増殖をモニターするために開発された試験で、濃縮インスリン類似体製剤で分裂促進性を低下させる必要がある場合にも、追加の治療上および社会的利益が生じる。
インスリンの投与は糖尿病の治療として長く確立されてきた。糖尿病患者における従来のインスリン補充療法の主な目標は、血糖濃度を厳密にコントロールし、健康なヒト被験者に特徴的な正常範囲を上下に逸脱しないようにすることである。正常範囲以下に逸脱すると、直ちにアドレナリン作動性または神経低糖症状が伴い、重度の場合は痙攣、昏睡、および死に至る。正常範囲以上に逸脱すると、網膜症、失明、および腎不全などの微小血管疾患の長期的リスクが上昇する。
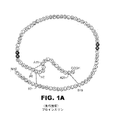
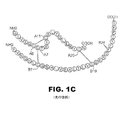
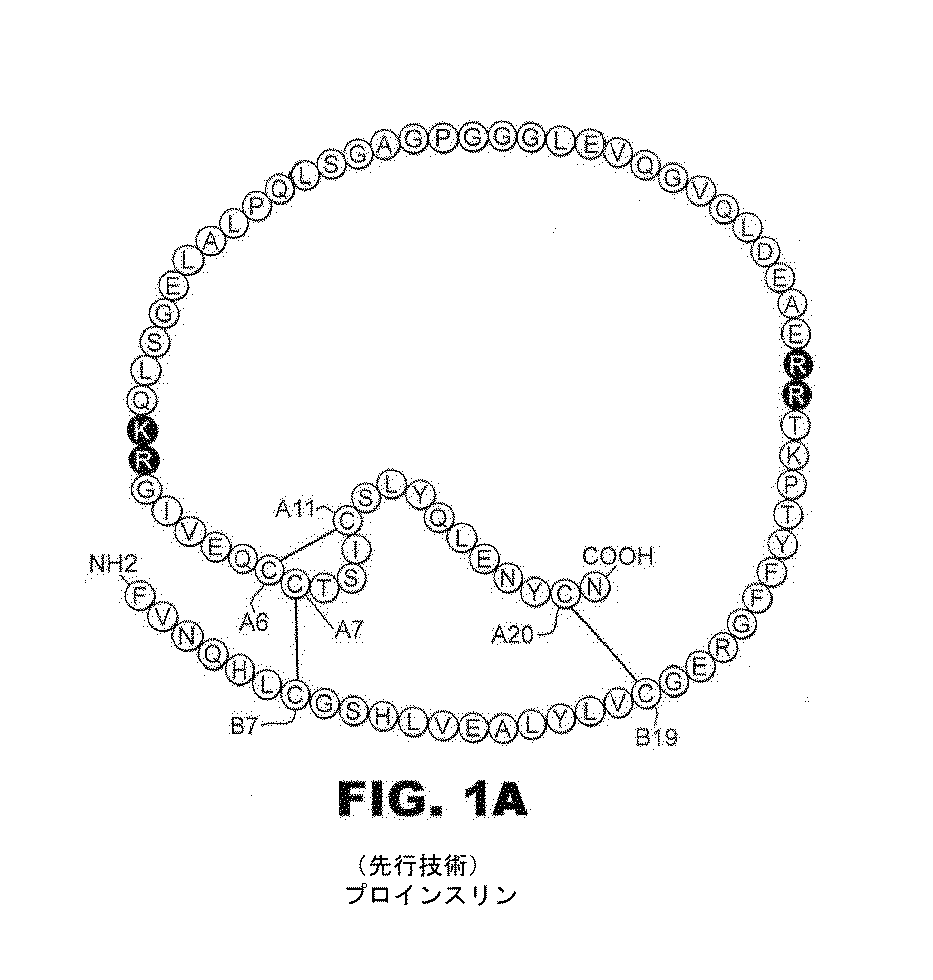
インスリンは小さな球状タンパク質であり、脊椎動物の代謝において中心的役割を果たす。インスリンには21残基から成るA鎖と30残基から成るB鎖が含まれる。前記ホルモンはZn2+により安定化した六量体として膵臓のβ細胞に保存されるが、血中ではZn2+が遊離した単量体として機能する。インスリンは、結合領域(35残基)でB鎖C末端残基(残基B30)とA鎖N末端残基が結合した、単鎖前駆体であるプロインスリンの生成物である。様々な根拠から、プロインスリンはインスリン様のコアから成り、結合ペプチドが不規則であることが示されている。3つの特異的ジスルフィド架橋(A6−A11、A7−B7、およびA20−B19)が形成すると同時に、粗面小胞体(ER)では単鎖生合成前駆体である表記のプロインスリンが酸化的に折り畳まれる。プロインスリンの配列および構造は図1Aおよび1Bの略図に示す。プロインスリンは途中のトランス・ゴルジ網でインスリンに変換され、膵臓β細胞内のグルコース調節分泌顆粒で亜鉛−インスリン六量体として保存される。ヒトインスリンA鎖およびB鎖のアミノ酸配列を図1Cの略図に示す。
本発明は、中性pH、U−200〜U−1000の強度で即効型インスリン類似体を可溶性製剤に設計する医学的および社会的需要が動機となった。プランディアル・インスリン類似体濃度を上昇させると、進行性の自己会合に有利であることは当該分野で既知であり、当初の分子デザインの論理は自己会合の低下を予測していた(Brange J1, Ribel U, Hansen JF, Dodson G, Hansen MT, Havelund S, Melberg SG, Norris F, Norris K, Snel L, et al.(1988) Monomeric insulins obtained by protein engineering and their medical implications.Nature 333:679−82)。この論理については図2の略図に示す。当該分野で既知の従来のインスリン製剤は、典型的には、単量体単位で0.6mM(希釈時はこれよりも低い)の公称タンパク質濃度では亜鉛インスリン六量体が優位となることを利用しており、この安定な会合がこのホルモンを物理的および化学的分解から保護している。このタンパク質濃度を超えて野生型インスリン六量体を濃縮すると、六量体−六量体相互作用が進行し、この自己会合レベルがさらに高くなることで皮下デポー製剤からの注入インスリンの吸収が遅くなり、これにより薬物動態および薬効が延長する。現在のプランディアル・インスリン類似体製剤(HUMALOG(登録商標)、NOVOLOG(登録商標)、およびAPIDRA(登録商標))と類似の伸長は、(単量体単位で)約2mM以上の濃度で起こる。
したがって、U−200〜U−1000で強度を上げたプランディアル製剤の障害は、野生型インスリンの複合体自己会合特性により引き起こされており、中性pHでは、濃度依存的に単量体、二量体、三量体、四量体、六量体、十二量体、およびより高次の種が分布する可能性がある。この障害を克服するため、高強度の即効型インスリン類似体製剤を設計する新規経路2種類を予想した。最初のアプローチは、タンパク質3〜8mMの高濃度でも高次の自己会合が起こりにくい超安定なインスリン単量体および二量体を設計することであった。このアプローチでは、化学的分解、重合、およびフィブリル化に関する米国食品医薬品局のガイドラインにより、個々のインスリン類似体分子の内因的安定性が増加することで、安定な製剤には不必要な亜鉛介在性または亜鉛依存性の六量体会合が得られる。第2のアプローチはインスリン類似体を探すものであり、内因性の生物学的活性が、分子あたりでは野生型インスリンよりも大きくなる。内因活性が上昇すると、(HUMALOG(登録商標)、NOVOLOG(登録商標)、およびAPIDRA(登録商標)のように)従来の0.6mMの濃度でも、タンパク質溶液がU−100以上の強度を示すことができる。また、インスリン分解の主要なメカニズムは希釈したタンパク質溶液よりも濃縮したタンパク質溶液で速くなるため、内因的作用強度が高いと、強度は同等であるが、タンパク質濃度が高い、対応するインスリン類似体製剤と比較し、製剤の安定性が高くなる。同じ分子学的設計では、これら2つの相補的アプローチは互いに補い合い、製剤の強度、作用速度、および安定性を同時に最適化させることができる。
哺乳類に皮下または静脈内注射した場合に生物学的作用強度が高くなる即効型インスリン類似体を設計し、U−100〜U−1000の様々な強度の製剤が同等の薬物動態学的および薬力学的特性を示すようにするためには、相補的課題が3つあり、それぞれ先行する解決策はない。本発明では、これらの各課題を同時に克服することができる分子学的設計1種類を提供する。順に各課題を取り上げる。
最初の課題はin vivoでの作用強度をどのように高くするかである。この問題は、インスリン類似体のインスリン受容体に対する生化学的親和性の上昇による問題とは異なり、単に、最終的には標的細胞内の貯蔵庫から形質膜にGlut4グルコーストランスポーターが移行し、その結果、血糖濃度が低下する、in vivoにおける複雑な分子および細胞イベントの道筋の最初の段階を示しているにすぎない。(インスリン受容体に対する親和性が亢進または低下する)in vitro作用強度が著しく異なるヒトインスリンと類似体は、哺乳類における血糖降下作用の点では等しい効果を有する可能性があることは周知がある(Vφlund, A., Brange, J., Drejer, K., Jensen, I., Markussen, J., Ribel, U., Sφrensen, A.R., and Schlichtkrull, J. (1991) In vitro and in vivo potency of insulin analogues designed for clinical use.Diabet.Med.8:839−47)。in vivoでの作用強度が高くなったインスリン類似体設計の課題は、その作用強度とin vitro細胞活性試験(例えば、マウス脂肪細胞またはHEP−G2肝細胞の組織培養;Vφlund, A., et al.同書)との間に関連性がないことでさらに増大する。このように関連性がないため、また特にインスリン受容体に対する親和性が高いインスリン類似体で作用強度は高くなっていないため、原則としてでも、in vivoで作用強度の高い即効性類似体が存在するか否かが、当該分野で分かっていない。したがって、本発明の最初の驚くべき観点は、in vivoの作用強度を実際に高くできることであり、インスリン類似体のインスリン受容体(IR)に対する親和性を低下させる同時的な分子修飾の正味の作用にもかかわらず、このような作用強度の上昇が生じるということである。我々のデザインでは、B24位のフェニルアラニンのハロゲン化誘導体と関連した1若しくはそれ以上の酸性置換を利用しており、1型インスリン様成長因子(IGF)受容体(IGF−1R)に対する親和性も低下する。
第2の発明の驚くべき観点は、実用的なインスリン製剤として安全及び有効な製剤とすることができるように、そのようなインスリン類似体が同時に自己会合の低下を示し、それにより皮下会合で即効的な作用を示すが、化学的および物理的分解に対する安定性をまだ十分維持するように設計することができる点である。インスリン類似体の上記2つの特性により、分裂促進性が上昇しないことはさらに驚きである。これら3つの好ましい特徴を集合させるには、同時に3つの修飾が必要であり、いずれか1つのみでは上記の利益は得られず、実際はインスリン類似体の安全性または有効性に有害になると予想される。3つの修飾とは、(ii)B10位のヒスチジンをアスパラギン酸に置換する、(ii)A8、B29、および/またはB29位に1若しくはそれ以上の酸性修飾基を導入する、またはB鎖のジペプチドC末端を伸長する、および(iii)B24位のフェニルアラニンの芳香環にハロゲン原子を導入することである。理論により制約されることは望まないが、我々は、本発明のインスリン類似体のin vivoでの作用強度上昇が、受容体連結に対する標的組織の細胞シグナル伝達を反映すると予測している。
本発明の製剤は、肥満、2型糖尿病、および著しいインスリン抵抗性を示す西洋社会の患者に偏って利益を与えると予想している。そのような臨床的特徴は、アフリカ系アメリカ人、スペイン系アメリカ人、および土着のアメリカ人部族など、主張が不十分な少数民族への負担を増す。タンパク質1ナノモルあたりの生物活性が高くなっているため、本発明の製剤はインスリンポンプのリザーバの寿命を延長し、このようなポンプの小型化を可能にする上でも有用である。
したがって、本発明の観点は、皮下注射において即効性の薬物動態学的および薬力学的特性を示すインスリン類似体を提供することである。本発明の類似体は、B10位にアスパラギン酸、およびさらにA8、B28、および/またはB29位の1若しくはそれ以上の位置にグルタミン酸を含む。本発明のインスリン類似体は、B24位のフェニルアラニンの芳香環に(水素原子の代わりに)1若しくはそれ以上のハロゲン原子も含む。インスリン類似体のインスリン受容体(IR−AおよびIR−Bイソ型)に対する絶対的in vitro親和性は、野生型ヒトインスリンの5〜100%の範囲であることは、本発明のさらなる観点であるため、ホルモン−受容体複合体が滞留時間の延長を示す可能性は低く、理論により制約されることは望まないが、このような滞留時間の延長は、哺乳類の発癌リスクの上昇または培養時の癌細胞株のより急速な増殖と関連すると考えられる。また、インスリン類似体の1型インスリン様成長因子受容体(IGF−1R)に対する絶対的in vitro親和性が野生型ヒトインスリンの10〜100%の範囲であることは、本発明のさらなる観点であるため、ホルモン/IGF−1R複合体が滞留時間の延長を示す、または野生型ヒトインスリンを介する有糸分裂誘発よりも過剰のIGF−1R関連有糸分裂誘発を媒介する可能性は低い。
上記の特徴の組み合わせは、B24位のフェニルアラニン芳香環のハロゲン化修飾と合わせて、酸性アミノ酸置換の新規の組み合わせにより与えられる。インスリン単量体表面と比較した本芳香環の構造的環境を図3に示す。理論により制約されることは望まないが、我々は、B24のハロゲン化修飾がインスリン受容体およびIGF−1R受容体の保存されたB24関連結合ポケットを混乱させ、AspB10の滞留時間を延長させ、3種類のホルモン受容体複合体(IR−A、IR−B、およびIGF−1R)の親和性を高める作用を軽減すると推測している。これも理論により制約されることは望まないが、さらに我々は、(AspB10によって与えられる)B10位の負電荷と(これらの部位の1若しくはそれ以上の酸性アミノ酸置換によって与えられる)A8、B28、および/またはB29の1若しくはそれ以上の負電荷を合わせた非相加的作用は、細胞レベルでのホルモン−受容体連結に対するインスリンシグナルの強度を増大させると推測している。このモデルでは、1分子当たりで評価した場合、(糖尿病を有する哺乳類の血糖濃度制御と関連し、)インスリン類似体のin vivo作用強度を増加させるのは、後者の強度増大である。
一般に、本発明はB10位にアスパラギン酸、B24位にハロゲン置換フェニルアラニン誘導体、およびA8、B28、および/またはB29位の1若しくはそれ以上の酸性アミノ酸置換を有するインスリン類似体を提供する。したがって、本発明は、構成要素の修飾のいずれか1つによって与えられた念願の臨床的利益を一緒に提供する修飾の組み合わせを含むインスリン類似体の新規クラスに関する。本発明の類似体は、ジペプチドC末端の伸長(B31およびB32位の残基)を含む変異体B鎖を含み、少なくとも1残基が、これに制限されるものではないが、Glu−Glu、Glu−Ala、Ala−Glu、Glu−Asp、Ser−Aspなどの酸性残基である。代わりに、本発明の類似体は、選択的に、(i)残基B1、B1−B2、またはB1−B3がない、および/または(ii)残基B30がないなど、B鎖の切断を含む。本発明の別の類似体は、B28位の酸性アミノ酸置換と関連してB29位にプロリンを含む。本発明のさらに別の類似体は、A13位にトリプトファン、A14位にグルタミン酸、および/またはA21位にグリシンを含む。
図1Bは、インスリン様構造および不規則な接続ペプチド(点線)から成るプロインスリンの構造モデルである。
図1Cは、B鎖のB27およびB30位を示す、ヒトインスリン配列(配列ID番号:2および3)の略図である。
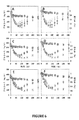
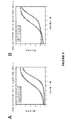
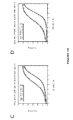
(AおよびB)記号:(△)5μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29−インスリン、(▲)10μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29−インスリン、および(■、枠なし)10μgの用量のインスリン・リスプロ。希釈液群およびインスリン・リスプロ群のラット数は各9匹、類似体T−0335の各用量でラット数4匹、誤差バー、標準誤差。類似体オルト−フルオロ−PheB24、GluB29−インスリンもT−0335とする。
(CおよびD)記号:(*)10μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29−インスリン、および(■、枠なし)10μgの用量のインスリン・リスプロ。希釈液群およびインスリン・リスプロ群のラット数は各9匹、類似体T−0339の各用量でラット数4匹、誤差バー、標準誤差。類似体オルト−フルオロ−PheB24、GluB29−インスリンもT−0339とする。
(EおよびF)記号:(*)10μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29−インスリンGluA21、GluA8誘導体、および(■、枠なし)10μgの用量のインスリン・リスプロ。希釈液群およびインスリン・リスプロ群のラット数は各9匹、類似体T−0348の各用量でラット数4匹、誤差バー、標準誤差。類似体オルト−フルオロ−PheB24、GluB29−インスリンもT−0348とする。本類似体の誤差バー(濃い垂直線の部分)は場合によっては記号よりも小さいため、図では見えていない。
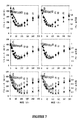
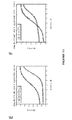
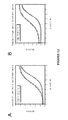
(AおよびB)記号:(▲)20μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29−インスリン、および(■)20μgの用量のインスリン・リスプロ。希釈液群のラット数は12匹、インスリン・リスプロ群のラット数は11匹、本類似体群のラット数は4匹とした。誤差バー、標準誤差。類似体オルト−フルオロ−PheB24、GluB29−インスリンもT−0335とする。
(CおよびD)記号:(◆)20μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29、GluB31、GluB32−インスリン、および(■)20μgの用量のインスリン・リスプロ。希釈液群のラット数は12匹、インスリン・リスプロ群のラット数は11匹、本類似体群のラット数は4匹とした。誤差バー、標準誤差。類似体オルト−フルオロ−PheB24、GluB29、GluB31、GluB32−インスリンもT−0336とする。
(EおよびF)記号:(*、灰色の×)10μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29−インスリンのGluA8誘導体、(×、黒色の×)20μgの用量のAspB10、オルト−フルオロ−PheB24、GluB29−インスリンのGluA8誘導体、(□、枠なし)10μgの用量のインスリン・リスプロ、および(■)20μgの用量のインスリン・リスプロ。希釈液群のラット数は12匹、20μgの用量のインスリン・リスプロ群のラット数は11匹、10μgの用量のインスリン・リスプロ群のラット数は7匹、本類似体群のラット数は各用量11匹とした。誤差バー、標準誤差。類似体オルト−フルオロ−PheB24のGluA8類似体、GluB29−インスリンもT−0339とする。
本発明は、分子レベルでのin vivo生物学的作用強度が増加し、広範なタンパク質濃度および製剤強度(典型的にはU−100〜U−500、選択的にU−1000の高さも可能)での作用が速く、IR−A/IR−B受容体結合親和性が野生型ヒトの親和性に対して5〜100%の範囲の絶対的親和性であり(下限はプロインスリンに対応するように選択した)、IGF−1Rの親和性が野生型ヒトインスリン以下であり、亜鉛イオンなしの野生型ヒトインスリンのベースラインの安定性に対して亜鉛イオンなしの熱力学的安定性が高いインスリン類似体に関するものである。
皮下デポー製剤からの速い吸収動態が、単量体または二量体であるが、これよりも高次の自己会合状態ではないインスリン類似体により、タンパク質濃度0.6〜6.0mM(正式な単量体濃度により計算)、中性pHの無亜鉛溶液中で発生することは、本発明の特徴である。当該分野で既知のとおり、従来のプランディアル製剤は、六量体−六量体相互作用により伸長し、亜鉛で安定化した、または亜鉛イオンとは無関係の六量体など、自己会合の状態間に考えられる連続した結合平衡を示す。この戦略の分子学的実装は、(i)野生型ヒトインスリンと比較して無亜鉛単量体または二量体として超安定であり、(ii)分子レベルまたはナノモルレベルで(ホルモン制御による血糖濃度の低下により評価した)生物学的作用強度の上昇を示す、新規クラスのインスリン類似体を提供することである。理論により制約されることは望まないが、バイアル、ペン、又はポンプリザーバにおいて無亜鉛インスリン類似体単量体および二量体は本質的に安定であるため、安定な製剤とすることができるが、血流中での前記類似体の本質的作用強度は、U−200〜U−500および選択的にU−1000の高さの製剤強度でプランディアル血糖コントロールを示し、増大した本質的安定性のため、現在のインスリン類似体プランディアル製剤と比較し、低いタンパク質濃度で特定の強度を達成することができる。血糖コントロールに対する作用強度の上昇は、分裂促進性、すなわち、癌リスクおよび癌増殖の観点からは望ましくない明確なシグナル伝達経路の亢進とは関連していないことが本発明の特徴である。
制限されない例として、アスパラギン酸がB10位に保持され、フェニルアラニンのハロゲン化誘導体がB24位に保持され、A8、B28、および/またはB29により提供される1若しくはそれ以上の部位に1若しくはそれ以上の酸性アミノ酸置換が存在する限り、インスリン類似体がブタ、ウシ、ウマ、およびイヌインスリンなどの動物インスリン由来のA鎖およびB鎖配列で作られることも予測される。そのようなヒトインスリンまたは動物インスリン由来の変異型B鎖は任意にC末端ジペプチドの伸長を含むが(それぞれの残基の位置はB31およびB32とする)、これらのC末端で伸長した塩基の少なくとも1つは酸性アミノ酸である。加えてまたは代わりに、本発明のインスリン類似体はB1〜B3残基の欠失を含む、またはB28位にプロリンのない変異型B鎖と結合してもよい(例えば、AspB28またはGluB28とB29位のリジンまたはプロリンとの組み合わせ)。A13位のロイシンを選択的にトリプトファン置換し、A14位のチロシンを選択的にグルタミン酸と置換してもよい。
さらに、本発明のインスリン類似体は、ピキア酵母(Pichia pastoris)、サッカロミケス酵母(Saccharomyces cerevisciae)、または他の酵母発現種または菌株の酵母生合成における、前駆体ポリペプチドのLysに対するタンパク質分解に由来することも想定される。そのような菌株は、改変tRNA合成酵素および直交ナンセンス抑圧によりB24位にハロゲン修飾フェニルアラニンを挿入するように改変することもできる。本発明のインスリン類似体のBドメインは、(熱力学的安定性、受容体結合親和性、およびフィブリル化抵抗性を増大させる目的で)選択的にB20および/またはB23位のDアミノ酸など、非標準的置換を含んでもよい。B24位のハロゲン化修飾は、PheB24の2つの環位(すなわち、オルト−F−PheB24、オルト−Cl−PheB24、またはオルト−Br−PheB24)とすることができる。選択的に、前記類似体は、熱力学的安定性および受容体結合活性を増大することを目的とし、TyrB16および/またはTyrB26(3−モノ−ヨード−Tyrまたは[3,5]−ジ−ヨード−Tyr)の芳香環にヨウ素置換を含んでもよい。C末端のThrB27、ThrB30、または1若しくはそれ以上のセリン残基を単独または組み合わせて単糖類付加体で修飾することも想定され、例はO−結合N−アセチル−β−D−ガラクトピラノシド(GalNAc−Oβ−SerまたはGalNAc−Oβ−Thr)、O−結合α−D−マノピラノシド(マンノース−Oβ−Serまたはマンノース−Oβ−Thr)、および/またはα−D−グルコピラノシド(グルコース−Oβ−Serまたはグルコース−Oβ−Thr)により示される。
様々な実施形態では、別のまたは追加の変異を本明細書のインスリン類似体に導入し、薬効(例えば、作用発現またはその持続時間)、受容体の選択性、グルコースの反応性、および/または安定性(例えば、熱安定性)に影響を及ぼすことができ、一部の実施形態では、前記変異が濃縮された形態で有効となる、および/またはポンプ系での送達に適切となる。
本明細書で説明した修飾は、リスプロ・インスリン(Lys B28、Pro B29)、インスリン・アスパルト(Asp B28)、およびDKP−インスリンなど、多数の既存の即効型インスリン類似体に作られる。DKPインスリンは、置換Asp B10(D)、Lys B28(K)およびPro B29(P)を含む。さらに、または代わりに、前記インスリン類似体は1若しくはそれ以上の以下の修飾を含んでもよい。
即効型インスリン類似体に関する一部の実施形態では、前記インスリン類似体がA8位にアミノ酸置換を有する(例えば、Glu以外)。A8側鎖は、インスリン単量体のA鎖表面から溶媒に、およびその集合体ではインスリン六量体に向かって突出すると考えられるため、立体的な衝突がなく、多様な側鎖をつくることができる。インスリンの天然構造では、この位置はA1−A8 α−ヘリックスのC末端残基である。A8の置換は(野生型Thrと比較して)そのC−Cap傾向を高めるため、A1−A8 α−ヘリックスセグメントの安定性が増大する。A8の多様な置換を、当該分野で既知のB鎖置換を含む即効型インスリン類似体に導入する場合、野生型ヒトインスリンと比較し、熱力学的安定性が上昇し、フィブリル化への抵抗性が増加するが、インスリン受容体の親和性は実質的に維持される。典型的なA8の置換は、トリプトファン、メチオニン、リジン、またはヒスチジンなどである。これらの実施形態に沿った他の典型的な修飾については、米国特許第8,993,516号明細書に説明され、この参照によりその全体が本明細書に組み込まれる。
一部の実施形態では、前記インスリン類似体がより速い六量体の分解を示すため、皮下注射後の吸収が加速される。一部の実施形態では、ハロゲン化Pheの代わりに、前記インスリン類似体がB24位にシクロヘキサニルアラニン(Cha)などの非標準アミノ酸を導入し、ヒトにおけるインスリン吸収の律速段階である六量体の分解速度を著しく高める。これは、芳香族アミノ酸側鎖を、平面ではないが、フェニルアラニンとほぼ同サイズおよび同形状の非芳香族類似体で置換することにより達成され、前記類似体は、少なくとも、前記天然型芳香族側鎖を含む対応するインスリンまたはインスリン類似体の生物学的活性の一部を維持する。この参照により本明細書に組み込まれる、US 2014/0303076を参照のこと。さらに、例えば、B29位の非標準アミノ酸に追加置換することでさらに利益が得られる可能性がある。典型的な非標準的アミノ酸は、ノルロイシン、アミノブチル酸、アミノプロピオン酸、オルニチン、ジアミノブチル酸、およびジアミノプロピオン酸を含む。この参照により本明細書に組み込まれる、US 2014/0303076を参照のこと。
さらに他の実施形態では、製造工程でジスルフィド対合およびタンパク質の折り畳みを達成後、前記インスリン類似体が残基B1〜B3の非必須性を利用している。残基B1〜B3の除去は、野生型の残基Asn B3の位置にB3位のLysまたはArgを含む前駆体でトリプシンの作用により達成することができる。そのような前駆体の例は、製剤APIDRA(登録商標)の有効成分である類似体インスリン・グルリジンである(Sanofi−Aventis)。類似体には残基PheB1−ValB2−AsnB3がないため、短縮B鎖(27残基)を含む。前記短縮B鎖は、室温以上でもフィブリル化に抵抗性を与え、インスリン受容体に天然型同様結合できるようになる。これらの実施形態の典型的な修飾については、WO 116753に説明され、この参照によりその全体が本明細書に組み込まれる。
一部の実施形態では、前記インスリン類似体が、一連のタンパク質濃度、および皮下注射後に急速に吸収する形状の製剤とすることができる、十分な化学的安定性および物理的安定性の亜鉛安定化インスリン六量体を形成する。例えば、前記インスリン類似体は3つのグルタミン酸残基Glu A8、Glu B31、およびGlu B32を有してもよく、当該分野で既知のB鎖の置換と組み合わせて使用され、インスリン六量体の分解を加速する、または同製剤の野生型インスリンと比較し、皮下注射後のインスリン類似体の吸収がさらに速くなることと関連する。例えば、前記インスリン類似体は(a)A8位のグルタミン酸(Glu)、(b)B鎖の2残基Glu B31−Glu B32の伸長、および(c)選択的にB24位の非飽和アミノ酸(例えば、シクロヘキサニルアラニンまたはフェニルアラニンの芳香環のハロゲン化誘導体)を組み込むことで修飾可能である。この参照により本明細書に組み込まれる、WO 2013/110069を参照のこと。
以下にさらに詳細に説明される通り、一部の実施形態では、前記インスリン類似体が即効型インスリン類似体のこれまでの制限、つまり、これらが野生型インスリンよりもフィブリル化に対する感受性が高いことを取り上げている。前記インスリン類似体は、B27および/またはB30にO−結合単糖類ピラノシド付加体を有してもよい(例えば、マンノピラノシド、N−アセチル−ガラクトピラノシド、またはグルコピラノシド)。これらの類似体は、B27およびB30位のトレオニン残基の天然での発生および予備成形されたコアのインスリン(des,−オクタペプチド[B23−B30]−インスリン[DOI]とする)にこれらの部位で炭水化物付加体を修飾した合成ペプチドを結合する、トリプシンを介した半合成の可能性を生かしている。これらの実施形態の典型的なインスリン類似体については、WO 015078に説明され、この参照によりその全体が本明細書に組み込まれる。
さらに他の実施形態では、前記インスリン類似体の血流への急速な吸収が、少なくとも一部はB鎖のSite−1関連表面およびそれに隣接した部位の置換または修飾のためである。さらに、標的細胞シグナル伝達の持続期間短縮は、A鎖および/またはB鎖Site−2関連表面の変異または修飾によって得られる。Site−2関連の置換は、B13、B17、A12、A13、およびA17の1若しくはそれ以上の位置の修飾である。この参照により本明細書に組み込まれる、WO 2014/145593を参照のこと。
一部の実施形態では、前記インスリン類似体がB26のモノ―またはジ―ヨード-Tyrを有する即効型インスリン類似体(例えば、3−I−Tyr B26)であり、これが、例えばバイアルまたは送達器具中でR6六量体を安定化する。この参照により本明細書に組み込まれる、米国仮出願第62/019,355号明細書を参照のこと。
一部の実施形態では、前記インスリン類似体が前記インスリン受容体に結合したグルコース反応性結合を示す。これらの実施形態の典型的なインスリン類似体については、米国仮出願第62/132,704号明細書および第62/133,251号明細書に開示され、この参照によりその全体が本明細書に組み込まれる。一部の実施形態では、そのような類似体が2つの重要要素を含む。第1は、A1位のグリシン(Gly A1)のαアミノ基、または選択的に、A1位で耐性に優れたアミノ酸置換としてのDリジン(D−Lys A1)のεアミノ基、またはA4位の置換としてのLリジンのεアミノ基(L−Lys A4)にある(ペーサー要素を含む)フェニルボロン酸誘導体である。フェニルボロン酸基は、単糖類内のジオールと結合する。前記スペーサー要素は3〜16炭素原子の直鎖型アシル鎖を含んでもよく、その末端または末端付近に選択的に1若しくはそれ以上の窒素原子を含んでもよい。第2の要素はB27、B28、B29、B30位の1若しくはそれ以上にある、または1残基B31(B31)または2残基(B31−B32)を含むB鎖のペプチド伸長に結合したN結合またはO結合単糖、二糖、またはオリゴ糖である。O結合単糖類の例は、セレンまたはトレオニン誘導体であり、N結合単糖類の例はアスパラギンまたはグルタミン誘導体である。
単糖類の例はグルコース、マンノース、およびN−アセチル−ガラクトースである。前記類似体は、皮下デポー製剤の表面レクチンに前記インスリン類似体のグルコース感受性結合を提供することを目的としたメカニズムとして、(スペーサー要素とともに)残基B1に結合した追加フェニルボロン酸基(またはそのハロゲン誘導体)を選択的に含んでもよい。
一部の実施形態では、前記インスリン類似体は、好ましくはインスリン受容体B(IR−B)に対してインスリン受容体A(IR−A)に結合する。典型的な類似体およびその有益な特性については、WO 0195896に説明され、この参照によりその全体が本明細書に組み込まれる。例えば、前記類似体は単鎖インスリンであり、前記インスリンA鎖およびインスリンB鎖は、プロインスリンリンカーと比較し、切断リンカーと結合する。例えば、前記リンカーは15アミノ酸長未満とすることができ(例えば、4〜13アミノ酸長)、一部の実施形態では、配列Gly−Pro−Arg−Argを有する。
一部の実施形態では、前記インスリン類似体を修飾し、I型インスリン様成長因子(IGFR)に対するその相対的親和性を低下させるように修飾するが、実質的には前記インスリン受容体(IR)に対する親和性が保持または改善する。この点についての典型的な修飾はWO 0184488に説明され、この参照によりその全体が本明細書に組み込まれる。例えば、前記インスリン類似体がA0位(つまり、A鎖のアミノ末端の付加)にアミノ酸付加体を含む、またはA4、A8、またはA21位にアミノ酸置換を含む、またはその組み合わせである。インスリンの天然構造では、残基A1−A8がα−ヘリックスを有する。このセグメントはインスリンおよびインスリン類似体のIRおよびIGFRへの結合に関与すると考えられる。1つの例では、A0伸長がArg、A8置換がArg、およびA21置換がGlyである。別の例では、A0伸長がArg、A8置換がHis、およびA21置換がGlyである。別の例では、A4置換がHisまたはAla、A8置換がHisである。さらに別の例では、Al置換がDアミノ酸、A8置換がジ−アミノ−酪酸である。代わりに、(この参照によりその全体が本明細書に組み込まれる)米国仮出願第62/105,713号明細書に説明されるとおり、前記類似体がB10位のAspとB24位のペンタ−フルオロ−Pheとを含み、これがさらにLys B3およびGlu B29と結合する。
フィブリル化を加速または阻害する因子が広範に検討された。無亜鉛インスリンは広範な条件でフィブリル化を受けやすく、天然の二量化および高次の自己会合を妨げる因子により促進される。活性型インスリンの構造は、His B10の側鎖が配位した軸亜鉛イオンにより安定化されると考えられる。商標NOVOLOG(登録商標)およびHUMALOG(登録商標)として販売されるインスリン類似体は、フィブリル化がより速く、物理的安定性が低い。フィブリル化はインスリンの製造、保存、および使用における重大な懸念であり、糖尿病治療用のインスリン類似体は、例えば高温、低pHにより増強する。
一部の実施形態では、前記インスリン類似体がHis A4およびHis A8をともに有し、残基B1にヒスチジン置換を有する。前記His B1置換が存在する場合、B1 His残基の側鎖とB5ヒスチジン側鎖の組み合わせは、潜在的B1−B5 bi−ヒスチジンZn結合部位を有し、Zn依存性にフィブリル化を保護すると考えられる。同様に、His A4、His A8置換も潜在的bi−ヒスチジンZn結合部位を提供し、フィブリル化から保護する。これらの実施形態の類似体については、US 8,343,914に説明され、この参照によりその全体が本明細書に組み込まれる。
これらまたは他の実施形態では、少なくとも一部はB24、B25、および/またはB26位のハロゲン化フェニルアラニンによりフィブリル化に対する抵抗性が達成され、塩素化フェニルアラニンまたはフッ素化フェニルアラニンとすることができる。様々な実施形態では、前記ハロゲン化フェニルアラニンがオルト−モノフルオロ−フェニルアラニン、オルト−モノブロモ−フェニルアラニン、オルト−モノクロロ−フェニルアラニン、またはパラ−モノクロロ−フェニルアラニンである。これらの実施形態に沿った典型的な類似体については、US 8,921,313に開示され、この参照によりその全体が本明細書に組み込まれる。
さらに他の実施形態では、安定性の改善を示した前記インスリン類似体が、B24位のメチル化フェニルアラニン置換およびB鎖ポリペプチドのカネボキシ末端への2つのアミノ酸付加から選択される少なくとも1つの変更を含むB鎖プリペプチドを有する。B31位の最初のアミノ酸はグルタミンおよびアスパラギン酸から選択され、B32位の第2のアミノ酸はグルタミン、アラニン、およびアスパラギン酸から選択される。前記メチル化フェニルアラニンはオルト−モノフルオロ−フェニルアラニン、メタ−モノブロモ−フェニルアラニン、またはパラ−モノクロロ−フェニルアラニンとしてもよい。これらの実施形態はUS 8,399,407に説明され、この参照によりその全体が本明細書に組み込まれる。一部の実施形態では、US 2014/0128319に説明される通り、前記ハロゲン化フェニルアラニンがペンタ−フルオロ−フェニルアラニンであり、この参照により本明細書に組み込まれる。
一部の実施形態では、フィブリル化抵抗性が、少なくとも一部はUS 8,192,957に説明される構造を有する単鎖インスリンにより達成することができ、この参照によりその全体が本明細書に組み込まれる。これらの実施形態はインスリンのA鎖およびB鎖のアミノ酸置換とリンカーペプチド配列を組み合わせ、単量体タンパク質の等電点が野生型ヒトインスリンと同等またはこれ未満となるようにすることで、中性のpH条件でタンパク質の溶解性が保存されるようにしている。一部の実施形態では、前記CペプチドがGGGPRRおよびGGPRRから選択されるアミノ酸配列を有する。
さらに、ヒトと動物のインスリンが同様であり、過去にヒト糖尿病患者で動物インスリンが使用されていたことを考慮すると、インスリン配列に他の軽度の修飾、特に「保存的」と考えられるこれらの置換を導入可能であることも想定される。例えば、本発明から離れずに、同じ側鎖のアミノ酸基内にさらにアミノ酸の置換を加えることもできる。これには、アラニン(AlaまたはA)、バリン(ValまたはV)、ロイシン(LeuまたはL)、イソロイシン(IleまたはI)、プロリン(ProまたはP)、トリプトファン(TrpまたはW)、フェニルアラニン(PheまたはF)、およびメチオニン(MetまたはM)といった中性疎水性アミノ酸を含む。同様に、天然型極性アミノ酸は、グリシン(GlyまたはG)、セリン(SerまたはS)、トレオニン(ThrまたはT)、チロシン(TyrまたはY)、システイン(CysまたはC)、グルタミン(GluまたはQ)、およびアスパラギン(AsnまたはN)の群内で互いに置換することができる。酸性アミノ酸はアスパラギン酸(AspまたはD)およびグルタミン酸(GluまたはE)である。(リジン(LysまたはK)、アルギニン(ArgまたはR)およびヒスチジン(HisまたはH)を含む)塩基性アミノ酸置換の導入は、このクラスの類似体で上昇した正味の負電荷を維持するためには好ましくない。ほかに記載がない限り、または内容から明らかな場合は、本明細書に示したアミノ酸はLアミノ酸と考える。標準的なアミノ酸は、同じ化学的クラスに属する非標準的アミノ酸によって置換することもできる。
比較のため、ヒトプロインスリンのアミノ酸配列を配列ID番号:1として示す。
配列ID番号:1(ヒトプロインスリン)
Phe−Val−Asn−Gln−His−Leu−Cys−Gly−Ser−His−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Phe−Phe−Tyr−Thr−Pro−Lys−Thr−Arg−Arg−Glu−Ala−Glu−Asp−Leu−Gln−Val−Gly−Gln−Val−Glu−Leu−Gly−Gly−Gly−Pro−Gly−Ala−Gly−Ser−Leu−Gln−Pro−Leu−Ala−Leu−Glu−Gly−Ser−Leu−Gln−Lys−Arg−Gly−Ile−Val−Glu−Gln−Cys−Cys−Thr−Ser−Ile−Cys−Ser−Leu−Tyr−Gln−Leu−Glu−Asn−Tyr−Cys−Asn
配列ID番号:1(ヒトプロインスリン)
Phe−Val−Asn−Gln−His−Leu−Cys−Gly−Ser−His−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Phe−Phe−Tyr−Thr−Pro−Lys−Thr−Arg−Arg−Glu−Ala−Glu−Asp−Leu−Gln−Val−Gly−Gln−Val−Glu−Leu−Gly−Gly−Gly−Pro−Gly−Ala−Gly−Ser−Leu−Gln−Pro−Leu−Ala−Leu−Glu−Gly−Ser−Leu−Gln−Lys−Arg−Gly−Ile−Val−Glu−Gln−Cys−Cys−Thr−Ser−Ile−Cys−Ser−Leu−Tyr−Gln−Leu−Glu−Asn−Tyr−Cys−Asn
ヒトインスリンA鎖のアミノ酸配列を配列ID番号:2として示す。
配列ID番号:2(ヒトA鎖、残基位置A1−A21)
Gly−Ile−Val−Glu−Gln−Cys−Cys−Thr−Ser−Ile−Cys−Ser−Leu−Tyr−Gln−Leu−Glu−Asn−Tyr−Cys−Asn
配列ID番号:2(ヒトA鎖、残基位置A1−A21)
Gly−Ile−Val−Glu−Gln−Cys−Cys−Thr−Ser−Ile−Cys−Ser−Leu−Tyr−Gln−Leu−Glu−Asn−Tyr−Cys−Asn
ヒトインスリンB鎖のアミノ酸配列を配列ID番号:3として示す。
配列ID番号:3(ヒトB鎖、残基位置B1−B30)
Phe−Val−Asn−Gln−His−Leu−Cys−Gly−Ser−His−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Phe−Phe−Tyr−Thr−Pro−Lys−Thr
配列ID番号:3(ヒトB鎖、残基位置B1−B30)
Phe−Val−Asn−Gln−His−Leu−Cys−Gly−Ser−His−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Phe−Phe−Tyr−Thr−Pro−Lys−Thr
本発明の修飾インスリンのアミノ酸配列は、配列ID番号:4として一般形態で示され、6つのシステイン残基が対になり、野生型ヒトインスリン同様、3つのジスルフィド架橋を提供する。
配列ID番号:4(インスリン類似体)
A鎖
Gly−Ile−Val−Glu−Gln−Cys−Cys−Xaa1−Ser−Ile−Cys−Ser−Xaa2−Xaa3−Gln−Leu−Glu−Asn−Tyr−Cys−Xaa4
B鎖
Xaa5−Xaa6−Xaa7−Gln−His−Leu−Cys−Gly−Ser−Asp−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Xaa8−Phe−Tyr−Thr−Xaa9−Xaa10−Thr−Xaa11−Xaa12
式中、Xaa1(A8位)はThrまたはGluであり、Xaa2はLeu、Tyr、またはTrpであり、Xaa3はTyrまたはGluであり、Xaa4はAsn、Asp、Ala、またはGlyであり、Xaa5−Xaa6−Xaa7は野生型ヒトインスリンではPhe−Val−Asn、またはN末端欠失変異体Val−Asn(des−B1)、Asn(des−B1,B2)、またはなし(des−B1−B3)であり、Xaa8は芳香環の1若しくはそれ以上の水素原子がフッ素(F)、塩素(C)、または臭素(Br)の群のハロゲン原子で置換されたフェニルアラニン誘導体であり、Xaa9またはXaa10の少なくとも1つが酸性アミノ酸であり、選択的に、Xaa11−Xaa12がB鎖のC末端ジペプチド伸長を提供し、少なくとも1つの残基が酸性側鎖である。
配列ID番号:4(インスリン類似体)
A鎖
Gly−Ile−Val−Glu−Gln−Cys−Cys−Xaa1−Ser−Ile−Cys−Ser−Xaa2−Xaa3−Gln−Leu−Glu−Asn−Tyr−Cys−Xaa4
B鎖
Xaa5−Xaa6−Xaa7−Gln−His−Leu−Cys−Gly−Ser−Asp−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Xaa8−Phe−Tyr−Thr−Xaa9−Xaa10−Thr−Xaa11−Xaa12
式中、Xaa1(A8位)はThrまたはGluであり、Xaa2はLeu、Tyr、またはTrpであり、Xaa3はTyrまたはGluであり、Xaa4はAsn、Asp、Ala、またはGlyであり、Xaa5−Xaa6−Xaa7は野生型ヒトインスリンではPhe−Val−Asn、またはN末端欠失変異体Val−Asn(des−B1)、Asn(des−B1,B2)、またはなし(des−B1−B3)であり、Xaa8は芳香環の1若しくはそれ以上の水素原子がフッ素(F)、塩素(C)、または臭素(Br)の群のハロゲン原子で置換されたフェニルアラニン誘導体であり、Xaa9またはXaa10の少なくとも1つが酸性アミノ酸であり、選択的に、Xaa11−Xaa12がB鎖のC末端ジペプチド伸長を提供し、少なくとも1つの残基が酸性側鎖である。
本発明のインスリン類似体のアミノ酸配列は、一部、配列ID番号:5〜11(完全B鎖を含む)および配列ID番号:12〜18(N末端短縮B鎖を含む)で示され、略して野生型ヒトインスリンと比較した特定の修飾のみが提供される(すなわち、具体的な配列の例はXaa1、Xaa2、Xaa3、Xaa4、Xaa5、Xaa6、Xaa7、Xaa8、Xaa9、Xaa10、Xaa11、およびXaa12を特徴とする。配列ID番号:5〜11で示される分子は、B鎖のB1、B2、およびB3位のそれぞれに野生型残基Phe−Val−Asnを含み、配列ID番号:6〜18で示される分子は残基B1−B3がない短縮B鎖を含む。各ケースで、残基B24はオルト−フルオロ−フェニルアラニンを含む。配列ID番号:5で示される配列は、配列ID番号:4のインスリン類似体の具体例を提供するが、これらの例は配列ID番号:4で定義される類似体を組み合わせた空間を制限する意図はない。提供された配列コードは、分子命名の内部コードに関する。
本発明の類似体は、これに制限されるものではないが、配列ID番号:12〜18で例示されるB鎖のN末端欠失(des−B1、des−B1,B2、またはdes−B1−B3)を選択的に含んでもよい。これらのN末端残基は受容体結合に必要ないが、生合成単鎖前駆体に存在すると、小胞体の天然型ジスルフィド対の有効性を高めるため、生産収率が上昇すると考えられる。
以下のDNA配列は単鎖インスリン類似体をコードし、ピキア酵母(Pichia pastoris)の使用パターンを最適化したコードを有する。これらの単鎖インスリン類似体は、上記二本鎖インスリン類似体の産生の生合成中間体を提供する。各ケースで最終コドン(AAT)はストップコドンを表す。
53残基の単鎖インスリン類似体をコードし、AspB10およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:19として示す。
配列ID番号:19
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:19
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
53残基の単鎖インスリン類似体をコードし、AspB10およびAlaB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:20として示す。
配列ID番号:20
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:20
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
53残基の単鎖インスリン類似体をコードし、AspB10、GluA8、およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:21として示す。
配列ID番号:21
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:21
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
非標準的アミノ酸がコドンB24位(TAG)のナンセンス抑制により挿入されるように、53残基の単鎖インスリン類似体をコードし、AspB10およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:22として示す。
配列ID番号:22
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:22
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
非標準的アミノ酸がコドンB24位(TAG)のナンセンス抑制により挿入されるように、53残基の単鎖インスリン類似体をコードし、GluA8、AspB10、およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:23として示す。
配列ID番号:23
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:23
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:24〜28で提供される合成遺伝子群は、上記に示されたアミノ酸配列に従い、選択的にA13およびA14位に特定のアミノ酸置換をコードした一連のDNA配列を提供する。酵母の核遺伝子では、ロイシンがDNAコドンTTA、TTG、CTT、CTC、およびCTGでコードされ、チロシンがDNAコドンTATおよびTACによりコードされ、トリプトファンがDNAコドンTGGによりコードされ、グルタミン酸がDNAコドンGAAおよびGAGによってコードされることは、当該分野で既知である。
配列ID番号:24は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:24
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:24
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:25は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10およびAlaB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:25
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:25
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:26は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10、GluA8、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:26
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:26
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:27は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:27
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:27
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:28は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:28
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:28
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:29〜43で提供される合成遺伝子群は、配列ID番号:24〜28で定義される配列の特徴に加え、選択的にB1(配列ID番号:29〜33)、B2(配列ID番号:34〜38)またはB3(配列ID番号:39〜43)の3つのコドン位置の1つでリジン残基をコードする一連のDNA配列を提供し、生合成単鎖インスリン前駆体のそのようなリジン置換により、B鎖が上記のアミノ酸配列に従い、N末端欠失des−B1、des−B1、B2、またはdes−B1−B3を含む本発明のインスリン類似体を産生することができる。これらのN末端切断は、それぞれ生合成単鎖インスリン前駆体B1、B2、またはB3位の置換により方向づけられる。酵母の核遺伝子では、リジンがDNAコドンAAAおよびAAGによりコードされることは、当該分野で既知である。上述のとおり、酵母の核遺伝子では、ロイシンがDNAコドンTTA、TTG、CTT、CTC、およびCTGでコードされ、チロシンがDNAコドンTATおよびTACによりコードされ、トリプトファンがDNAコドンTGGによりコードされ、グルタミン酸がDNAコドンGAAおよびGAGによってコードされることは、当該分野で既知である。
配列ID番号:29は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:29
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:29
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:30は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびAlaB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:30
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:30
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:31は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10、GluA8およびGluB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:31
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:31
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:32は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:32
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:32
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:33は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:33
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:33
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:34は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:34
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:34
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:35は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびAlaB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:35
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:35
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:36は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10、GluA8およびGluB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:36
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:36
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:37は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:37
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:37
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:38は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:38
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:38
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:39は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:39
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:39
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:40は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびAlaB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:40
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:40
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:41は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10、GluA8およびGluB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:41
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:41
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:42は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:42
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:42
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:43は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:43
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:43
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
本発明の2つの単鎖インスリン類似体は、ピキア酵母(Pichia pastoris)の前駆体ポリペプチドの生合成により作成し、この系は開裂N末端伸長ペプチドとの天然型ジスルフィド架橋を含む折り畳みタンパク質を分泌する。この前駆体タンパク質のトリプシン開裂では、残基PheB1に始まりArgB22で終わる切断B鎖および完全A鎖を含む2本鎖インスリンフラグメントが生じる。前記前駆体ポリペプチドはその配列が配列ID番号:19〜28で与えられる合成遺伝子によってコードされ、各ケースで前記AspB10の置換を含み、選択的に追加置換GluA8、TrpA13、TyrA13、および/またはGluA14を含んでもよい。また、単鎖インスリン前駆体は、B24位のナンセンスコドンを含むと想定され、非標準的アミノ酸置換が組み換え型直交tRNA合成酵素により挿入されるようになっており、そのような前駆体はトリプシン処理されないが、代わりにリジン特異的エンドペプチダーゼにより開裂される。
本発明を例示するインスリン類似体の受容体結合親和性は、野生型ヒトインスリンとの関連で決定される(表1)。前記試験では、前記インスリン受容体のAイソ型を利用した。ヒトインスリンおよびインスリン・リスプロと比較し、本インスリン類似体は10〜60%の相対的親和性を保持していた。分裂促進性1型IGF−I受容体(IGF−1R)に対するこれらの類似体の親和性は、野生型ヒトインスリンと同等かそれよりも弱く(表2)、AspB10およびオルト−フルオロ−PheB24を含むが、B鎖に第2の酸性置換がない1つの類似体(T−0338)は、IGF−1Rに対して親和性を示し、野生型インスリンよりもわずかに強かった。受容体結合活性試験のプロトコールは以下の通りであった。マイイクロタイター・ストリップ・プレート(Nunc Maxisorb)を、AU5 IgG(リン酸干渉食塩水中40mg/ml、100μl/well)を用い、4℃で一晩インキュベートした。結合データを2つの部位の連続モデルにより分析した。データは非特異的結合(1μMヒトインスリン存在下での関連する膜に残った放射能の量)について修正した。すべての試験において、競合リガンド存在下で結合したトレーサーの割合は、リガンド欠乏人工物を回避するため、15%未満とした。解離定数(Kd)は、WhittakerおよびWhittakerが報告した数理モデルを当てはめて決定し(2005.J. Biol.Chem.280: 20932−20936)、前記モデルでは非相同的競合であると想定し、非線形回帰を利用した(Wang, 1995, FEBS Lett.360: 111−114)。
生物活性および薬効は、ストレプトゾトシンにより糖尿病とした雄Sprague−Dawleyラット(約300g)で検討した。内因性の作用強度は、時間t=0分でラット尾静脈にインスリン類似体の特定用量を静脈内ボーラス注射することで評価し、それぞれのデータは図4および6に示す。時間t=0分でのラットの皮下注射に対する薬力学的反応は、作用強度および生物学的利用能を統合した指標を提供し、インスリン作用の時間経過は、一部、皮下デポー製剤からの前記インスリン類似体の吸収速度を反映している。それぞれのデータは図5および7に提供される。皮下注射後1時間の血糖濃度の初期低下率を表3Aおよび3Bに示す。
本発明の類似体は、糖尿病Sprague−Dawleyラットに静脈内または皮下経路で注射した場合、ナノモルベースで(インスリン・リスプロと比較し)より大きな作用強度を示す。そのような向上は、図8に示すデータで例示される通り、前記類似体が低用量の場合(つまり、IC50値以下の場合)に最も明らかである。体重300グラムあたり10μgの用量、またはそれ以上の用量では、本発明の類似体は、表3Aおよび3Bで明らかな通り、ラットの生物学的変動の範囲内(ラットごとおよび週ごと)のインスリン・リスプロ(KP−インスリン)の用量として血糖濃度の同等の低下をもたらす。
前記インスリン類似体の熱力学的安定性は、報告があるとおり、CDによりモニターしたグアニジン変性により精査された(Hua, Q.X., et al.J. Biol.Chem.283, 14703−16 (2008))。この結果は、これらの類似体が野生型インスリンまたはKP−インスリンよりも化学的変性にそれぞれより安定であることを示している(25℃でのアンフォールディングの自由エネルギー(ΔGu)はそれぞれ3.3±0.1および4.3±0.1kcal/mole)。以下の25℃でのΔGuの推定値は、変性剤濃度ゼロに外挿した類似体の2つの状態モデルを適用することで得られた:(類似体T−0335)5.1±0.1kcal/mole、(類似体T−0336)5.3±0.1kcal/mole、(類似体T−0338)5.6±0.1kcal/mole、(類似体T−0339)6.0±0.1kcal/mole、(類似体T−0346)4.8±0.1kcal/mole、(類似体T−0347)4.6±0.1kcal/mole、および(類似体T−0348)5.9±0.1kcal/mole。ΔGuがこのように高いことは、同条件の野生型インスリンまたはKP−インスリンの研究で観察されるであろう無亜鉛条件での化学的分解に対して、本発明のインスリン類似体の抵抗性が高くなることを予測する。それぞれのデータは図9および10に提供される。それぞれのケースにおいて、本発明のインスリン類似体を50%アンフォールディングするためには、インスリン・リスプロ(KP−インスリン)を50%アンフォールディングするよりも高い濃度の塩酸グアニジンが必要である。
軟寒天におけるMCF−7コロニー形成試験。軟寒天におけるMCF−7コロニー形成試験。予熱した(42℃)0.6%寒天懸濁液0.25mlを用いてMCF−7細胞懸濁液0.25ml(2.25×10⁵細胞)を2倍の増殖培地/5%透析ウシ胎児血清(FBS)±インスリン類似体50nMに入れて混合し、単細胞懸濁液を得た。この0.3%懸濁液を24ウェルプレートの0.6%寒天0.5mlの層に注いだ。前記寒天に1倍の増殖培地/5%透析FBS±インスリン類似体50nMを重ね、12日間3倍/週で再培養した。9日目および12日目にコロニー(>60μm)を計数した。9日目に計数したコロニーを基にした代表的データを図11に示す。
糖尿病患者の治療法は、本明細書に説明した単鎖インスリン類似体の投与を有する。前記単鎖インスリン類似体は酵母(Pichia pastoris)において調製するか、または天然フラグメントを連結することで完全に化学合成することも本発明の別の観点である。調製の合成経路はD−アミノ酸置換、PheまたはTyrの芳香環内のハロゲン置換、または炭水化物によるセリンまたはトレオニンのO結合修飾などの非標準的修飾の場合に好ましいが、拡大遺伝子コード技術または4塩基コドン技術により非標準的修飾を含む単鎖類似体のサブセットを製造することは可能と考えられる(レビューについては、Hohsaka, T., & Sisido, M., 2012を参照)。非標準的アミノ酸置換が、前記単鎖インスリン類似体の化学的分解または物理的分解に対する抵抗性を増大できることも、本発明のさらに別の観点である。我々はさらに、糖尿病または代謝症候群の治療法を提供する本発明の類似体を想定する。前記インスリン類似体の送達経路は、シリンジまたはペン型器具を使用した皮下注射とする。本発明のインスリン類似体には、B25位またはB26位のハロゲン原子など、他の修飾を含んでもよい。また、本発明のインスリン類似体は、残基B1−B3の欠失による短縮B鎖を含んでもよい。
医薬組成物がそのようなインスリン類似体を有してもよく、選択的に亜鉛を含んでもよい。本発明のインスリン類似体は古典的な亜鉛安定化六量体を形成しないため(また、安定性を得るためにそのような会合は実際に必要ないため)、主にインスリン六量体を含む製剤に典型的に利用されるよりも低い、様々な亜鉛イオン:タンパク質比で亜鉛が含まれてもよく、そのような比率はインスリン類似体1モル当たりの亜鉛イオン0.01〜0.10モルの範囲とすることができる。前記製剤のpHはpH7.0〜8.0の範囲であり、緩衝液(典型的にはリン酸ナトリウムまたはTris塩酸塩)はあってもなくてもよい。そのような製剤では、インスリン類似体の濃度が典型的には約0.6〜5.0mMであり、バイアルまたはペンでは最高5mMの濃度が使用可能であり、著しいインスリン抵抗性を有する患者では、より濃縮した製剤(U−200以上)が特に有益であると考えられる。賦形剤にはグリコール、グリシン、アルギニン、Tris、その他の緩衝液および塩、およびフェノールおよびメタ−クレゾールなどの抗菌性保存剤が含まれ、後者の保存剤はインスリン六量体の安定性を向上することが知られている。そのような医薬組成物は、患者に生理学的に有効な量の前記組成物を投与することにより、糖尿病または他の医学的疾患を有する患者の治療に使用することができる。
前述の開示をもとに、提供された2本鎖インスリン類似体が、本明細書で上述された目的を実行することは今や明らかである。つまり、これらのインスリン類似体は(哺乳類に皮下または静脈内注射した場合の血糖濃度を低下させるために必要なタンパク質単量体のナノモル数により定義される)生物活性の向上を示し、即効的な作用が0.6mM(当該分野で既知のU−100の強度の製剤で典型的に利用される濃度)〜3.0mM(製剤Humulin(登録商標)R U−500製剤で使用される濃度、Eli Lilly and Co.)のインスリン類似体で保持される。したがって、すべての明らかな変形形態が請求された発明の範囲に入るため、本明細書で開示および説明された本発明の精神から離れずに、特定の成分元素の選択を決定できることは理解される。
以下の文献は、本明細書で説明された検査および試験が当業者に理解されるものであることを示すために引用する。
Brange J1, Ribel U, Hansen JF, Dodson G, Hansen MT, Havelund S, Melberg SG, Norris F, Norris K, Snel L, et al.(1988) Monomeric insulins obtained by protein engineering and their medical implications.Nature 333:679−82.
Barnes−Seeman, D., Beck, J., and Springer, C. (2014) Fluorinated compounds in medicinal chemistry: recent applications, synthetic advances and matched−pair analyses.Curr.Top.Med.Chem.14:855−64.
Brange J, editor.(1987) Galenics of Insulin: The Physico−chemical and Pharmaceutical Aspects of Insulin and Insulin Preparations.Berlin: Springer Berlin Heidelberg.
Hohsaka, T., and Sisido, M. (2012) Incorporation of non−natural amino acids into proteins.Curr.Opin.Chem.Biol.6, 809−15.
Kalra, S., Balhara, Y., Sahay, B., Ganapathy, B., and Das, A. (2013) Why is premixed insulin the preferred insulin? Novel answers to a decade−old question.J. Assoc.Physicians India 61, 9−11.
Liu, M., Hua, Q.X., Hu, S.Q., Jia, W., Yang, Y., Saith, S.E., Whittaker, J., Arvan, P., and Weiss, M.A. (2010) Deciphering the hidden informational content of protein sequences: foldability of proinsulin hinges on a flexible arm that is dispensable in the mature hormone.J. Biol.Chem.285:30989−1001.
Voloshchuk, N., Zhu, A.Y., Snydacker D., and Montclare, J.K.(2009) Positional effects of monofluorinated phenylalanines on histone acetyltransferase stability and activity.Bioorg.Med.Chem.Lett.19:5449−51.
V?lund, A., Brange, J., Drejer, K., Jensen, I., Markussen, J., Ribel, U., S?rensen, A.R., and Schlichtkrull, J. (1991) In vitro and in vivo potency of insulin analogues designed for clinical use.Diabet.Med.8:839−47.
Wang, Z.X.(1995) An exact mathematical expression for describing competitive biding of two different ligands to a protein molecule FEBS Lett.360: 111−114.
Whittaker, J., and Whittaker, L. (2005) Characterization of the functional insulin binding epitopes of the full−length insulin receptor.J. Biol.Chem.280: 20932−20936.
Yang, Y., Petkova, A., Huang, K., Xu, B., Hua, Q.X., Ye, I.J., Chu, Y.C., Hu, S.Q., Phillips, N.B., Whittaker, J., Ismail−Beigi, F., Mackin, R.B., Katsoyannis, P.G., Tycko, R., and Weiss, M.A. (2010) An Achilles’ heel in an amyloidogenic protein and its repair: insulin fibrillation and therapeutic design.J. Biol.Chem.285:10806−21.
Yuvienco, C., More, H.T., Haghpanah, J.S., Tu, R.S., and Montclare, J.K.(2012) Modulating supramolecular assemblies and mechanical properties of engineered protein materials by fluorinated amino acids.Biomacromolecules 13:2273−8.
Brange J1, Ribel U, Hansen JF, Dodson G, Hansen MT, Havelund S, Melberg SG, Norris F, Norris K, Snel L, et al.(1988) Monomeric insulins obtained by protein engineering and their medical implications.Nature 333:679−82.
Barnes−Seeman, D., Beck, J., and Springer, C. (2014) Fluorinated compounds in medicinal chemistry: recent applications, synthetic advances and matched−pair analyses.Curr.Top.Med.Chem.14:855−64.
Brange J, editor.(1987) Galenics of Insulin: The Physico−chemical and Pharmaceutical Aspects of Insulin and Insulin Preparations.Berlin: Springer Berlin Heidelberg.
Hohsaka, T., and Sisido, M. (2012) Incorporation of non−natural amino acids into proteins.Curr.Opin.Chem.Biol.6, 809−15.
Kalra, S., Balhara, Y., Sahay, B., Ganapathy, B., and Das, A. (2013) Why is premixed insulin the preferred insulin? Novel answers to a decade−old question.J. Assoc.Physicians India 61, 9−11.
Liu, M., Hua, Q.X., Hu, S.Q., Jia, W., Yang, Y., Saith, S.E., Whittaker, J., Arvan, P., and Weiss, M.A. (2010) Deciphering the hidden informational content of protein sequences: foldability of proinsulin hinges on a flexible arm that is dispensable in the mature hormone.J. Biol.Chem.285:30989−1001.
Voloshchuk, N., Zhu, A.Y., Snydacker D., and Montclare, J.K.(2009) Positional effects of monofluorinated phenylalanines on histone acetyltransferase stability and activity.Bioorg.Med.Chem.Lett.19:5449−51.
V?lund, A., Brange, J., Drejer, K., Jensen, I., Markussen, J., Ribel, U., S?rensen, A.R., and Schlichtkrull, J. (1991) In vitro and in vivo potency of insulin analogues designed for clinical use.Diabet.Med.8:839−47.
Wang, Z.X.(1995) An exact mathematical expression for describing competitive biding of two different ligands to a protein molecule FEBS Lett.360: 111−114.
Whittaker, J., and Whittaker, L. (2005) Characterization of the functional insulin binding epitopes of the full−length insulin receptor.J. Biol.Chem.280: 20932−20936.
Yang, Y., Petkova, A., Huang, K., Xu, B., Hua, Q.X., Ye, I.J., Chu, Y.C., Hu, S.Q., Phillips, N.B., Whittaker, J., Ismail−Beigi, F., Mackin, R.B., Katsoyannis, P.G., Tycko, R., and Weiss, M.A. (2010) An Achilles’ heel in an amyloidogenic protein and its repair: insulin fibrillation and therapeutic design.J. Biol.Chem.285:10806−21.
Yuvienco, C., More, H.T., Haghpanah, J.S., Tu, R.S., and Montclare, J.K.(2012) Modulating supramolecular assemblies and mechanical properties of engineered protein materials by fluorinated amino acids.Biomacromolecules 13:2273−8.
本発明の修飾インスリンのアミノ酸配列は、配列ID番号:4及び5として一般形態で示され、6つのシステイン残基が対になり、野生型ヒトインスリン同様、3つのジスルフィド架橋を提供する。
配列ID番号:4(インスリン類似体)
A鎖
Gly−Ile−Val−Glu−Gln−Cys−Cys−Xaa1−Ser−Ile−Cys−Ser−Xaa2−Xaa3−Gln−Leu−Glu−Asn−Tyr−Cys−Xaa4
配列ID番号:5(B鎖)
Xaa5−Xaa6−Xaa7−Gln−His−Leu−Cys−Gly−Ser−Asp−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Xaa8−Phe−Tyr−Thr−Xaa9−Xaa10−Thr−Xaa11−Xaa12
式中、Xaa1(A8位)はThrまたはGluであり、Xaa2はLeu、Tyr、またはTrpであり、Xaa3はTyrまたはGluであり、Xaa4はAsn、Asp、Ala、またはGlyであり、Xaa5−Xaa6−Xaa7は野生型ヒトインスリンではPhe−Val−Asn、またはN末端欠失変異体Val−Asn(des−B1)、Asn(des−B1,B2)、またはなし(des−B1−B3)であり、Xaa8は芳香環の1若しくはそれ以上の水素原子がフッ素(F)、塩素(C)、または臭素(Br)の群のハロゲン原子で置換されたフェニルアラニン誘導体であり、Xaa9またはXaa10の少なくとも1つが酸性アミノ酸であり、選択的に、Xaa11−Xaa12がB鎖のC末端ジペプチド伸長を提供し、少なくとも1つの残基が酸性側鎖である。
配列ID番号:4(インスリン類似体)
A鎖
Gly−Ile−Val−Glu−Gln−Cys−Cys−Xaa1−Ser−Ile−Cys−Ser−Xaa2−Xaa3−Gln−Leu−Glu−Asn−Tyr−Cys−Xaa4
配列ID番号:5(B鎖)
Xaa5−Xaa6−Xaa7−Gln−His−Leu−Cys−Gly−Ser−Asp−Leu−Val−Glu−Ala−Leu−Tyr−Leu−Val−Cys−Gly−Glu−Arg−Gly−Xaa8−Phe−Tyr−Thr−Xaa9−Xaa10−Thr−Xaa11−Xaa12
式中、Xaa1(A8位)はThrまたはGluであり、Xaa2はLeu、Tyr、またはTrpであり、Xaa3はTyrまたはGluであり、Xaa4はAsn、Asp、Ala、またはGlyであり、Xaa5−Xaa6−Xaa7は野生型ヒトインスリンではPhe−Val−Asn、またはN末端欠失変異体Val−Asn(des−B1)、Asn(des−B1,B2)、またはなし(des−B1−B3)であり、Xaa8は芳香環の1若しくはそれ以上の水素原子がフッ素(F)、塩素(C)、または臭素(Br)の群のハロゲン原子で置換されたフェニルアラニン誘導体であり、Xaa9またはXaa10の少なくとも1つが酸性アミノ酸であり、選択的に、Xaa11−Xaa12がB鎖のC末端ジペプチド伸長を提供し、少なくとも1つの残基が酸性側鎖である。
本発明のインスリン類似体のアミノ酸配列は、一部、配列ID番号:6〜9(完全B鎖を含む)および配列ID番号:10〜12(N末端短縮B鎖を含む)で示され、略して野生型ヒトインスリンと比較した特定の修飾のみが提供される(すなわち、具体的な配列の例はXaa1、Xaa2、Xaa3、Xaa4、Xaa5、Xaa6、Xaa7、Xaa8、Xaa9、Xaa10、Xaa11、およびXaa12を特徴とする。配列ID番号:6〜9で示される分子は、B鎖のB1、B2、およびB3位のそれぞれに野生型残基Phe−Val−Asnを含み、配列ID番号:10〜12で示される分子は残基B1−B3がない短縮B鎖を含む。各ケースで、残基B24はオルト−フルオロ−フェニルアラニンを含む。配列ID番号:6で示される配列は、配列ID番号:5のインスリン類似体の具体例を提供するが、これらの例は配列ID番号:5で定義される類似体を組み合わせた空間を制限する意図はない。提供された配列コードは、分子命名の内部コードに関する。
本発明の類似体は、これに制限されるものではないが、配列ID番号:10〜12で例示されるB鎖のN末端欠失(des−B1、des−B1,B2、またはdes−B1−B3)を選択的に含んでもよい。これらのN末端残基は受容体結合に必要ないが、生合成単鎖前駆体に存在すると、小胞体の天然型ジスルフィド対の有効性を高めるため、生産収率が上昇すると考えられる。
53残基の単鎖インスリン類似体をコードし、AspB10およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:13として示す。
配列ID番号:13
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:13
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
53残基の単鎖インスリン類似体をコードし、AspB10およびAlaB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:14として示す。
配列ID番号:14
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:14
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
53残基の単鎖インスリン類似体をコードし、AspB10、GluA8、およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:15として示す。
配列ID番号:15
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:15
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
非標準的アミノ酸がコドンB24位(TAG)のナンセンス抑制により挿入されるように、53残基の単鎖インスリン類似体をコードし、AspB10およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:16として示す。
配列ID番号:16
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:16
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
非標準的アミノ酸がコドンB24位(TAG)のナンセンス抑制により挿入されるように、53残基の単鎖インスリン類似体をコードし、GluA8、AspB10、およびGluB30の置換およびCドメインのTrp−Lysを有する遺伝子のセンス鎖は、配列ID番号:17として示す。
配列ID番号:17
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:17
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCATTGTACCAATTGGAGAACTACTGCAACTAA
配列ID番号:18〜22で提供される合成遺伝子群は、上記に示されたアミノ酸配列に従い、選択的にA13およびA14位に特定のアミノ酸置換をコードした一連のDNA配列を提供する。酵母の核遺伝子では、ロイシンがDNAコドンTTA、TTG、CTT、CTC、およびCTGでコードされ、チロシンがDNAコドンTATおよびTACによりコードされ、トリプトファンがDNAコドンTGGによりコードされ、グルタミン酸がDNAコドンGAAおよびGAGによってコードされることは、当該分野で既知である。
配列ID番号:18は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:18
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:18
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:19は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10およびAlaB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:19
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:19
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:20は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10、GluA8、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:20
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:20
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:21は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:21
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:21
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:22は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:22
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:22
TTCGTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:23〜37で提供される合成遺伝子群は、配列ID番号:18〜22で定義される配列の特徴に加え、選択的にB1(配列ID番号:23〜27)、B2(配列ID番号:28〜32)またはB3(配列ID番号:33〜37)の3つのコドン位置の1つでリジン残基をコードする一連のDNA配列を提供し、生合成単鎖インスリン前駆体のそのようなリジン置換により、B鎖が上記のアミノ酸配列に従い、N末端欠失des−B1、des−B1、B2、またはdes−B1−B3を含む本発明のインスリン類似体を産生することができる。これらのN末端切断は、それぞれ生合成単鎖インスリン前駆体B1、B2、またはB3位の置換により方向づけられる。酵母の核遺伝子では、リジンがDNAコドンAAAおよびAAGによりコードされることは、当該分野で既知である。上述のとおり、酵母の核遺伝子では、ロイシンがDNAコドンTTA、TTG、CTT、CTC、およびCTGでコードされ、チロシンがDNAコドンTATおよびTACによりコードされ、トリプトファンがDNAコドンTGGによりコードされ、グルタミン酸がDNAコドンGAAおよびGAGによってコードされることは、当該分野で既知である。
配列ID番号:23は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:23
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:23
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:24は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびAlaB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:24
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:24
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:25は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10、GluA8およびGluB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:25
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:25
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:26は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:26
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:26
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:27は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:27
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:27
XXX3GTCAATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:28は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:28
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:28
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:29は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびAlaB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:29
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:29
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:30は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10、GluA8およびGluB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:30
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:30
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:31は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:31
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:31
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:32は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:32
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:32
TTCXXX3AATCAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:33は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:33
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:33
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:34は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびAlaB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:34
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:34
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCTTTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCTAAGGCTGCTAAGGGAATCGTTGAGCAATGCTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:35は、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10、GluA8およびGluB30の置換を有し、CドメインのAla−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:35
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:35
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTACACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:36は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、AspB10およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:36
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:36
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTACTTCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:37は、非標準的アミノ酸がコドン位置B24(TAG)のナンセンス抑制に挿入され、A13位のコドン(XXX1)が選択的にロイシン、チロシン、またはトリプトファンをコードし、A14位のコドン(XXX2)が選択的にチロシンまたはグルタミン酸をコードし、XXX3がリジンをコードするように、GluA8、AspB10、およびGluB30の置換を有し、CドメインのTrp−Lysを有する、53残基の単鎖インスリン類似体をコードする遺伝子のセンス鎖を提供する。
配列ID番号:37
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
配列ID番号:37
TTCGTCXXX3CAACACTTGTGTGGTAGTGACTTGGTCGAGGCATTGTACTTGGTCTGTGGTGAGAGAGGATTCTTCTAGACCCCAAAGGAGTGGAAGGGTATCGTTGAGCAATGTTGTGAATCCATCTGCTCA−XXX1−XXX2−CAATTGGAGAACTACTGCAACTAA
Claims (22)
- 生物学的作用強度が高いインスリン分子であって、前記インスリンはA鎖ペプチドおよびB鎖ペプチドを有し、前記インスリンは、
ヒトインスリンのB10に相当する位置のアスパラギン酸と、
ヒトインスリンのA8、B28、およびB29に相当する1若しくはそれ以上の位置のグルタミン酸と、
ヒトインスリンのB24に相当する位置のハロゲン化フェニルアラニンと
を有する、インスリン分子。 - 請求項1記載のインスリン分子において、前記インスリン分子は、Glu−Glu、Glu−Ala、Ala−Glu、Glu−Asp、およびSer−Aspから選択されるB鎖ポリペプチドのジペプチドC末端伸長を有する、インスリン分子。
- 請求項1または2記載のインスリン分子であって、B1、B1−B2、またはB1−B3の切断を有する、インスリン分子。
- 請求項1記載のインスリン分子において、ヒトインスリンB30位に相当するアミノ酸がない、インスリン分子。
- 請求項1〜4のいずれか1つに記載のインスリン分子において、ヒトインスリンのB29に相当する位置がProであり、ヒトインスリンのB28に相当する位置が酸性アミノ酸である、インスリン分子。
- 請求項1〜5のいずれか1つに記載のインスリン分子において、前記インスリンは、さらに、
ヒトインスリンのA13に相当する位置がトリプトファンであり、
ヒトインスリンのA14に相当する位置がグルタミン酸であり、
ヒトインスリンのA21に相当する位置がグリシンである、
置換から選択される1若しくはそれ以上の置換を有する、インスリン分子。 - 請求項1記載のインスリン分子であって、
B10位のアスパラギン酸と、
B24位のオルト−フルオロ−フェニルアラニンと、
B29位のグルタミン酸と
を有する、インスリン分子。 - 請求項7記載のインスリン分子であって、さらに、残基B1−B3の切断を有する、インスリン分子。
- 請求項7または請求項8記載のインスリン分子であって、さらに、A21位のグリシンを有する、インスリン分子。
- 請求項7〜9のいずれか1つに記載のインスリン分子であって、さらに、A8位のグルタミン酸を有する、インスリン分子。
- 請求項7〜10のいずれか1つに記載のインスリン分子であって、さらに、B鎖のジペプチド伸長としてGluB31−GluB32を有する、インスリン分子。
- 請求項1記載のインスリン分子であって、
B10位のアスパラギン酸と、
B24位のオルト−フルオロ−フェニルアラニンと、
A8位のグルタミン酸と
を有する、インスリン分子。 - 請求項12記載のインスリン分子であって、さらに、B28位のリジンおよびB29位のプロリンを有する、インスリン分子。
- 請求項12または請求項13記載のインスリン分子であって、さらに、A21位のグリシンを有する、インスリン分子。
- U−100〜U−1000で製剤化される、請求項1〜14のいずれか1つに記載のインスリン分子を有する医薬組成物。
- 請求項15記載の医薬組成物であって、U−100〜U−500で製剤化される、医薬組成物。
- 請求項15記載の医薬組成物であって、U−500〜U−1000で製剤化される、医薬組成物。
- 請求項15〜17のいずれか1つに記載の医薬組成物であって、無亜鉛製剤であり、またはインスリン1モル当たり0.01〜0.10の比で亜鉛を含む、医薬組成物。
- 請求項15〜18のいずれか1つに記載の医薬組成物であって、pH7〜8で製剤化され、選択的にpH緩衝液を有する、医薬組成物。
- 請求項15〜19のいずれか1つに記載の医薬組成物であって、バイアルまたは注射用ペンに封入される、医薬組成物。
- 糖尿病患者を治療する方法であって、前記患者に請求項15〜20のいずれか1つに記載の医薬組成物を投与する工程を有する、方法。
- 請求項21記載の方法において、前記組成物はプランディアルインスリンとして投与される、方法。
Applications Claiming Priority (3)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US201462066187P | 2014-10-20 | 2014-10-20 | |
| US62/066,187 | 2014-10-20 | ||
| PCT/US2015/055057 WO2016064606A1 (en) | 2014-10-20 | 2015-10-12 | Halogenated insulin analogues of enhanced biological potency |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2017537065A true JP2017537065A (ja) | 2017-12-14 |
Family
ID=55761326
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2017521099A Pending JP2017537065A (ja) | 2014-10-20 | 2015-10-12 | 生物学的作用強度の高いハロゲン化インスリン類似体 |
Country Status (5)
| Country | Link |
|---|---|
| US (1) | US20170304361A1 (ja) |
| EP (1) | EP3223844A4 (ja) |
| JP (1) | JP2017537065A (ja) |
| CA (1) | CA2964918A1 (ja) |
| WO (1) | WO2016064606A1 (ja) |
Cited By (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2021530210A (ja) * | 2018-06-29 | 2021-11-11 | アクストン バイオサイエンシズ コーポレーションAkston Biosciences Corporation | 超長期作用性インスリン−fc融合タンパク質および使用方法 |
| JP2023532165A (ja) * | 2020-03-02 | 2023-07-27 | サーマリン インク. | 速効型インスリンアナログを含む組成物 |
Families Citing this family (2)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| CA2936563A1 (en) | 2014-01-13 | 2015-07-16 | Thermalin Diabetes, Llc | Rapid action insulin formulations and pharmaceutical delivery systems |
| AU2017361524B2 (en) * | 2016-11-21 | 2022-06-02 | Case Western Reserve University | Rapid-acting insulin analogues of enhanced stability |
Family Cites Families (5)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| ES2369895T3 (es) * | 2003-12-03 | 2011-12-07 | Novo Nordisk A/S | Insulina monocatenaria. |
| US9200053B2 (en) * | 2008-07-31 | 2015-12-01 | Case Western Reserve University | Insulin analogues containing penta-fluoro-Phenylalanine at position B24 |
| BR112012020481A2 (pt) * | 2010-02-22 | 2017-01-10 | Univ Case Western Reserve | método para tratar um paciente, o método compreendendo administrar uma formulação farmacêutica contendo uma quantidade fisiologicamente efetiva de um análogo de insulina ou um sal fisiologicamente. |
| EP2771026A4 (en) * | 2011-10-27 | 2015-08-05 | Univ Case Western Reserve | ULTRA-CONCENTRATED AND FAST-ACTING INSULIN ANALOG FORMULATIONS |
| CN104114183A (zh) * | 2011-12-20 | 2014-10-22 | 印第安纳大学研究及科技有限公司 | 用于治疗糖尿病的基于ctp的胰岛素类似物 |
-
2015
- 2015-10-12 JP JP2017521099A patent/JP2017537065A/ja active Pending
- 2015-10-12 CA CA2964918A patent/CA2964918A1/en not_active Abandoned
- 2015-10-12 EP EP15851736.7A patent/EP3223844A4/en not_active Withdrawn
- 2015-10-12 US US15/520,710 patent/US20170304361A1/en not_active Abandoned
- 2015-10-12 WO PCT/US2015/055057 patent/WO2016064606A1/en not_active Ceased
Cited By (6)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2021530210A (ja) * | 2018-06-29 | 2021-11-11 | アクストン バイオサイエンシズ コーポレーションAkston Biosciences Corporation | 超長期作用性インスリン−fc融合タンパク質および使用方法 |
| JP7417277B2 (ja) | 2018-06-29 | 2024-01-18 | アクストン バイオサイエンシズ コーポレーション | 超長期作用性インスリン-fc融合タンパク質および使用方法 |
| JP2024045117A (ja) * | 2018-06-29 | 2024-04-02 | アクストン バイオサイエンシズ コーポレーション | 超長期作用性インスリン-fc融合タンパク質および使用方法 |
| JP7510728B2 (ja) | 2018-06-29 | 2024-07-04 | アクストン バイオサイエンシズ コーポレーション | 超長期作用性インスリン-fc融合タンパク質および使用方法 |
| JP2023532165A (ja) * | 2020-03-02 | 2023-07-27 | サーマリン インク. | 速効型インスリンアナログを含む組成物 |
| JP7803868B2 (ja) | 2020-03-02 | 2026-01-21 | サーマリン インク. | 速効型インスリンアナログを含む組成物 |
Also Published As
| Publication number | Publication date |
|---|---|
| WO2016064606A1 (en) | 2016-04-28 |
| EP3223844A1 (en) | 2017-10-04 |
| US20170304361A1 (en) | 2017-10-26 |
| CA2964918A1 (en) | 2016-04-28 |
| EP3223844A4 (en) | 2018-08-15 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| US10822386B2 (en) | Insulin analogues with enhanced stability and reduced mitogenicity | |
| US11174303B2 (en) | Single-chain insulin analogues stabilized by a fourth disulfide bridge | |
| JP6584953B2 (ja) | 長時間作用型単鎖インスリン類似体 | |
| US20220002373A1 (en) | Single-chain insulin analogues with poly-alanine c-domain sub-segments | |
| US12312390B2 (en) | Rapid-acting insulin analogues of enhanced stability | |
| US20150299286A1 (en) | Glutamic acid-stabilized insulin analogues | |
| US10703792B2 (en) | Insulin analogues with selective signaling properties and reduced mitogenicity | |
| US9200053B2 (en) | Insulin analogues containing penta-fluoro-Phenylalanine at position B24 | |
| US20170304361A1 (en) | Halogenated insulin analogues of enhanced biological potency | |
| AU2013237740B2 (en) | Insulin analogues containing penta-fluora-phenyalanine at position B24 |
Legal Events
| Date | Code | Title | Description |
|---|---|---|---|
| A521 | Request for written amendment filed |
Free format text: JAPANESE INTERMEDIATE CODE: A523 Effective date: 20170707 |