JP2012508585A - インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復 - Google Patents

インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復 Download PDF

Info

Publication number
JP2012508585A
JP2012508585A JP2011536538A JP2011536538A JP2012508585A JP 2012508585 A JP2012508585 A JP 2012508585A JP 2011536538 A JP2011536538 A JP 2011536538A JP 2011536538 A JP2011536538 A JP 2011536538A JP 2012508585 A JP2012508585 A JP 2012508585A
Authority
JP
Japan
Prior art keywords
insulin
nucleic acid
gene
promoter
neurod
Prior art date
Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
Pending
Application number
JP2011536538A
Other languages
English (en)
Inventor
ポール エイ. グレイバーン
シュユアン チェン
ジアフアン ディン
Current Assignee (The listed assignees may be inaccurate. Google has not performed a legal analysis and makes no representation or warranty as to the accuracy of the list.)
Baylor Research Institute
Original Assignee
Baylor Research Institute
Priority date (The priority date is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the date listed.)
Filing date
Publication date
Application filed by Baylor Research Institute filed Critical Baylor Research Institute
Publication of JP2012508585A publication Critical patent/JP2012508585A/ja
Pending legal-status Critical Current

Links

Images

Classifications

    • C—CHEMISTRY; METALLURGY
    • C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
    • C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
    • C12N15/09—Recombinant DNA-technology
    • C12N15/87—Introduction of foreign genetic material using processes not otherwise provided for, e.g. co-transformation
    • C12N15/88—Introduction of foreign genetic material using processes not otherwise provided for, e.g. co-transformation using microencapsulation, e.g. using amphiphile liposome vesicle
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K41/00—Medicinal preparations obtained by treating materials with wave energy or particle radiation ; Therapies using these preparations
    • A61K41/0028—Disruption, e.g. by heat or ultrasounds, sonophysical or sonochemical activation, e.g. thermosensitive or heat-sensitive liposomes, disruption of calculi with a medicinal preparation and ultrasounds
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K9/00—Medicinal preparations characterised by special physical form
    • A61K9/10—Dispersions; Emulsions
    • A61K9/127—Synthetic bilayered vehicles, e.g. liposomes or liposomes with cholesterol as the only non-phosphatidyl surfactant
    • A61K9/1271—Non-conventional liposomes, e.g. PEGylated liposomes or liposomes coated or grafted with polymers
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K31/00—Medicinal preparations containing organic active ingredients
    • A61K31/70—Carbohydrates; Sugars; Derivatives thereof
    • A61K31/7088—Compounds having three or more nucleosides or nucleotides
    • A61K31/713—Double-stranded nucleic acids or oligonucleotides
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K48/00—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy
    • A61K48/005—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy characterised by an aspect of the 'active' part of the composition delivered, i.e. the nucleic acid delivered
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K48/00—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy
    • A61K48/005—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy characterised by an aspect of the 'active' part of the composition delivered, i.e. the nucleic acid delivered
    • A61K48/0058—Nucleic acids adapted for tissue specific expression, e.g. having tissue specific promoters as part of a contruct
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
    • A61K48/00—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy
    • A61K48/0083—Medicinal preparations containing genetic material which is inserted into cells of the living body to treat genetic diseases; Gene therapy characterised by an aspect of the administration regime
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
    • A61P3/00—Drugs for disorders of the metabolism
    • A61P3/08—Drugs for disorders of the metabolism for glucose homeostasis
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
    • A61P3/00—Drugs for disorders of the metabolism
    • A61P3/08—Drugs for disorders of the metabolism for glucose homeostasis
    • A61P3/10—Drugs for disorders of the metabolism for glucose homeostasis for hyperglycaemia, e.g. antidiabetics
    • A—HUMAN NECESSITIES
    • A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
    • A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
    • A61P5/00—Drugs for disorders of the endocrine system
    • A61P5/48—Drugs for disorders of the endocrine system of the pancreatic hormones
    • A61P5/50—Drugs for disorders of the endocrine system of the pancreatic hormones for increasing or potentiating the activity of insulin
    • C—CHEMISTRY; METALLURGY
    • C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
    • C12N15/00—Mutation or genetic engineering; DNA or RNA concerning genetic engineering, vectors, e.g. plasmids, or their isolation, preparation or purification; Use of hosts therefor
    • C12N15/09—Recombinant DNA-technology
    • C12N15/11—DNA or RNA fragments; Modified forms thereof; Non-coding nucleic acids having a biological activity
    • C—CHEMISTRY; METALLURGY
    • C12—BIOCHEMISTRY; BEER; SPIRITS; WINE; VINEGAR; MICROBIOLOGY; ENZYMOLOGY; MUTATION OR GENETIC ENGINEERING
    • C12N—MICROORGANISMS OR ENZYMES; COMPOSITIONS THEREOF; PROPAGATING, PRESERVING, OR MAINTAINING MICROORGANISMS; MUTATION OR GENETIC ENGINEERING; CULTURE MEDIA
    • C12N5/00—Undifferentiated human, animal or plant cells, e.g. cell lines; Tissues; Cultivation or maintenance thereof; Culture media therefor
    • C12N5/10—Cells modified by introduction of foreign genetic material

Landscapes

  • Health & Medical Sciences (AREA)
  • Life Sciences & Earth Sciences (AREA)
  • Chemical & Material Sciences (AREA)
  • Engineering & Computer Science (AREA)
  • Genetics & Genomics (AREA)
  • General Health & Medical Sciences (AREA)
  • Medicinal Chemistry (AREA)
  • Pharmacology & Pharmacy (AREA)
  • Animal Behavior & Ethology (AREA)
  • Public Health (AREA)
  • Veterinary Medicine (AREA)
  • Biotechnology (AREA)
  • Epidemiology (AREA)
  • Molecular Biology (AREA)
  • Bioinformatics & Cheminformatics (AREA)
  • Biomedical Technology (AREA)
  • Organic Chemistry (AREA)
  • Diabetes (AREA)
  • Biochemistry (AREA)
  • Zoology (AREA)
  • Wood Science & Technology (AREA)
  • General Engineering & Computer Science (AREA)
  • Endocrinology (AREA)
  • Microbiology (AREA)
  • Chemical Kinetics & Catalysis (AREA)
  • General Chemical & Material Sciences (AREA)
  • Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
  • Hematology (AREA)
  • Biophysics (AREA)
  • Physics & Mathematics (AREA)
  • Plant Pathology (AREA)
  • Obesity (AREA)
  • Emergency Medicine (AREA)
  • Dispersion Chemistry (AREA)
  • Cell Biology (AREA)
  • Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
  • Pharmaceuticals Containing Other Organic And Inorganic Compounds (AREA)
  • Medicinal Preparation (AREA)
  • Micro-Organisms Or Cultivation Processes Thereof (AREA)
  • Medicines Containing Material From Animals Or Micro-Organisms (AREA)

Abstract

本発明は、膵臓内での超音波標的マイクロバブル破壊によってグルコース応答性細胞を再生するための組成物及び方法であって、前記組成物は、マイクロバブル内及びマイクロバブル周囲でマイクロバブルと接触する予め構築されたリポソーム−核酸複合体を含み、前記予め構築されたリポソーム−核酸複合体は、プロモーターの制御下のNeuroD遺伝子を含み、膵臓内の標的部位においてマイクロバブルが破壊することにより膵臓細胞内の超音波破壊位置に核酸が送達され、前記核酸を組み込んだ細胞が高血糖レベルに応答してインスリンを発現する、組成物及び方法を含む。

Description

本発明は、糖尿病の治療、より具体的には、グルコース応答性の細胞、すなわちインスリン産生細胞を再生するための組成物及び方法に関する。
本発明の範囲を限定することなく、糖尿病に関して本発明の背景を記載する。
糖尿病は、世界中でおよそ2億人の人々が罹患しており、有病率が増加してきている。糖尿病は、世界における死亡原因の第5位であると推定され、心血管疾患、慢性腎疾患、失明、及び神経障害を含む、重篤な合併症をもたらす。
インスリン療法を含む、糖尿病の多様な薬理学的療法があるにもかかわらず、適切な血糖の制御は困難であることが多く、その理由の一部として、これらの作用物質が、正常な膵島のグルコース調節機能を再現し得ないことが挙げられる。したがって、新規の治療戦略は、膵島の移植又はベータ細胞の再生のいずれかによって、糖尿病の主要な形態の両方に共通のベータ細胞塊の欠乏を補うことに焦点を当てている。
糖尿病治療の分野における有望な機会の1つは、Kojimaに発行された、膵臓の機能を向上させるための組成物についての米国特許第6,232,288号明細書により教示されている。Kojimaは、未分化膵臓細胞からインスリン産生ベータ細胞又は膵臓ポリペプチド産生F細胞への分化を促進するための、ベータセルリンタンパク質自体、又はその断片の使用を教示している。BTCタンパク質組成物は患者における耐糖能を向上させ、未分化膵臓細胞の成長を阻害した。ヒトを含む哺乳動物を治療するための方法も提供されているが、糖尿病状態の長期的な治療は、患者にベータセルリンタンパク質を静脈内投与しても成し遂げられなかった。
米国特許第6,232,288号明細書
一実施形態において、本発明は、膵臓内での超音波標的マイクロバブル破壊のための組成物及び方法であって、マイクロバブル内及びマイクロバブル周囲でマイクロバブルと接触する予め構築されたリポソーム−核酸複合体を含み、その予め構築されたリポソーム−核酸複合体が、プロモーターの制御下のNeuroD遺伝子を含み、膵臓内の標的部位においてマイクロバブルが破壊することにより膵臓細胞内の超音波破壊位置に核酸が送達され、その核酸を組み込んだ細胞が高血糖レベルに応答してインスリンを発現する、組成物及び方法を含む。一態様において、その組成物は、NeuroDの転写開始部位の上流の領域に配列番号1の連続(contiguous)する50塩基を含む高発現の調節可能なインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子をさらに含む。別の態様において、その組成物は、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子から選択される1又は2以上の遺伝子をさらに含む。別の態様において、その組成物は、その組成物と同時投与される薬剤をさらに含み、その薬剤は、抗アポトーシス剤、抗炎症剤、JNK阻害剤、GLP−1、タクロリムス、シロリムス、アナキンラ、Dervinポリアミド、又はそれらの組合せから選択される。
別の実施形態において、本発明は、膵臓においてNeuroDを含むマイクロバブルの膵臓内での超音波標的マイクロバブル破壊を用いて膵臓ベータ細胞を再生するための組成物及び方法を含む。一態様において、NeuroDは組換えNeuroDである。別の態様において、その組成物は、CUBI、RIP2.1、RIP3.1又はHIP3.1プロモーターの制御下のNeuroD遺伝子をさらに含み、そのNeuroDは、超音波標的マイクロバブル破壊による発現を標的とされている細胞中で発現される。
本発明のさらに別の実施形態は、糖尿病患者においてインビボ及びインサイチュでインスリン応答性細胞を再生するための方法であって、有効量を膵臓に送達することを含み、膵臓内の細胞が、血液中の高グルコースレベルに応答して細胞にインスリンを分泌させる、方法である。一態様において、膵臓細胞内の有効量のNeuroDは、NeuroD遺伝子を発現する外因性核酸セグメントを送達することを含む。別の態様において、NeuroDは、超音波標的マイクロバブル破壊により膵臓に送達される。さらに別の態様において、膵臓細胞内の有効量のNeuroDは、CUBI、RIP2.1、RIP3.1又はHIP3.1プロモーターの制御下のNeuroD遺伝子を発現する外因性核酸セグメントを送達することを含む。
本発明の別の実施形態は、標的細胞をインスリン応答性にする方法であって、CUBI、RIP2.1、RIP3.1又はHIP3.1プロモーターから選択されるインスリン応答性プロモーターの制御下のNeuroD遺伝子を含む核酸セグメントを作製するステップと、その核酸セグメントをマイクロバブルに導入するステップと、患者にそのマイクロバブルを注入するステップと、その核酸セグメントを膵臓細胞内に送達するステップと、インスリン応答性調節遺伝子を発現するのに有効な条件下に標的細胞を維持するステップとを含み、その標的細胞内でのNeuroDの発現によりその細胞が高血糖に応答する、方法である。一態様において、その方法は、プロモーターの制御下の、PDX1、Nkx2.2、Nkx6.1、PAX4、MafA、ngn3及びそれらの組合せから選択される1又は2以上の遺伝子を膵臓に送達することをさらに含む。別の態様において、その方法は、組成物と同時投与される薬剤を送達することをさらに含み、その薬剤は、抗アポトーシス剤、抗炎症剤、JNK阻害剤、GLP−1、タクロリムス、シロリムス、アナキンラ、Dervinポリアミド又はそれらの組合せから選択される。一態様において、マイクロバブルは、予め構築されたリポソーム−核酸複合体リポソームを含む。別の態様において、マイクロバブルは、プラスミドと混合された、1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルコリン及び1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルエタノールアミングリセロールを含む予め構築されたリポソーム−核酸複合体リポソームを含む。
さらに別の実施形態において、本発明は、インスリン応答性を回復させる方法であって、インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含む高発現インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む単離された核酸セグメントを取得するステップと、その核酸セグメントを標的細胞内に移入するステップと、インスリン応答性調節遺伝子を発現するのに有効な条件下にその標的細胞を維持するステップとを含み、その標的細胞内でのインスリン応答性調節遺伝子の発現によりその細胞が高血糖に応答する、方法を含む。一態様において、インスリン応答性細胞は動物内にある。別の態様において、1又は2以上のインスリン応答性調節遺伝子は、ウイルス又はプラスミドベクター内にあるインスリンプロモーター領域に作動可能に連結する。別の態様において、インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子は、NeuroD、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される。
本発明の別の実施形態は、インスリン応答性を回復させる方法であって、インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含むインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む単離された核酸セグメントを取得するステップと、その核酸セグメントを膵臓細胞内に移入するステップと、インスリン応答性調節遺伝子を発現するのに有効な条件下に標的細胞を維持するステップとを含み、その標的細胞内でのインスリン応答性調節遺伝子の発現によりその細胞が高血糖に応答する、方法を含む。一態様において、インスリンプロモーター領域は、転写開始部位の上流の領域に配列番号1の連続する100〜500塩基を含む。一実施形態において、インスリンプロモーター領域は、配列番号1における転写開始部位の上流の全領域、又はさらに転写開始部位の上流の領域に配列番号1の連続する100〜500塩基を含む。別の態様は、1又は2以上のインスリン応答性遺伝子の転写開始部位の上流の領域に配列番号1の連続する50塩基を含む高発現インスリンプロモーター領域を含む単離された核酸である。
別の実施形態において、本発明は、膵臓内での超音波標的マイクロバブル破壊のための組成物であって、マイクロバブルと接触する予め構築されたリポソーム−核酸複合体を含み、その予め構築されたリポソーム−核酸複合体が、インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含む高発現の調節可能なインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含み、膵臓内での標的部位においてマイクロバブルが超音波で破壊することにより膵臓細胞内の超音波破壊位置に核酸が送達される、組成物である。一態様において、予め構築されたリポソーム−核酸複合体は、カチオン性脂質、アニオン性脂質又はそれらの混合物及び組合せを含む。別の態様において、マイクロバブルは、薬学的に許容される媒体内に配置される。別の態様において、活性因子である核酸は、インスリン遺伝子を含む。一態様において、活性因子である核酸は、プロモーターの制御下のヘキソキナーゼ遺伝子を含む核酸ベクターを構成する。別の態様において、活性因子である核酸は、プロモーターの制御下のNeuroD遺伝子を含む核酸ベクターを構成する。予め構築されたリポソーム−核酸複合体リポソームは、例えば、プラスミドと混合された、1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルコリン及び1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルエタノールアミングリセロールであり得る。別の態様において、組成物は、コーティングをさらに含んでもよい。別の態様において、組成物は、NeuroD、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)及びサイクリン依存性キナーゼ阻害剤(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子をさらに含んでもよい。
予め構築されたリポソーム−核酸マイクロバブル複合体を細胞内に注入するステップを含み、その予め構築されたリポソーム−核酸複合体は、インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含むインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む、インスリンプロモーターの制御下のNeuroD遺伝子を含み、膵臓内での標的部位においてマイクロバブルが破壊することにより膵臓細胞内の超音波破壊位置に核酸が送達され、その核酸を組み込んだ細胞が高血糖レベルに応答してインスリンを発現する、方法によってインスリン応答性にされた細胞。一態様において、細胞は、NeuroD遺伝子から上流のインスリン開始部位の上流の領域の連続する50塩基を含む調節可能なインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子をさらに含む。別の態様において、細胞は、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、ISl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子から選択される1又は2以上の遺伝子をさらに含む。
添付の図面は、本明細書に組み込まれ、本明細書の一部を構成するものであるが、本発明をさらに例示し、発明の詳細な説明と共に本発明の原理を説明するためのものであり、当該図面において、同様の符号は個別の図を通して同一又は機能が類似した要素を指す。
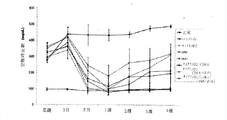
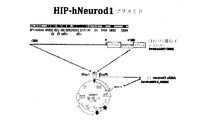
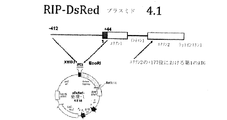
ラットインスリンプロモーター領域並びにエクソン1、イントロン1及びエクソン2の概略図である。ラットインスリンプロモーターを既知の配列要素並びに融合エクソン1及びエクソン2と共に示す。 上図は、3つの異なるグルコース濃度下にてrips-lucをトランスフェクトしてから48時間後のINS−1細胞溶解物のルシフェラーゼ活性である。下図は、高グルコース濃度下のrips-lucでのトランスフェクション後の異なる培養時間における培養溶液のルシフェラーゼ活性であり、グルコースを含まない場合、及び正常なグルコース濃度においてルシフェラーゼ活性は存在しない(データは示さず)。 (3A):RIP3.1-DsRedスライド。上左:緑は抗インスリン、上中央の赤は抗dsred、上右はそれらの共焦点画像である。下図は連続的な切片及び同様の膵島構造であり、下左:緑は抗グルカゴン、下中央:赤は抗dsred、下右はそれらの共焦点画像である。(3B):RIP-4.1-dsred。(3C):RIP-1.1-dsred。(3D):RIP-1.1-dsredスライド。(3E):pCMV-dsred。(F):正常な対照。 (4A):画像は10%グルコースを与えたpRIP3.1-DsRedラットの場合である。上右の緑は抗インスリン、上中央の赤は抗dsred、上左はそれらの共焦点画像である。下右の緑は抗グルカゴン、下中央の赤は抗dsred、下左はそれらの共焦点画像である。(4B)画像は一晩絶食させたpRIP3.1-DsRedラットの場合である。 上図。対照ラット(左)及びUTMDで処理したラット(中央は餌を与えたラット、右は絶食させたラット)由来の顕微鏡用切片(400倍)。in−situ PCRを使用して、DsRedプラスミドDNAを染色し、そのDsRedプラスミドDNAは処理した膵臓全体にわたって見られる。膵島は明確に見える(矢印)。下図。対照ラット(左)及びRIP6.1-DsRedを使用してUTMDで処理したラット(中央は餌を与えたラット、右は絶食させたラット)由来の切片(400倍)。in−situ RT−PCRを使用して、DsRed mRNAを染色し、そのDsRed mRNAは膵島中心(中央/餌を与えた)に局在する。膵島の境界で染色した(右/絶食させたラット)。 免疫蛍光顕微鏡の結果を示す。上図は、30日の実験からの膵島の代表的な例を示す。FITCで標識した抗インスリン(緑)はベータ細胞を示し、一方、DsRedで標識した抗グルカゴンはアルファ細胞を示す。Nkx2.2、Nkx6.1、Pax4、Ngn3、及びMafAを用いる超音波標的遺伝子治療により、アルファ細胞が優勢な膵島の形成を生じた。対照的に、NeuroD1で処理したラットは、中央のベータ細胞が周辺のアルファ細胞により囲まれた、ほぼ正常な膵島構造を有した。下左図は、異なる群についてのスライド当たりの膵島の数を示す。正常な対照及びNeuroD1で処理したラットの両方は、全ての他の群より、スライド当たり有意に多い膵島を有した(ANOVAにより*p<0.0001)。下右図は、膵島当たりのベータ細胞の数を示す。正常な対照及びNeuroD1で処理したラットの両方は、全ての他の群より、膵島当たりのベータ細胞の有意に高い割合を有した(ANOVAにより*P<0.0001)。 30日の実験における血糖(右上図)、血中インスリン(右下図)、及びC−ペプチド(右上図)の結果を示す。3日目に、全てのSTZで処理したラットは、正常な対照と比べて、著しく高い血糖並びに低いインスリン及びC−ペプチドを有した(p<0.0001)。しかし、30日までに、NeuroD1で処理したラットのみは、血糖、インスリン、及びC−ペプチドを正常又はほぼ正常なレベルまで回復させた。下右図は、正常な対照(n=3)及びDsRedで処理したラット(n=3)と比較した、別の群の6匹のNeuroD1で処理したラット(n=6)おける耐糖能試験の結果を示す。STZにより誘発した糖尿病の後のNeuroD1を用いる遺伝子治療により、正常な値まで耐糖能の回復が生じた。 細胞増殖のマーカーを示す。上左及び中央図は、FICTで標識した抗インスリン(緑)、及びDsRedで標識した抗BrdU(左)及び抗Ki67(中央)で共染色した膵島を示す。上右図は、Ki67陽性、インスリン陽性細胞の数を示し、正常な対照、STZで処理した対照ラット、又はUTMDによってDsRedを用いて処理したSTZで処理したラットにおいてより、NeuroD1で処理したSTZラットにおいて統計的に有意に高い(p<0.0001)。下図は、抗Ck19(左、緑)、抗インスリン(左中央、赤)、抗ngn3(青、右中央)で染色したNeuroD1で処理したSTZラット由来の膵島、及びそれらの共焦点画像(右)を示す。インスリン陽性ベータ細胞はCk19ではなく、ngn3で共染色し、再生した膵島が導管細胞に由来しないことを示す。 ラットを様々な遺伝子及び遺伝子の組合せを用いてUTMDにより処理した実験からの代表的な膵島の画像を示す。DAPI(核について青染色)、抗インスリン(緑)、及び抗グルカゴン(赤)で3重染色した。組合せで処理した場合、サイクリンD2、CDK4、及びGLP1(膵島は180日まで安定であった)。上左図は、UTMDにより処理していない正常な対照ラットからの代表的な膵島を示す。インスリンを発現するベータ細胞の高密度の膵島中心部が、グルカゴンを発現する周辺アルファ細胞(赤)の小さな被膜によって囲まれて存在している(緑)。上右図は、STZにより誘発された糖尿病後の代表的な膵島残部を示す。少数の拍動細胞のみが存在している。下左図は、GLP1遺伝子を用いるUTMD後の膵島再生の例を示す。正常より少ない膵島が、いくつかのベータ細胞(緑)及びアルファ細胞(赤)とともに存在しているが、構造は正常ではない。単一の遺伝子、サイクリンD2、CDK4、及びCDK6を使用するUTMDで処理したラットに関して、同様の研究結果が提示された(示さず)。下右図は、サイクリンD2、CDK4、及びGLP1の組合せを用いるUTMD後のほぼ正常な膵島を示す(それらの膵島は180日まで安定であり、正常な血糖、インスリン及びC−ペプチドレベルを有する糖尿病の回復を伴った)。 UTMD遺伝子治療で処理したラット、並びに正常な対照、及びUTMD処理を行わないSTZ糖尿病ラットの様々な群における膵島の経時的な血糖レベルを示すプロットである。示され得るように、サイクリンD2、CDK4、CDK6、又はGLP1での単一の遺伝子治療は血糖の正常化を生じなかった。しかし、この特定の実験において、サイクリンD2、CDK4、及びGLP1、又はサイクリンD2、CDK4、CDK6、及びGLP1の組合せを含む組成物は、4週間で血糖を正常なレベルまで回復させた。別の群の動物の長期間の研究により、180日までの効果持続期間が確認された。 HIP-hNeuroD1プラスミドの地図である。 RIP3.1-DsRedプラスミドの地図である。 RIP-DsRed4.1プラスミドの地図である。 RIP-DsRed5.1プラスミドの地図である。 RIP-DsRed2.1プラスミドの地図である。
本発明の新規特徴は、以下の発明の詳細な説明を検証することで当業者に明らかになろう。しかし、発明の詳細な説明及びその後の特許請求の範囲から、本発明の趣旨及び範囲内における様々な変更及び修飾が当業者にとって自明のものとなり、したがって、発明の詳細な説明及び提示する特定の実施例が、本発明の特定の実施形態を示しているものの、例示の目的のみで提供されたものであることが理解されよう。
本発明は、以下の特許請求の範囲の趣旨及び範囲から逸脱することなく、本明細書に記載する教示に照らして行うことが各々可能な修飾及び変化を含み得る。本発明の使用は、異なる特徴を有する構成要素を伴い得るものである。本発明の範囲は、本明細書に添付される特許請求の範囲により定義されるものであり、それにより、全ての点における同等物が完全に認識される。
本明細書では、ヌクレオチドについての「配列番号(#)で本質的に示される配列」、「に類似の配列」、「ヌクレオチド配列」という用語、及び類似の用語は、配列番号1として本明細書において同定される配列のあらゆる部分に実質的に対応する配列を指す。これらの用語は、合成分子及び天然由来の分子を指し、生物学的に、免疫学的に、実験的に、又はそれ以外の機能的に等しい活性、例えば、核酸セグメントによるハイブリダイゼーションに関する活性、又は、NeuroDの活性の全て若しくは一部をコードする能力を有する配列を含む。当然のことながら、これらの用語は、このような配列内の情報を、その線形の順序で特定されている通りに含むものである。
本明細書では、「遺伝子」という用語は、機能的なタンパク質、ポリペプチド、又はペプチドをコードする単位を指す。当業者には理解されるように、この機能的な用語は、ゲノム配列、cDNA配列、又はそれらの断片若しくは組合せと、遺伝子産物との両方を含み、これらは人の手によって改変されている可能性のあるものも含む。精製した遺伝子、核酸、タンパク質などは、それが通常関連している少なくとも1つの汚染核酸又は汚染タンパク質から同定及び分離した場合の、これらの実体を指すために用いる。
本明細書では、「ベクター」という用語は、ある細胞から別の細胞へDNAセグメント(複数可)を移す核酸分子を指す。ベクターは、特定の配列を増殖させるために設計されたベクターとして、又は特定の配列に作動可能に連結したプロモーターを含む発現ベクターとして、又はこのようなプロモーターを導入するために設計されたベクターとして、さらに定義され得る。ベクターは、宿主細胞の染色体から独立した状態で存在し得るか、又は宿主細胞の染色体内に組み込まれ得る。
本明細書では、「宿主細胞」という用語は、古細菌、原核生物、又は真核生物であろうとなかろうと、核酸セグメント又は改変したセグメントを含むように操作された細胞を指す。したがって、操作された細胞又は組換え細胞は、人の手を介して組換えにより導入された遺伝子を含まない天然の細胞から区別することが可能である。
本明細書では、「制御配列」という用語は、特定の宿主生物における作動可能に連結したコード配列の発現に必要なDNA配列を指す。原核生物に適した制御配列には、例えばプロモーターが含まれ、オペレーター配列、リボソーム結合部位、及び転写ターミネーターが含まれていてもよい。成長阻害量より低いレベルにFab'ポリペプチドの合成を抑制し、その一方で例えば対数期の間に細胞培養物を成長及び成熟させる、高度に調節された誘導性プロモーターを用い得る。
本明細書では、「作動可能に連結している」という用語は、第1及び第2の核酸配列の間の機能的な関係を指す。例えば、プレ配列又は分泌リーダーのDNAは、ポリペプチドの分泌に関与するプレタンパク質として発現する場合、ポリペプチドのDNAに作動可能に連結している。プロモーター若しくはエンハンサーが、コード配列の転写に作用する場合に、コード配列に作動可能に連結しているか、又は、リボソーム結合部位が、翻訳を促進するように位置している場合に、eコード配列に作動可能に連結している。通常、「作動可能に連結している」とは、結合対象のDNA配列が連続的であること、また分泌リーダーの場合は、連続的であり且つ同一のリーディングフレーム内にあることを意味する。エンハンサーは連続的である必要はない。結合は、適当な制限部位におけるライゲーションによって行われる。そのような部位が存在しない場合、合成オリゴヌクレオチドのアダプター又はリンカーを従来の慣例に従って用いる。
本明細書では、「細胞」及び「細胞培養物」という用語は互換的に用いられ、このような表記の全ては後代を含む。したがって、「形質転換体」及び「形質転換細胞」という語は、初代の対象細胞と、移動の数に関係なく、それらに由来する培養物とを含む。また、全ての後代は、意図的な又は不慮の突然変異により、DNA含量が正確には同一ではない場合があることも理解されたい。最初に形質転換した細胞においてスクリーニングされたものと同一の機能又は生物学的活性を有する突然変異の後代が含まれる。異なる表記は明らかな文脈から明らかとなろう。
本明細書では、「プラスミド」は、小文字pを大文字及び/又は数字の前及び/又は後に付けることによって表記される。市販の開始プラスミドは、無制限で公然に利用可能であるか、又は、このような利用可能なプラスミドから、公開された手順に従って構築可能である。加えて、他の同等のプラスミドが当技術分野において知られており、当業者に自明であろう。
本明細書では、「タンパク質」、「ポリペプチド」、又は「ペプチド」という用語は、ペプチド結合を介して結合しているアミノ酸を含む化合物を指し、互換的に用いられる。
本明細書では、「内因性」という用語は、供給源が細胞内に由来する物質を指す。内因性物質は細胞の代謝活性により産生される。しかし、それにもかかわらず、内因性物質は、例えば物質をコードする遺伝子を細胞に発現させるためのものといった、細胞代謝の操作の結果として産生され得る。
本明細書では、「外因性」という用語は、供給源が細胞外にある物質を指す。核酸について言及する場合、「外因性」は、細胞にとって外来の核酸配列、又は細胞に相同であるが、宿主細胞の核酸内の、通常はそのエレメントが見られない位置に存在している核酸配列を指す。にもかかわらず、外因性物質は、当業者に知られている様々な代謝手段又は誘導手段のいずれか1つにより、細胞に内在化し得る。
遺伝子のゲノム形態又はクローンは、「イントロン」又は「介在領域」又は「介在配列」と呼ばれる非コード配列が介在したコード領域を含む。イントロンは、核RNA(hnRNA)に転写される遺伝子のセグメントであり、イントロンは、エンハンサーのような調節エレメントを含み得る。イントロンは、核又は一次転写産物から除去されるか、削除されるか、又は「スプライシング」される。したがって、イントロンは、メッセンジャーRNA(mRNA、messenger RNA)転写産物には存在しない。翻訳の際のmRNAの機能は、新生ポリペプチドにおけるアミノ酸の配列又は順序を特定することである。
イントロンを含むことに加え、遺伝子のゲノム形態は、RNA転写産物上に存在する配列の5’末端及び3’末端の両方に位置する配列も含み得る。これらの配列は「隣接」配列又は「隣接」領域と呼ばれる(これらの隣接配列は、mRNA転写産物上に存在する非翻訳配列の5’又は3’に位置する)。5’隣接領域は、遺伝子の転写を制御するか又はそれに影響を与える、プロモーター及びエンハンサーのような調節配列を含み得る。3’隣接領域は、転写の終結、転写後の切断、及びポリアデニル化を指示する配列を含み得る。
DNA分子は「5’末端」及び「3’末端」を有すると言われているが、それは、モノヌクレオチド同士が反応して、モノヌクレオチドの1つのペントース環の5’リン酸がその隣のペントース環の3’酸素にホスホジエステル結合を介して一方向に結合するようなオリゴヌクレオチドを形成するためである。したがって、オリゴヌクレオチドの5’リン酸がモノヌクレオチドのペントース環の3’酸素に結合していない場合は、オリゴヌクレオチドの末端は「5’末端」と呼ばれ、オリゴヌクレオチドの3’酸素が次のモノヌクレオチドのペントース環の5’リン酸に結合していない場合は「3’末端」と呼ばれる。本明細書では、核酸配列は、大きなオリゴヌクレオチドの内部にある場合でも、5’末端及び3’末端を有するものとすることができる。直鎖状又は環状のDNA分子のいずれかにおいて、個々のエレメントは、「下流」又は3’側のエレメントの「上流」又は5’側にあると言われる。この用語は、転写がDNA鎖に沿って5’から3’の方向で進むことを反映している。
本明細書では、「形質転換」という用語は、外因性DNAをレシピエント細胞の中に入れそれを変化させるプロセスを指し、例えば、その外因性DNAは、NeuroD、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAを発現するためのプロモーター及びコード配列を含む、1又は2以上のプラスミドである。形質転換は、当技術分野において周知の様々な方法を用いて、天然の又は人工的な条件下において生じさせることができる。形質転換では、外来の核酸配列を原核宿主細胞又は真核宿主細胞内に挿入するために、あらゆる既知の方法を用いることができる。その方法は形質転換する宿主細胞に基づいて選択され、限定はしないが、ウイルス感染、エレクトロポレーション、リポフェクション、及び粒子衝突を含み得る。このような「形質転換」細胞には、挿入されたDNAが自己複製プラスミドとして又は宿主染色体の一部のとしてのいずれかで複製し得る、安定な形質転換細胞が含まれる。
本明細書では、「トランスフェクション」という用語は、外来DNAを真核細胞内に導入することを指す。トランスフェクションは、例えばリン酸カルシウム−DNA共沈殿、DEAE−デキストランを用いたトランスフェクション、ポリブレンを用いたトランスフェクション、エレクトロポレーション、マイクロインジェクション、リポソーム融合、リポフェクション、プロトプラスト融合、レトロウイルス感染、及びバイオリスティックを含む、当業者に知られている様々な手段によって行うことができる。したがって、「安定なトランスフェクション」又は「安定にトランスフェクトした」という用語は、トランスフェクトする細胞のゲノム内への外来DNAの導入及び組込みを指す。「安定な形質転換体」という用語は、ゲノムDNA内に外来DNAを安定に組み込まれた細胞を指す。また、この用語は、挿入したDNA又はRNAを限られた時間にわたって一過性に発現する細胞も含む。したがって、「一過性トランスフェクション」又は「一過性にトランスフェクトした」という用語は、トランスフェクトする細胞のゲノム内に外来DNAが組み込まれていない細胞内に外来DNAを導入することを指す。外来DNAは数日間、トランスフェクトした細胞の核内に残存する。この時間の間、外来DNAは、染色体における内因性遺伝子の発現を管理する調節制御を受ける。「一過性トランスフェクタント」という用語は、外来DNAを取り込んではいるがこのDNAを組み込んではいない細胞を指す。
本明細書では、「ベクター」という用語は、ある細胞から別の細胞へDNAセグメント(複数可)を移す核酸分子に関して用いる。「媒体」という用語は「ベクター」と互換的に用いる場合がある。本明細書において用いる「ベクター」という用語は、所望のコード配列と特定の宿主生物における作動可能に連結したコード配列の発現に必要な適切な核酸配列とを含む組換えDNA分子に関する発現ベクターも含む。原核生物における発現に必要な核酸配列には、通常、プロモーター、(任意の)オペレーター、及びリボソーム結合部位が含まれ、他の配列を伴うことが多い。真核細胞は、プロモーター、エンハンサー、並びに終結シグナル及びポリアデニル化シグナルを用いることが知られている。
本明細書では、「増幅する」という用語は、核酸に関して用いる場合は、当技術分野において知られているあらゆる方法によって核酸配列の多くのコピーを産生することを指す。増幅は、鋳型特異性を伴う、核酸の複製の特別なケースである。鋳型特異性は「標的」特異性という用語で記載されることが多い。標的配列は、それらを他の核酸から区別されるべきであるという意味で「標的」である。増幅技術は、主にこの区別のために設計されている。
本明細書では、「プライマー」という用語は、核酸鎖に相補的なプライマー伸長産物の合成が誘導される条件下(すなわち、ヌクレオチド、及びDNAポリメラーゼのような誘導剤の存在下、適切な温度及びpH)にある時に合成の開始点として作用し得る、精製された制限消化物内にあるように自然に生じるか又は合成的に産生されるオリゴヌクレオチドを指す。プライマーは、増幅の最大の効率のためには一本鎖であり得るが、二本鎖であってもよい。二本鎖である場合、プライマーは、まずその二本鎖の鎖を分離するための処理をし、その後、伸長産物を調製するために用いる。プライマーは、誘導剤の存在下で伸長産物の合成を開始するために十分長くなくてはならない。プライマーの正確な長さは、温度、プライマーの源、及び用いる方法を含む多くの要素に依存する。
本明細書では、「プローブ」という用語は、所望の別のオリゴヌクレオチドにハイブリダイズし得る、精製された制限消化物内にあるように自然に生じるか、又は合成的に、組換えにより、若しくはPCR増幅により産生される、オリゴヌクレオチド(すなわち、ヌクレオチドの配列)を指す。プローブは一本鎖又は二本鎖であり得る。プローブは、特定の遺伝子配列の検出、同定、及び単離に有用である。本発明において用いるあらゆるプローブは、あらゆる「レポーター分子」で標識されるものであり、それにより、限定はしないが、酵素(例えば、ELISA、及び酵素に基づいた組織化学的アッセイ)、蛍光、放射能、及び発光のシステムを含む、あらゆる検出システムにおいて検出可能である。本発明は、いかなる特定の検出システム又は標識にも限定されるものではない。
本明細書では、「標的」という用語は、ポリメラーゼ連鎖反応に関して用いる場合、ポリメラーゼ連鎖反応に用いるプライマーが結合している核酸の領域を指す。したがって、「標的」は、他の核酸配列から区別されるべきものである。「セグメント」は、標的配列内の核酸の一領域として定義される。標的は、細胞又は組織に関して用いる場合、細胞内に核酸を送達して細胞の機能を変えるための、例えば、1又は2以上のBTC遺伝子又はPDX1遺伝子を発現させるための、細胞に対して外因性のベクター(例えば、ウイルス、リポソーム、又はさらに裸の核酸)を用いた標的化を指す。
本明細書では、「ポリメラーゼ連鎖反応」(「PCR(polymerase chain reaction)」)という用語は、クローニング又は精製を行うことなくゲノムDNAの混合物における標的配列のセグメントの濃度を増大させるための方法を記載している、参照することにより本明細書に組み込まれる、K. B. Mullisの米国特許第4,683,195号明細書、米国特許第4,683,202号明細書、及び米国特許第4,965,188号明細書の方法を指す。標的配列を増幅するためのこのプロセスは、所望の標的配列を含むDNA混合物に対する、非常に過剰な2つのオリゴヌクレオチドプライマーを含み、その後、DNAポリメラーゼの存在下で正確な一連の熱サイクルを行う。2つのプライマーは、それらの各々の、二本鎖標的配列の鎖に対して相補的である。増幅を行うために、混合物を変性し、次にプライマーをそれらに相補的な標的分子内の配列にアニーリングする。アニーリングの後、プライマーをポリメラーゼで伸長し、相補鎖の新たな対を形成させる。変性段階、プライマーのアニーリング段階、及びポリメラーゼ伸長段階は、所望の標的配列の増幅セグメントを高濃度にするために何度も反復することができる(すなわち、変性、アニーリング、及び伸長は1つの「サイクル」を構成し、多くの「サイクル」を行うことができる)。所望の標的配列の増幅セグメントの長さは、プライマー同士の相関位置によって決定され、したがって、この長さは調節可能なパラメータである。プロセスの反復態様により、この方法は「ポリメラーゼ連鎖反応」(以下では「PCR」)と呼ばれる。標的配列の所望の増幅セグメントは混合物における(濃度の観点から)主要な配列となるため、それらは「PCR増幅産物」と呼ばれる。PCRでは、ゲノムDNAにおける特定の標的配列の1つのコピーを、いくつかの異なる手法(例えば、標識したプローブとのハイブリダイゼーション、ビオチニル化したプライマーの組込みの後のアビジン−酵素複合体の検出、増幅セグメントへの32Pで標識したDCTP又はDATPのようなデオキシヌクレオチド三リン酸の組込み)によって検出することが可能なレベルまで増幅することが可能である。ゲノムDNAに加え、あらゆるオリゴヌクレオチド配列を適切なプライマー分子のセットで増幅することができる。特に、PCRプロセス自体により生成した増幅セグメント自体、その後のPCR増幅のための有効な鋳型である。
本明細書では、「染色試薬」という用語は、試薬を含む核酸配列の全てのハイブリダイゼーションパターンを指す。ゲノムの一部分に特異的な染色試薬により、標的の染色体物質と非標的の染色体物質との間でコントラストが生じる。多くの異なる異常は、1又は2以上の色で検出されるゲノムの部分上のあらゆる所望の染色パターン(複数色の染色パターン)及び/又は他の指示法により検出し得る。
本明細書では、「導入遺伝子」という用語は、哺乳動物のゲノム、例えば生きている動物の哺乳動物細胞内に人工的に挿入し得る遺伝物質を指す。「トランスジェニック動物」という用語は、本明細書において、その動物の細胞の一部において染色体外エレメントとして存在するか又はその動物の生殖系のDNA内(すなわち、ほとんどの又は全ての細胞のゲノム配列内)に安定的に組み込まれている非内因性(すなわち異種)核酸配列を有する、ヒト以外の動物、通常は哺乳動物を記載するために用いる。異種核酸は、当技術分野において周知の方法に従って、例えば宿主動物の胚又は胚性幹細胞を遺伝的に操作することにより、そのようなトランスジェニック動物の生殖系に導入される。
本明細書では、「導入遺伝子」という用語は、そのような異種核酸、例えば、発現構築物の形態の異種核酸(例えば、「ノックイン」トランスジェニック動物の作製用)、又は標的遺伝子内若しくは標的遺伝子の近傍に挿入されると標的遺伝子の発現を減少させる異種核酸(例えば、「ノックアウト」トランスジェニック動物の作製用)を指す。遺伝子の「ノックアウト」とは、標的遺伝子の機能を低下させて、好ましくは標的遺伝子の発現を検出不可能にするか又は有意でないものにする、遺伝子の配列における改変を意味する。トランスジェニックノックアウト動物は、標的遺伝子のヘテロ接合型のノックアウト、又は標的遺伝子のホモ接合型のノックアウトを含む。
本明細書では、「幹細胞」という用語は、例えば胚性幹細胞などの全能性又は多能性の幹細胞、及び、限定はしないが発生の胚盤胞段階にある細胞を含む、胚の発生の非常に早い段階にある多能性細胞を指す。本発明での使用の特定の一例として、幹細胞は、腺房細胞又はベータ細胞に分化していない膵臓細胞前駆体であり得、NeuroD、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAを発現するための標的として用いられる。
先行特許出願において、本発明者らは、超音波標的マイクロバブル破壊(UTMD、ultrasound-targeted microbubble destruction)を用いて、遺伝子治療の標的を正常なラットの膵島とし得ることを明らかにした。プラスミドDNAを保有する静脈内のマイクロバブルは、膵臓の微小循環において超音波によって選択的に破壊され、それにより、プラスミドを局所的に送達する。膵島の特異性は、プラスミドDNA内にラットのインスリン−Iプロモーターを組み込むことにより得られた。現在、ラットのストレプトゾトシン(STZ、streptozotocin)誘発性の糖尿病において、ベータセルリン(BTC、betacellulin)を単独で及びPDX1と組み合わせて送達するためにUTMDを用い得ることが明らかになっている。標的細胞の形質転換により、BTC及びPDX1で処理したラットにおいて見られる、グルカゴンを染色した細胞の初期の膵島様塊が生じた。この研究において、塊は処理の30日後までに消失した。正常な膵島の再生は見られなかったが、ベータ細胞マーカーを用いて膵腺房細胞をインスリン産生細胞に形質転換することにより、糖尿病はUTMDの15日後までに回復した。
糖尿病は有病率が増加してきており、世界中で5%を超える人々が罹患している。新規の医薬、膵島移植、及び遺伝子治療を含む、新規の治療戦略が、糖尿病を治療するために強く求められている。膵島を標的とするインビボでの直接的な膵臓遺伝子送達は、糖尿病遺伝子治療のための重要なアプローチである。アデノウイルス、アデノ付随ウイルス、レンチウイルス、及び単純ヘルペスウイルス−1のベクターが、インビボにおいて膵島に有効な遺伝子を移入しているが、宿主免疫応答及びベクター細胞障害性を被ることが、今までの研究により示されている。また、裸のDNA及びDNA複合体を含む、非ウイルス遺伝子送達系により、一過性導入遺伝子発現を有するように、非常に低いレベルでの膵島細胞トランスフェクションが実証されている。しかし、非ウイルスベクター系は、臨床試験に関する生物安全性をより容易に満たすようである。
超音波標的マイクロバブル破壊(UTMD)は、インビボにおいて遺伝子又は薬物を膵島に送達するために使用されている。簡潔に述べると、遺伝子はカチオン性リポソーム内に導入され、次いで気体が充填されたマイクロバブルのリン脂質殻に結合され、次いでそのマイクロバブルが静脈内に注入され、無処置の膵島の微小循環において超音波により破壊される。UTMDアプローチは、ほとんどのベータ細胞が存在している、膵島の中心部全体のトランスフェクションを可能にする。UTMDは、ベータ細胞特異性を高めるためにラットインスリンプロモーター(RIP、rat insulin promoter)と組み合わされている。本発明は、RIPセグメントの長さを変化させることによって遺伝子発現の微分効率を非常に向上させる。インスリン遺伝子のエクソン1及びエクソン2における非コード領域を融合して、プラスミドにおける下流遺伝子機能を高めた。転写レベルにおいて、インスリンmRNAの融合は、それらの転写レベルが、正常な膵島のベータ細胞における正常なインスリンmRNAレベルに類似するような高レベルまで下流遺伝子発現を上方制御した。次いで、UTMDを使用して、成体の生きている動物の無処置の膵島に対して駆動するラットインスリンプロモーターの制御下のインスリン遺伝子融合プラスミドを送達し、それによって、糖尿病遺伝子治療のための安全で、組織特異的で、非常に効果的な調節された遺伝子発現を与えた。
[実施例]
新規プロモーター。
材料及び方法。ラットインスリンプロモーター及びプラスミド構築物。配列番号1として本明細書に定義されている、ラットインスリン遺伝子1プロモーター断片(RIP2.1(−412〜−303)、RIP1.1(−412〜−1)、RIP4.1(−412〜+43)、RIP3.1(−412〜+165))、GenBank受託番号J00747、及び配列番号2として定義されているヒトインスリンプロモーターについてGenBank受託番号NC_000011(これらの両方は本明細書に参照として組み込まれる)を、PCRを用いてSprague-Dawley(SD)ラットDNAから増幅させた。RIPフォワードプライマー(5’-G CTG AGC TAA GAA TCC A-3’)(配列番号3)、RIP2.1リバースプライマー(5’-CTGAGC ATTTTCCACC-3’)(配列番号4)、RIP1.1リバースプライマー(5’-GGGAGTTACTGGGTCTCCA-3’)(配列番号5)、RIP4.1リバースプライマー(5’-GCAGAATTCCTGCTTGCTGATGGTCTA-3’)(配列番号6)、RIP3.1リバースプライマー(5’-GTTGGAACAATGACCTGGA-3’)(配列番号7)、並びにKpnI及びxho1制限酵素部位をそれぞれ含むリバースプライマー(5-GGCAGAAGGACAGTGATCT-3)(配列番号8)。これらのプライマーの配列は表1に記載している。得られたDNA断片を、pGL2-basicホタルレポータープラスミド及びpDsRed1-1レポーターベクターにサブクローニングした。SV40−プロモーターホタルルシフェラーゼレポータープラスミド、Promega社製のpGL2-Control、pDsRed1-1及びClonetech社製のpCMV-DsRed-express-1。ラットゲノムDNAを、製造業者の指示書に従ってQIAamp Blood kit(Qiagen Inc社製、Valencia、CA)を用いてラット末梢血から抽出した。対応するPCR産物を、アガロースゲル電気泳動により検証し、QIAquick Gel Extraction kit(QIAGEN社製)により精製した。配列を確認するために、PCR産物の直接配列決定を、ABI 3100 Genomic AnalyzerでdRhodamine Terminator Cycle Sequencing Kit(PE Applied Biosystems社製、Foster City、CA)を用いて実施した。プラスミドの消化、ライゲーション、サブクローニング、単離及び精製を、標準的手段により実施し、人工の変異が存在しないことを確認するために、再度、配列決定した。
Figure 2012508585
ラットUTMDプロトコル。Sprague-Dawleyラット(250〜350g)を、ケタミン(100mg/kg)及びキシラジン(5mg/kg)の腹腔内投与により麻酔した。ポリエチレンチューブ(PE50、Becton Dickinson社製、MD)を切開により右内頸静脈に挿入した。前腹部の毛を剃り、S3プローブ(Sonos 5500、Philips Ultrasound社製、Andover、MA)を入れて左腎及び脾臓を画像化し、これにより左腎及び脾臓が容易に識別される。左腎及び脾臓の間に膵臓があるので、プローブを調節して膵臓を標的とし、所定の位置に固定した。1mlのマイクロバブル溶液を、注入ポンプを用いて、20分間、3ml/hの一定の速度で注入した。注入の間、マイクロバブル破壊を、1.2〜1.4のメカニカルインデックス及び4cmの深度の超高調波モード(送信1.3MHz/受信3.6MHz)を用いて達成した。超音波パルスは、4回の心臓周期毎に4フレームの超音波のバーストを送達するために、(R波のピーク後80msにて)ECGにより誘発した。これらの設定は、UTMDを用いる遺伝子送達に最適な超音波パラメータであることが以前に示されている。各送達の終わりに、頸静脈を結紮し、皮膚を縫合した。送達後、正常な挙動に関して全てのラットをモニターした。4日後にラットを屠殺し、膵臓を採取した。
プラスミドを含有する、脂質で安定化させたマイクロバブルの製造。脂質で安定化させたマイクロバブルを調製した(Ayuso E, Chillon M, Agudo J, Haurigot V, Bosch A, Carretero A, Otaegui PJ, Bosch F: In vivo gene transfer to pancreatic beta cells by systemic delivery of adenoviral vectors. Human Gene Ther 15:805-812, 2004、Wang AY, Peng PD, Ehrhardt A, Storm TA, Kay MA: Comparison of adenoviral and adeno-associated viral vectors for pancreatic gene delivery in vivo. Human Gene Ther 15:405-413, 2004)。簡潔に述べると、2.5mg/mlのDPPC(1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルコリン、Sigma社製、St.Louis、MO)、0.5mg/mlのDPPE(1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルエタノールアミン、Sigma社製、St.Louis、MO)の溶液と、10%グリセロールとを、2:1の比で2mgのプラスミド溶液と混合した。このリン脂質−プラスミド溶液の0.5mlの一定分量を1.5mlの透明バイアルに加え、上部に残っている空間にペルフルオロプロパンガス(Air Products, Inc社製、Allentown、PA)を満たした。各バイアルを40℃で30分間インキュベートし、次いで歯科用混合器(Vialmix(商標)、Bristol-Myers Squibb Medical Imaging社製、N.Billerica、MA)によって20秒間、機械的に振動させた。脂質で安定化させたマイクロバブルは、未結合のプラスミドDNAを含有している液体の層の上部に浮遊している乳白色の懸濁液として現れる。下層部(subnatant)を捨て、マイクロバブルをPBSで3回洗浄して未結合のプラスミドDNAを除去した。上層のマイクロバブルの平均直径及び濃度を粒子計数器(Beckman Coulter Multisizer III)によって測定した。
DsRed DNAを検出するためのin situ PCR。DsRedプライマー。一対のDsRedプライマーをDsRed DNAに対して使用した:それらはDsRed 125+(5’-GAGTTCATGCGCTTCAAGGTG-3’)及びDsRed 690−(5’-TTGGAGTCCACGTAGTAGTAG-3’)である。屠殺直後、200mlの動脈内冷却塩溶液によりラットから血液を取り出し、続いて100mlの2%パラホルムアルデヒド及び0.4%グルタルアルデヒドを用いて潅流固定した。膵臓を0.5cmの小片に切断し、4℃で20%のスクロース溶液中に一晩置き、次いで−86℃でOTCモールドに入れた。5μm厚の凍結切片を、シランでコーティングしたスライド上に置き、4℃で15分間、4%パラホルムアルデヒド中で固定し、5分間、PBS中の10mMグリシンで反応を止め、PBSですすぎ、PBS中の0.5%Triton X-100で10分間透過し、PBSで10分間すすいだ。カバースリップの片側に1滴のマニキュア液をつけた。次いでスライドをアルミニウムの「ボート」中でサーモサイクラーのブロック上に直接置いた。50μlのPCR反応溶液(0.8ユニットのTaq DNAポリメラーゼ、2μlのDsRedプライマー、3μlのDIG−dNTP、5μlの10×緩衝液及び40μlの水)を各スライドに加え、製造業者の指示書に従ってAssembly Tool(Perkin Elmer社製)を用いて、AmpliCover Disc and Clipsにより覆った。in situ PCRをPerkin-Elmer GeneAmp system 1000を用いて以下のように行った。最初に94℃で維持した(1分間)後、PCRを11サイクル行った(94℃で1分、54℃で1分、及び72℃で2分)。増幅後、スライドを2×SSCに10分間、及び0.5%パラホルムアルデヒドに5分間、及びPBSに5分間を2回浸した。ジゴキシゲニンを組み込んだDNA断片を、DIG検出用に設定された蛍光抗体エンハンサー(Roche社製)を用い、続いて組織化学的染色(PCR DIG Prob Synthesis Kit(Roche Co.社製、カタログ番号:1636090))により検出した。まず、切片を30分間ブロッキング溶液でインキュベートして、抗体の膵臓組織への非特異的結合を減少させた。次いで、切片を、加湿器中で37℃にて1時間、50μlの抗DIG溶液(1:25)でインキュベートした。次に、スライドを振盪しながらPBSで3回、各5分間洗浄した。再度スライドを37℃で1時間、50μlの抗マウス−IgG−ジゴキシゲニン抗体溶液(1:25)でインキュベートした。スライドを振盪しながらPBSで3回、各5分間、再度洗浄した。スライドを、37℃で1時間、50μlの抗DIG−蛍光溶液(1:25)でインキュベートした。次いで、スライドを振盪しながらPBSで3回、各5分間、再度洗浄した。最後に、切片を70%EtOH、95%EtOH及び100%EtOHで、各2分間、脱水し、キシレンで清澄し、カバースリップをかけた。
DsRed mRNAを検出するためのin situ RT−PCR。DsRedプライマー。一対のDsRedプライマーをDsRed cDNAに対して使用し、それらはDsRed 125+(5’-GAGTTCATGCGCTTCAAGGTG-3’)及びDSRed 690−(5’-TTGGAGTCCACGTAGTAGTAG-3’)である。潅流固定した凍結切片は上記のように調製した。DNase処理は、50μlのカクテル溶液(Invitrogen社製)(5μlのDNase I、5μlの10×DNase緩衝液、及び40μlの水)を用いて、各スライド上で行い、カバースリップをかけ、25℃で一晩インキュベートし、次いでPBSで5分間、2回洗浄した。
逆転写:第1鎖cDNA合成を、50μlのカクテル溶液(RT−PCR用のSuperscript First-strand synthesis system、Invitrogen kit # 11904-018)(1μlのDsRed727−プライマー(5’-GATGGTGATGTCCTCGTTGTG-3’)、5μlのDTT溶液、2.5μlのdNTP、5μlの10×緩衝液、5μlの25mM MgCl、29μlの水及び2.5μlのSuperScript II RT)を用いて、50μlの総容量にて各スライド上で行った。カバースリップを置き、スライドを42℃で2時間インキュベートし、PBSで5分間、2回洗浄し、100%ETOHで1分間すすぎ、乾燥させた。
DsRedタンパク質、インスリン、及びグルカゴンを検出するための免疫組織化学。厚さ5〜8μmのクリオスタット切片を、4%パラホルムアルデヒド中で4℃にて15分間固定し、PBS中の10mMグリシンを用いて5分間反応を止めた。次いで、切片をPBS中で3回すすぎ、PBS中の0.5%Triton X-100で10分間透過した。切片を10%ヤギ血清で37℃にて1時間ブロックし、PBSで3回洗浄した。一次抗体(Sigma Co.社製)(ブロック溶液中で1:10000希釈)を加え、4℃で一晩インキュベートした。PBSで3回、5分間洗浄した後、二次抗体(Sigma Co.社製、FITC結合抗マウスIgG)(ブロック溶液中で1:500希釈)を加え、37℃で1時間インキュベートした。切片をPBSで10分間、5回すすぎ、次いで載せた。
細胞培養及び一過性トランスフェクションアッセイ。INS−1細胞株(Newgard lab、Duke Universityから無料提供されたラットインスリノーマ)を細胞に適した培地に維持した。INS−1細胞を、各ウェル、1μgのルシフェラーゼレポータープラスミド及び内部対照プラスミドとして0.02μgのpTS−RLウミシイタケルシフェラーゼ及び100μlの無血清DMEM中の3μlのリポフェクタミン2000でトランスフェクトした。細胞を収集し、ホタル及びウミシイタケルシフェラーゼ活性を、Dual Luciferase Assay system(Promega社製)及びTurner TD 20/20照度計を用いてトランスフェクションの48時間後に測定した。
統計分析。実験群の間のルシフェラーゼ活性の差異は、2元ANOVAにより比較した。p値<0.05は統計的に有意であるとみなした。ScheffeのPost-hoc検定を、ANOVA F値が統計的に有意である場合のみ行った。
図1は、ラットインスリンプロモーター領域並びにエクソン1、イントロン1及びエクソン2の概略図である。ラットインスリンプロモーターは、既知の配列エレメント並びに融合エクソン1及びエクソン2により示される。
図2:上図は、3つの異なるグルコース濃度下にてrip−lucをトランスフェクトしてから48時間後のINS−1細胞溶解物のルシフェラーゼ活性である。下図は、高グルコース濃度下のrip−lucでのトランスフェクション後の異なる培養時間における培養溶液のルシフェラーゼ活性であり、グルコースを含まない場合、及び正常なグルコース濃度においてルシフェラーゼ活性は存在しない(データは示さず)。
図3.A:RIP3.1−DsRedスライド。上左:緑は抗インスリン、上中央の赤は抗dsred、上右はそれらの共焦点像である。下図は連続的な切片及び同様の膵島構造であり、下左:緑は抗グルカゴン、下中央:赤は抗dsred、下右はそれらの共焦点像である。B:RIP−4.1−dsred、C:RIP−1.1−dsred、D:RIP−1.1−dsredスライド、E:pCMV-dsred、F:正常対照。
図4:A画像は10%グルコースを与えたpRIP3.1-DsRedラットの場合である。上右の緑は抗インスリン、上中央の赤は抗dsred、上左はそれらの共焦点画像である。下右の緑は抗グルカゴン、下中央の赤は抗dsred、下左はそれらの共焦点画像である。B画像は一晩絶食させたpRIP3.1-DsRedラットである。
図5:上図。対照ラット(左)及びUTMDで処理したラット(中央は餌を与えたラット、右は絶食させたラット)由来の顕微鏡用切片(400倍)。in−situ PCRを使用して、DsRedプラスミドDNAを染色し、そのDsRedプラスミドDNAは処理した膵臓全体にわたって見られる。膵島は明確に見える(矢印)。下図。対照ラット(左)及びRIP6.1−DsRedを使用してUTMDで処理したラット(餌を与えたラットとして中央及び絶食させたラットとして右)由来の切片(400倍)。in−situ RT−PCRを使用して、DsRed mRNAを染色し、そのDsRed mRNAは膵島中心(中央/餌を与えた)に局在する。膵島の境界で染色した(右/絶食させたラット)。
ラットインスリンプロモーターは、ラットインスリノーマ細胞株(INS−1)でルシフェラーゼ遺伝子トランスフェクションを駆動することを見出した。プラスミドでの発現を駆動する従来のラットインスリンプロモーターは低効率の組織発現を示し、インビボ送達系において高度に組織特異的ではない。本発明は、インスリン1遺伝子のエクソン1及びイントロン1並びにインスリン遺伝子調節に以前は使用されていなかったエクソン2の部分が含まれるインスリンプロモーターを含む。特定の実施形態において、インスリンプロモーターは、ラットインスリンプロモーター、ヒトインスリンプロモーター又はそれらの組合せである。
図2は、正常なグルコースレベル下で、RIP3.1のルシフェラーゼ活性が、RIP2.1(切断RIPプロモーター)より4726倍高く、RIP1.1(完全長の従来のRIP)より20倍高く、さらにCMV−ルシフェラーゼの3.1倍を示したことを示す。グルコースを含まない条件下で、全ての構築物についてのINS−1の遺伝子発現は著しく阻害され、RIP3.1のルシフェラーゼ活性はまだ、RIP1.1の6.6倍、CMVの2.6倍であった。高グルコースレベル下で、RIP3.1のルシフェラーゼ活性は、RIP2.1の3515倍、RIP1.1の6.9倍、及びCMVの0.6倍であった。驚くべきことに、高グルコース条件下で、ルシフェラーゼ活性は、トランスフェクションの8、16、24、32及び48時間後にRIP3.1ディッシュの培養液から検出され得る。グルコースを含まない条件及び正常なグルコース培養条件で分泌は全く見出されなかった(データは示さず)。ルシフェラーゼを駆動するRIP3.1は、高効率であり、グルコース応答性が実証されているだけでなく、INS−1細胞株の培養液中に発現タンパク質を分泌した。
UTMDを用いて生きているラットの膵島に送達されるRIPにより駆動するDsRedプラスミド。単に細胞株のみならず、実際の条件下で、生きている動物の膵島における、上記のRIPプロモーターの遺伝子発現及び調節をより理解するために、それらのRIPプロモーターにより駆動するDsRedプラスミドを、超音波標的マイクロバブル破壊(UTMD)を用いて生きているラットの膵臓に送達し、UTMDから4日後に屠殺した。図3は、RIP3.1及びRIP4.1のDsRedタンパク質が、膵島の中心部及び境界を含んだ未処置の膵島において検出され、非膵島領域には見られないことを示す。驚くべきことに、共焦点画像により、DsRedタンパク質が、膵島中のベータ細胞及びアルファ細胞において検出されたことが示された。DsRedタンパク質シグナルは完全長のRIP1.1において非常に低く、切断RIP2.1においてはほとんど見られなかった。DsRedタンパク質のシグナルは、CMV−DsRedプラスミドで処理したラットの膵臓スライドのあらゆる所に見られた。しかし正常なラットの対照膵臓スライドにおいて、DsRedシグナルは検出できなかった。
次に、インビトロにおいてINS−1細胞株で見られたように、送達されたRIPプラスミドの遺伝子発現が、ラット膵島においてグルコースレベルにより調節可能であるか否かを決定した。ラットを処理するために、RIP3.1 DsRedを選択して使用し、ラットを絶食(12時間)及び給餌(10%のグルコースを含む)の群に分け、次いで屠殺した。図4は、上図において、(10%のグルコース給餌)DsRedシグナルが、膵島のベータ細胞及びアルファ細胞において見られたことを示す。下図において、(12時間絶食させた)DsRedシグナルは膵島のアルファ細胞においてのみ見られたが、膵島のベータ細胞においては見られなかった。これにより、グルコースの給餌が、完全な膵島細胞においてRIP3.1−DsRed遺伝子発現の上方制御を誘発し、絶食が、ベータ細胞においてRIP3.1−DsRed遺伝子発現の下方制御を誘発し、アルファ細胞において機能するRip3.1−DsRed遺伝子を維持することが示された。
プラスミドDNAについてのin situ PCR及びDsRed mRNAについてのin Situ RT−PCR:図5(上及び中央は10%グルコース給餌、左図は絶食させた)は、RIP3.1−DsRedプラスミドDNAに対するin situ PCRの結果を示す。プラスミドDNAは、膵島を含む、核パターンにおいて膵臓全体にわたって見られる。プラスミドの同種核組織局在の同様のパターンを、超音波ビーム内の左腎、脾臓、及び肝臓部分に観察した。プラスミドは、超音波ビームの外側にある右腎又は骨格筋、器官に存在しなかった。対照(上右図)(プラスミドを有さないマイクロバブル又は超音波を有さないプラスミド−マイクロバブル)は、膵臓内でプラスミドの痕跡を何も示さなかった。これらの結果により、超音波処理により、膵臓内及びそのすぐ近くにプラスミドが放出されたことが示される。
図5の下中央図(10%グルコース給餌)は、RIP3.1プロモーターの制御下で発現されるDsRed転写産物に対応するmRNAに対するin situ RT−PCRの代表的な例を示す。DsRed mRNAは膵島全体にわたって見られたが、膵実質においては見られず、RIPプロモーターが、膵臓内分泌物においてのみ、UTMDにより送達されたDsRed cDNAの転写に関与していることが示される。下左図(絶食)は、膵島中心部でなく膵島境界領域におけるDsRed mRNA分布を示す。対照のシグナルは検出されなかった。さらなる構築物を図11〜15に示す。
インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及びストレプトゾトシン誘発性の糖尿病の回復。
インスリン補充を含む、薬物療法は、正常な膵島のグルコース調節機能を再現できないため、血糖管理は、しばしば、糖尿病において不十分になる。したがって、新規の治療戦略は、膵島移植又はベータ細胞再生による糖尿病の両方の主要な形態に共通のベータ細胞塊の欠乏を補充することに焦点を当てている(Newgard CB: While tinkering with the s-cell metabolic regulatory mechanisms and new therapeutic strategies: American Diabetes Association Lilly Lecture, 2001. Diabetes 51:3141-3150, 2002、Bonner-Weir, S. and Weir, G.C. New sources of pancreatic s-cells. Nat. Biotechnol. 23:857-861, 2005)。膵島移植は、供与膵島の供給により制限されており、免疫抑制療法を必要とする(Samson, SL, Chan L. Gene therapy for diabetes: reinventing the islet. Trends in endocrinology and metabolism 17:92-100, 2006)。膵島再生は、安全の理由のためにヒトにおいて使用される可能性は低いウイルスベクター(McClane SJ, Chirmule N, Burke CV, Raper SE: Characterization of the immune response after local delivery of recombinant adenovirus in murine pancreas and successful strategies for readministration. Human Gene Ther 8:2207-2216, 1997、Ayuso E, Chillon M, Agudo J, Haurigot V, Bosch A, Carretero A, Otaegui PJ, Bosch F: In vivo gene transfer to pancreatic beta cells by systemic delivery of adenoviral vectors. Human Gene Ther 15:805-812, 2004、Wang AY, Peng PD, Ehrhardt A, Storm TA, Kay MA: Comparison of adenoviral and adeno-associated viral vectors for pancreatic gene delivery in vivo. Human Gene Ther 15:405-413, 2004、Gao GP, Alvira MR, Wang L, Calcedo R, Johnston J, Wilson JM: Novel adeno-associated viruses from rhesus monkeys as vectors for human gene therapy. Proc Natl Acad Sci U S A 99:11854-11859, 2002)を用いて肝臓組織を主にターゲティングする、動物モデルにおいて成功している。本発明者らは、遺伝子治療が、超音波標的マイクロバブル破壊(UTMD)を用いて膵島を標的とすることができることを以前に実証している(Gao G, Vandenberghe LH, Alvira MR, Lu Y, Calcedo R, Zhou X, Wilson JM: Clades of Adeno-associated viruses are widely disseminated in human tissues. J Virol 78:6381-6388, 2004)。プラスミドDNAを保有する静脈内マイクロバブルは、超音波により膵臓微小循環において破壊され、ラットインスリン−Iプロモーターを用いることにより、ベータ細胞をさらに標的とすることができる局所的遺伝子発現を達成する。UTMDは、ラットにおけるストレプトゾトシン(STZ)誘発性の糖尿病においてベータセルリン及びPDX1を送達するために使用されており、膵腺房細胞をインスリン産生細胞に再プログラム化することにより、15日までの間に糖尿病を回復させる(Wang Z, Ma HI, Li J, Sun L, Zhang J, Xiao X: Rapid and highly efficient transduction by double-stranded adeno-associated virus vectors in vitro and in vivo. Gene Ther 10:2105-2111, 2003)。本発明は、NeuroD1をコードするプラスミドを用いて膵島を再生するためにUTMDを使用し、30日までの間で血糖、インスリン、及びC−ペプチドを正常化する。
ラットインスリンプロモーター及びプラスミド構築物。Sprague-DawleyラットゲノムDNAを、製造業者の指示書に従ってQIAamp Blood kit(Qiagen Inc社製、Valencia、CA)を用いてラットの末梢血から抽出した。ラットインスリン遺伝子1プロモーター断片(−412〜+165)を、PCRを使用してSDラットゲノムDNAから増幅させた。得られたDNA断片を、pDsRed1−1レポーターベクター(Clonetech社製、CA)内でサブクローニングした。hMafA cDNA及びハムスターNkx6.1 cDNAは、ミシガン州立大学のOlson研究室及びデューク大学医療センターのNewgard研究室から提供され/誠意をもって贈られた。ラットNgn3、NeuroD1、Pax4、及びNkx2.2 cDNAは、製造業者の指示書に従って、それらの全RNAから逆転写させた、Sprague-Dawleyの新生児のラットの膵臓cDNAプールからのPCR産物であった。新生児のラットの膵臓試料を液体窒素中で急速冷凍し、−86℃に保存した。凍結した試料を1mlのRNA−STAT溶液中で解凍し、30秒間10,000rpmにてポリトロンホモジナイザーを使用してすぐにホモジナイズした。全RNA(30ng)を、オリゴ(dT)を用いるSensiscript RT kit(Qiagen Inc社製、Valencia、CA)を使用することにより20μl中で逆転写した(Chao, C.S., Loomis, Z. L., Lee, J. E., & Sussel, L. Genetic identification of a novel NeuroD1 function in the early differentiation of islet alpha, PP and epsilon cells. Dev. Biol. 312, 523-532 (2007))。反応混合物を、42℃にて50分間インキュベートし、続いてさらに70℃にて15分間インキュベートした。PCRを、2μlのcDNA、25μlのHotStarTaq Master Mix(Qiagen Inc社製、Valencia、CA)、及び20pmolの各プライマーを含有する50μlの体積中でGeneAmp PCR System 9700(PE ABI社製、Foster City、CA、USA)を使用して全ての試料について実施した。対応するPCR産物を、アガロースゲル電気泳動により確認し、QIAquick Gel Extraction kit(Qiagen Inc社製、Valencia、CA)により精製した。配列を確認するために、PCR産物の直接配列決定を、ABI 3100 Genomic AnalyzerでdRhodamine Terminator Cycle Sequencing Kit(Applied Biosystems社製、Foster City、CA)を用いて実施した。全ての転写因子遺伝子cDNAを、RIP3.1により駆動するベクターにサブクローニングした。プラスミド消化、ライゲーション、サブクローン、単離及び精製を、標準的な手段により実施し、人工変異が存在しないことを確認するために再度配列決定した。
動物における手順及びUTMD。全ての動物研究は、国立衛生研究所(NIH、National Institute of Health)の推奨及び動物実験委員会の承認に従って行った。オスのSprague-Dawleyラット(230〜270g)をケタミン(60mg/kg)及びキシラジン(5mg/kg)の腹腔内投与により麻酔し、左の腹部及び頸部の毛を剃り、ポリエチレンチューブ(PE50、Becton Dickinson社製、Franklin Lakes、TN、USA)を切開により右内頸静脈に挿入した。
45匹の全ラットに以下の9つの処理のうちの1つを行った:(1)未処理(正常な対照ラット、n=3)、(2)UTMDを行わずSTZ(60mg/kg/腹腔内、Sigma社製、St Louis、MO、USA)のみ(N=3)、(3)STZ及びDsRedを用いたUTMD(n=3)、(4)STZ及びngn3を用いたUTMD(n=6)、(5)STZ及びNeuroDを用いたUTMD(n=6)、(6)STZ及びPax4を用いたUTMD(n=6)、(7)STZ及びNkx2.2を用いたUTMD(n=6)、(8)STZ及びNkx6.1を用いたUTMD(n=6)、(9)STZ及びMafAを用いたUTMD(n=6)。全ての遺伝子をRIP3.1プロモーターの制御下のプラスミドcDNAとして送達した。血糖をSTZ注入の12時間後に測定した。250mg/dl以上の空腹時血糖を有する動物を成功した1型糖尿病モデルとみなし、続いてSTZ処理の48時間以内にUTMDを与えた。マイクロバブル又は対照溶液(0.5mlのリン酸緩衝生理食塩水(PBS、phosphate buffered solution)で希釈した0.5ml)を、ポンプ(Genie、Kent Scientific社製、Torrington、CT、USA)を介して10分間にわたり注入した。注入の間、市販の超音波振動子(S3、Sonos 5500、Philips Ultrasound社製、Bothell、WA、USA)を使用して、超音波を膵臓に当てた。プローブを適当な位置に固定した。次に、超音波を1.4のメカニカルインデクッスの超高調波モード(送信1.3MHz/受信3.6MHz)で適用した。R波のピーク後の45〜70msの遅延を用いた心電図により、4回の収縮末期毎に超音波のバーストを4回生じさせた。これらの設定は、この装置を用いたUTMDによるプラスミドの送達に最適であることが示されている(Chen, S., et al. Efficient gene delivery to pancreatic islets with ultrasonic microbubble destruction technology. Proc. Natl. Acad. Sci. U.S.A. 103, 8469-8474 (2006))。バブル破壊は、全てのラットにおいて視覚的に明らかであった。UTMDの後、頸静脈を結紮し、皮膚を縫合し、動物を回復させた。血液サンプルを、一晩12時間絶食させた後、ベースラインとして、並びに、処理の異なる日後に採取した。この手順を、過量のペントバルビタールナトリウム(120mg/kg)を使用して、10、20、及び30日目に屠殺したラットで3回繰り返した。膵臓、肝臓、脾臓、及び腎臓を組織学のために採取した。血糖値を、血糖試験紙(Precision、Abbott社製、Abbott Park、IL、USA)を用いて測定し、血中インスリン、C−ペプチドを、RIAキット(Linco Research社製、Radioimmunoassay、Billerica、MA、USA)を用いて測定した。
プラスミドを含有する、脂質で安定化させたマイクロバブルの製造。脂質で安定化させたマイクロバブルを、本発明者らの実験室において以前に記載したように調製した。簡潔に述べると、2.5mg/mlのDPPC(1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルコリン、Sigma社製、St.Louis、MO)、0.5mg/mlのDPPE(1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルエタノールアミン、Sigma社製、St.Louis、MO)、及び10%のグリセロールを、2:1の比で2mgのプラスミド溶液と混合した。このリン脂質−プラスミド溶液の0.5mlの一定分量を1.5mlの透明なバイアルに入れ、上部の残っている空間にペルフルオロプロパンガス(Air Products,Inc社製、Allentown、PA)を満たした。各バイアルを4℃で30分間インキュベートし、次いで歯科用混合器(Vialmix(商標)、Bristol-Myers Squibb Medical Imaging社製、N.Billerica、MA)によって30秒間、機械的に振動させた。脂質で安定化させたマイクロバブルは、未結合のプラスミドDNAを含有している液体の層の上部に浮遊している乳状の白色懸濁物として現れる。上層におけるマイクロバブルの平均直径及び濃度を、粒子計数器(Beckman Coulter Multisizer III)によって測定した。
免疫組織化学。厚さ5〜8μmのクリオスタット切片を、4℃で15分間、4%パラホルムアルデヒド中で固定し、PBS中の10mMのグリシンを用いて5分間反応を止めた。次いで切片をPBS中で3回すすぎ、PBS中の0.5%のTriton X-100で10分間透過処理した。切片を、10%ヤギ血清を用いて37℃で1時間ブロックし、PBSで3回洗浄した。一次抗体(1:500希釈のマウス抗インスリン抗体、1:500のウサギ抗グルカゴン、1:500のウサギ抗ソマトスタチン、1:500のウサギ抗膵臓ポリペプチド、1:500のウサギ抗NeuroD1、1:500のウサギ抗Ki−67、ウサギ抗BrDu(Sigma社製、St.Louis、MO)、1:2000希釈のマウス抗ck19(Chemicon社製、Temecula、CA)を加え、室温で2時間インキュベートした。5分間にわたりPBSで3回洗浄した後、二次抗体(Sigma社製、St;Louis、MO)である、FITC結合抗マウスIgG、Cy5結合抗ウサギIgG)(ブロック溶液中に1:500の希釈)を加え、室温で1時間インキュベートした。切片をPBSで10分間、5回すすぎ、その後載せた。
データ分析。Statviewソフトウェア(SAS社製、Cary、NC、USA)を用いてデータを分析した。結果は平均±1標準偏差で表す。差はフィッシャーのpost hoc検定を用いて反復測定ANOVAにより分析し、p<0.05で有意であるとみなした。
膵臓内分泌物の胎生発育は、種々の転写因子及び他のタンパク質をコードする、多くの遺伝子の活性化に関連している(Scharfman, R. Control of early development of the pancreas in rodents and humans: implications of signals from the mesenchyme. Diabetologia 43, 1083-1092 (2000)、Bouwens, L., & Rooman, I. Regulation of pancreatic beta-cell mass. Physiol. Rev. 85, 1255-1270 (2005))。新生児の内分泌発育と、糖尿病に罹患している成体動物における膵島再生との間に重要な相違があり得ると認識したので、本発明者らは、後者の膵島再生が、UTMDによって膵臓を標的とする遺伝子治療により、成し遂げられ得るか否かを評価することを試みた。Ngn3、NeuroD1、Pax4、Nkx2.2、Nkx6.1、及びMafAについてのcDNAをコードするプラスミドを、ラットインスリンプロモーター(RIP3.1)の切断型の制御下で構築した。これらの遺伝子を含有するマイクロバブルを、20分間にわたって静脈内に注入し、一方で、膵臓の微小循環におけるマイクロバブルを破壊するために超音波を使用した。UTMDを、STZ(60mg/kg)の腹腔内投与による糖尿病の誘導から48時間後に実施した。対照は、マーカー遺伝子(RIP3.1−DsRed)を有するUTMD、遺伝子治療を行わないSTZのみ、及びSTZを与えなかった正常な対照を含んだ。10日、20日、及び30日に屠殺した、3回の異なる反復実験を実施し、膵島の形態及び遺伝子発現を評価した。30日の研究の結果をここに論じ、図6〜8にまとめる。
図6は、FITCで標識した抗インスリン抗体(緑)及びCY5で標識した抗グルカゴン抗体(赤)で染色した代表的な組織学的試料を示す。これらの切片は、UTMDの30日後に屠殺したラットの群から得た。正常なラットは、膵島の周辺において少数のアルファ細胞(赤)により囲まれているベータ細胞(緑)の中心部を有する。STZの後、正常な膵島構造は実質的になくなり、たまたま孤立したベータ細胞又はベータ細胞の小さな塊が残っている。Ngn3、Pax4、Nkx2.2、Nkx6.1、及びMafAでの遺伝子治療により、膵島の一部の再生が生じたが、アルファ細胞が優勢である異常な膵島構造である。対照的に、NeuroD1での遺伝子治療により、ほぼ正常な形態を有する膵島の再生が生じた。興味深いことに、UTMD遺伝子治療群において抗インスリン及び抗グルカゴンで同時染色した少数の細胞が存在したが、正常な膵島では存在しなかった。この研究結果は、内分泌物増殖に関するマーカーであると以前に報告されている(Nir, T., Melton, D.A., & Dor, Y. Recovery from diabetes in mice by β cell regeneration. J. Clin. Invest. 117, 2553-2561 (2007))。正常なラットにおいて、STZ処理単独の後の3±2個のみと比較して、スライド当たり61±6個の膵島が存在した。NeuroD1は、スライド当たり37±4個の膵島を生じ、これは、正常な対照を除いて全ての他の群よりも高い、統計的に有意な数字であった(P<0.0001)。膵島当たりのベータ細胞の割合は、正常な対照において平均すると77±10%であり、NeuroD1遺伝子治療で処理したラットにおいて60±6%であった。全ての他の群は、膵島当たり著しく減少した数のベータ細胞を有した。ベータ細胞の割合は、全ての他の遺伝子及び対照より、NeuroD1で処理したラットに関して統計的に有意に高かった(P<0.0001)が、正常な対照未満であった(P=0.0006)。加えて、この図に示した切片と隣接する切片を抗ソマトスタチン及び抗ポリペプチドで染色して、デルタ細胞及びポリペプチド細胞の存在をそれぞれ評価した(データは示さず)。NeuroD1は、正常な対照と同様に、膵島の中心部において相当数のデルタ細胞及びポリペプチド細胞を生じた。他の転写因子は、膵島内にデルタ細胞又はポリペプチド細胞をそう多くは生じなかった。
図7は、血糖(上左図)、インスリン(下左図)、及びC−ペプチド(上右図)の血中濃度を、STZの3日後、及びSTZの30日後をベースラインとして示す。血糖は、STZ(約400mg/dl)で処理した全てのラットにおいて3日目までに劇的に増加し、NeuroD1で処理したラットを除いて30日目に増加したままであった。30日目に、血糖は、NeuroD1で処理したラットにおいて101±11mg/dlであり、これは、正常な対照からのものを除く、全ての他のSTZで処理した群より、統計的に有意に低かった(P<0.0001)。より短期間の実験において、血糖はまた、NeuroD1で処理したラットにおいて10日目及び20日目にも正常であった。図7の中央及び下の図は、インスリン及びC−ペプチドレベルが、全てのSTZで処理したラットにおいて3日目に著しく低下したことを示す。30日までに、インスリン及びC−ペプチドレベルは、NeuroD1で処理したラットにおいてほぼ正常であり、これは、3日目又は全ての他のSTZで処理した群より、統計的に有意に高い(P<0.0001)。これらのインスリン及びC−ペプチドレベルがグルコース応答性であるか否かを決定するために、別の群の6匹のNeuroD1で処理したラット及び対照(3匹は正常、3匹はSTZ−DsRed)に、UTMDの30日後、耐糖能試験を行った。図7の下右図に示すように、NeuroD1で処理したラットは、正常な対照とほぼ同一の耐糖能試験を有した。
図8は、細胞増殖を表す、BrdU(上左)及びKi67(上中央)染色の結果を示す。それらは、NeuroD1で処理したラット由来の単一の膵島の高倍率画像である。BrdU(赤、上左図)及びKi67(赤、上中央図)で染色した核は、インスリン陽性(緑)細胞に存在する。正常、及びSTZで処理した対照群と比較すると、BrdU及びKi67陽性細胞の両方は、それぞれ、インスリン陽性細胞の30±2%及び10±2%で統計的に有意であり、より多かった(p<0.0001)。正常対照は、BrdU染色の形跡を有さず、Ki67について陽性である稀少な細胞のみであった。下図は、CK19(緑、一番左の図)、インスリン(赤、左中央図)、ニューロゲニン3(青、右中央図)、及び合わせた画像(一番右の図)についての免疫蛍光染色を示す。CK19、導管細胞マーカーと、インスリン又はニューロゲニン3との共局在化は存在しないが、後者の2つのマーカーは、膵島中心のベータ細胞内に共局在化する。これは、膵島再生が導管細胞に由来しないようであることを示している。
この研究は、STZで処理したラットの膵臓を標的とするNeuroD1のインビボでの送達により、グルコース、インスリン、及びC−ペプチドの正常な血中レベルを回復する、ほぼ正常に現れる膵島の再生が生じることを示す。UTMD法は、膵島にとって正常な環境である、膵臓への遺伝子送達の非侵襲性標的を可能にする。UTMDによってプラスミドとして送達されるレポーター遺伝子のピーク発現は4日であり、その後急速に分解する(Chen, S., et al. Efficient gene delivery to pancreatic islets with ultrasonic microbubble destruction technology. Proc. Natl. Acad. Sci. U.S.A. 103, 8469-8474 (2006))。したがって、この方法による一過性遺伝子発現は膵島再生を誘発でき、一方で、理論的に、外来遺伝子治療の長期の発現に関連する可能性がある腫瘍形成の危険性を最小化する。
NeuroD1は、膵臓、腸、及び中枢神経系に見出される、基本的なヘリックス−ループ−ヘリックス転写因子である(Naya, F. J., Stellrecht, C.M., & Tsai, M. J. Tissue-specific regulation of the insulin gene by a novel basic helix-loop-helix transcription factor. Genes Dev. 9,1009-1019 (1995))。NeuroD1は膵芽発生時に存在し、全ての成熟膵島細胞型において検出可能であり続ける。NeuroD1ノックアウトマウスにおいて、全ての内分泌細胞型が発生するが、膵島の数は少なく、ベータ細胞アポトーシスが増加している(Naya F. J., et al. Diabetes, defective pancreatic morphogenesis, and abnormal enteroendocrine differentiation in BETA2/neuroD-deficient mice. Genes Dev. 11, 2323-2334 (1997))。NeuroD1は早期分化に必須ではないが、ベータ細胞の後期分化及び維持、並びに細胞運命決定に重要な役割を果たすと考えられている(Dhawan, S., Georgia, S., & Bhushan, A. Formation and regeneration of the endocrine pancreas. Curr. Opin. Cell Biol. 19, 634-645 (2007)、Chao, C.S., Loomis, Z. L., Lee, J. E., & Sussel, L. Genetic identification of a novel NeuroD1 function in the early differentiation of islet alpha, PP and epsilon cells. Dev. Biol. 312, 523-532 (2007))。トランスジェニックマウスでの研究に主に基づいているが、内分泌物発生におけるNeuroD1の役割のこの見解は、本研究における複数の細胞型を含む膵島の膵島再生の観察された研究結果と一致する。
他の転写因子、特に、Ngn3、Pax4、Nkx2.2、Nkx6.1、及びMafAもまた、膵島再生を生じるが、その膵島は主にアルファ細胞から構成され、血糖、インスリン、及びC−ペプチドは正常化しなかった。興味深いことに、Pdx1プロモーターの調節下でNgn3を発現するトランスジェニックマウスは、Ngn3のインビボ送達後の本発明者らの研究結果と同様の、大部分のグルカゴン陽性細胞を示す(Apelqvist, A., et al. Notch signalling controls pancreatic cell differentiation. Nature 400, 877-881 (1999))。Ngn3がニワトリの腸を発生する際に過剰発現する場合、Ngn3はまた、主にアルファ細胞を産生する(Grapin-Botton, A., Majithia, A.R., & Melton, D.A. Key evenrs of pancreas formation are triggered in gut endoderm by ectopic expression of pancreatic regulatory genes. Genes Dev. 15, 444-454 (2001))。糖尿病を罹患している成体の動物に対して外部から送達される場合、これらの転写因子の役割は、胎生発育におけるそれらの転写因子の役割とは異なり得る。膵臓発生又は細胞周期に関与する転写因子遺伝子又は他の遺伝子の様々な組合せにより、この研究において観察されたものより、さらにより強力な膵島再生を生じさせることも可能である。例えば、Chen, et alは、腺房細胞によるインスリン産生が、インビボで送達されるベータセルリン及びPdx1プラスミドを組み合わせることにより、STZで処理したラットにおいて誘発でき、正常な血糖及びインスリンを15日までの間に回復させることを示した(Wang Z, Ma HI, Li J, Sun L, Zhang J, Xiao X: Rapid and highly efficient transduction by double-stranded adeno-associated virus vectors in vitro and in vivo. Gene Ther 10:2105-2111, 2003)。より最近、Zhou, et alは、免疫不全マウスの膵臓へのアデノウイルスの直接注入によって送達される、Ngn3、MafA、及びPdx1の組合せが、ベータ細胞表現型に対する外分泌細胞の再プログラミングを生じることを報告している(Zhou, Q., Brown, J., Kanarek, A., Rajagopal, J., & Melton, D.A. In vivo reprogramming of adult pancreatic exocrine cells to β−cells. Nature [epub ahead of print] (2008))。それらの新しいベータ細胞は、膵島内で凝集するというよりむしろ、単一細胞又は少数の細胞のみの小さな塊内で分離していた。血糖、インスリン、及びC−ペプチドは改善されたが、正常なレベルには回復しなかった。単一の転写因子が送達される場合、新しいベータ細胞は有意な数で見られなかった。本研究は少なくとも2つの潜在的に重要な点で異なる。第1に、非ウイルス遺伝子送達法を、直接注入と異なり、膵臓全体を標的とするように使用した。第2に、ベータ細胞特異的プロモーターを、膵臓内分泌物を標的とするように使用した。一般的に使用されるCMVプロモーターは、外分泌物に非常に効果的であるが、膵臓内分泌物に効果的ではない(Zhan, Y., Brady, J.L., Johnston, A.M., & Lew, A.M. Predominate transgene expression in exocrine pancreas directed by the CMV promoter. D.N.A Cell Biol. 19, 639-645 (2000))。同様に、アデノウイルスは、膵臓内分泌物より、外分泌物においてより強力である(Wang, A.Y., Peng, P.D., Ehrhardt, A., Storm, T.A., & Kay, M.A. Comparison of adenoviral and adeno-associated viral vectors for pancreatic gene delivery in vivo. Hum. Gene Ther. 15,405-413 (2004))。
図9は、組み合わせて処理した場合のサイクリンD2、CDK4、及びGLP1の組合せを含むUTMD組成物で処理した安定な膵島の画像を示す(膵島は180日まで安定であった)。上左図は、UTMDで処理されていない正常な対照ラット由来の代表的な膵島を示す。インスリンを発現するベータ細胞の高密度の膵島の中心部が、グルカゴンを発現する周辺アルファ細胞(赤)の小さな被膜によって囲まれて存在している(緑)。上右図は、STZにより誘発された糖尿病後の代表的な膵島残部を示す。少数の拍動細胞のみが存在している。下左図は、GLP1遺伝子を用いるUTMD後の膵島再生の例を示す。正常より少ない膵島が、いくつかのベータ細胞(緑)及びアルファ細胞(赤)とともに存在しているが、構造は正常ではない。単一の遺伝子、サイクリンD2、CDK4、及びCDK6を使用するUTMDで処理したラットに関して、同様の研究結果が提示された(示さず)。下右図は、サイクリンD2、CDK4、及びGLP1の組合せを用いるUTMD後のほぼ正常な膵島を示す(それらの膵島は180日まで安定であり、正常な血糖、インスリン及びC−ペプチドレベルを有する糖尿病の回復を伴った)。
図10は、UTMD遺伝子治療で処理したラット、並びに正常な対照、及びUTMD処理を行わないSTZ糖尿病ラットの様々な群における膵島の経時的な血糖レベルを示すプロットである。示され得るように、サイクリンD2、CDK4、CDK6、又はGLP1での単一の遺伝子治療は血糖の正常化を生じなかった。しかし、この特定の実験において、サイクリンD2、CDK4、及びGLP1、又はサイクリンD2、CDK4、CDK6、及びGLP1の組合せを含む組成物は、4週間で血糖を正常なレベルまで回復させた。別の群の動物の長期間の研究により、180日までの効果持続期間が確認された。
膵島再生は、種々の遺伝子を肝臓に送達するためにアデノウイルスを使用することによって、STZにより媒介される糖尿病において成し遂げられ、結果として正常な血糖の回復が生じる(Ferber, S., et al. Pancreatic and duodenal homeobox gene 1 induces expression of insulin genes in liver and ameliorates streptozotocin-induced hyperglycemia. Nat. Med. 6, 568-572 (2000)、Kojima, H., et al. NeuroD-betacellulin gene therapy induces islet neogenesis in the liver and reverses diabetes in mice. Nat. Med. 9, 596-603 (2003)、Kaneto, H., et al. PDX-1/VP16 fusion protein, together with NeuroD or Ngn3, markedly induces insulin gene transcription and ameliorates glucose tolerance. Diabetes 54, 1009-1022 (2005))。しかし、アデノウイルスは、安全性についての配慮のためにヒトの使用に適切ではない。肝臓は膵島再生及び膵島移植のために適切な臓器であるが、本発明は、比較的有効な臓器特異性を有する膵臓全体にプラスミドcDNAを送達するために超音波により媒介されるマイクロバブル破壊を使用する(Chen, S., et al. Efficient gene delivery to pancreatic islets with ultrasonic microbubble destruction technology. Proc. Natl. Acad. Sci. U.S.A. 103, 8469-8474 (2006)、Chen, S., et al. Reversal of streptozotocin-induced diabetes in rats by gene therapy with betacellulin and pancreatic duodenal homeobox-1. Gene Therapy 14, 1102-1110 (2007))。膵臓は膵島のための正常な生理学的環境であるため、膵臓を標的とすることは膵島再生及び維持に利点を与える。
再生した膵島は、STZによる処理で生存している散在しているベータ細胞の複製を示し得る。Ck19、導管細胞マーカーを用いる免疫組織化学的染色は、再生した膵島において有意な摂取を全く示さなかった。STZ処理の後すぐに、又はSTZ処理の後48時間以内に遺伝子送達が施された場合、膵島再生が発生するように見えた。STZから7日後に遺伝子送達を用いる実験を繰り返した場合、その期間において、STZ対照ラットにおいて実質的にインスリン染色細胞は見られず、膵島再生は見られず、重症高血糖及び体重損失が進行した。強力なベータ細胞特異性であり(Chen, S., et al. Efficient gene delivery to pancreatic islets with ultrasonic microbubble destruction technology. Proc. Natl. Acad. Sci. U.S.A. 103, 8469-8474 (2006))、膵臓内分泌物において十分な活性を有さないと予想される、ラットインスリンIプロモーターの修飾を使用した。これらの検討は、ベータ細胞複製がベータ細胞塊を増加させるための主な機構である、一般的見解と一致する(Nir, T., Melton, D.A., & Dor, Y. Recovery from diabetes in mice by β cell regeneration. J. Clin. Invest. 117, 2553-2561 (2007)、Dor, Y., Brown, J., Martinez, O.I., & Melton, D.A. Adult pancreatic beta-cells are formed by self-duplication rather than stem cell differentiation. Nature 429, 41-46 (2004)、Teta, M., Rankin, M.M., Long, S.Y., Stein, G.M., & Kushner, J.A. Growth and regeneration of adult β cells does not involve specialized progenitors. Dev. Cell 12, 817-826 (2007))。ベータ細胞特異的プロモーターの制御下での種々の転写因子を用いる生存ベータ細胞の刺激により、相当数のアルファ細胞、デルタ細胞、及びポリペプチド細胞が生じることは興味深い。このことは、これらの転写因子、特にNeuroD1が、膵島内で増殖し、凝集するためにベータ細胞を誘発するだけでなく、同様に他の膵島細胞型も形成することを示唆している。このことが発生する機構はまだ解明されていない。
糖尿病患者において膵島再生を促進するために遺伝子治療を使用する概念は妥当と思われる。Meier, et alは、長期にわたるI型糖尿病を罹患している成人由来の剖検標本の88%が、相当数のベータ細胞、並びにベータ細胞アポトーシス及びTリンパ球浸潤を有することを示した(Meier, J.J., Bhushan, A., Butler, A.E., Rizza, R.A., Butler, P.C. Sustained beta cell apoptosis in patients with long-standing type I diabetes: indirect evidence for islet regeneration? Diabetologia 48, 2221-2228 (2005))。したがって、存在しているベータ細胞は、単独で、又は他の転写因子と組み合わせてNeuroD1を用いる再生遺伝子治療についての潜在的な標的である。しかしながら、膵島を再生するための任意の戦略はまた、アポトーシス、炎症、又は自己免疫による新しい膵島の潜在的な破壊も考慮に入れなければならないだろう。アポトーシス(Dror, V., et al. Notch signaling suppresses apoptosis in adult human and mouse pancreatic islet cells. Diabetologia 50, 2504-2515 (2007)、Drucker, D.J. Glucagon-like peptide-1 and the islet beta-cell: augmentation of cell proliferation and inhibition of apoptosis. Endocrinology. 144, 5145-5148 (2003)、Noguchi, H., et al. Activation of c-Jun NH2-terminal kinase (JNK) pathway during islet transplantation and prevention of islet graft loss by intraportal injection of JNK inhibitor. Diabetologia 50, 612-619 (2007)、Lin, C.Y., Gurlo, T., Haataja, L., Hsueh, W.A., Butler, P.C. Activation of peroxisome proliferator-activated receptor-gamma by rosiglitazone protects human islet cells against human islet amyloid polypeptide toxicity by a phosphatidylinositol 3'-kinase-dependent pathway. J. Clin. Endocrinol. Metab. 90, 6678-6686 (2005))、及び/又は自己免疫反応を阻害する遺伝子又は薬物と、再生遺伝子とを組み合わせることも可能である。後者の自己免疫反応を阻害する遺伝子又は薬物に関して、最近の証拠により、タクロリムス及びシロリムスがベータ細胞に対する毒性作用に関与する可能性があることが示唆されている(Nir, T., Melton, D.A., & Dor, Y. Recovery from diabetes in mice by β cell regeneration. J. Clin. Invest. 117, 2553-2561 (2007))。最適な免疫抑制療法は、患者の必要性及び(もしあれば)免疫応答に基づいて確立されている。最後に、齧歯動物とヒトの膵島の生態との重要な相違が存在する(Butler, P.C., Meier, J.J., Butler, A.E., & Bhushan A. The replication of β cells in normal physiology, in disease, and for therapy. Nat. Clin. Pract. Endocrinol. Metab. 3, 758-768 (2007))ので、これらの研究結果は、ヒトでの試験が意図され得る前に、高等動物において確認する必要がある。
本明細書で論じられたいかなる実施形態も、本発明のいかなる方法、キット、試薬、又は組成物に関しても、実行することができ、逆も同様であることが企図される。さらに、本発明の組成物は、本発明の方法を達成するために用いることができる。
本明細書に記載された特定の実施形態は、例証として示されており、本発明の限定として示されるのではないことは、理解されるだろう。本発明の主な特徴は、本発明の範囲から逸脱することなく、様々な実施形態に用いることができる。当業者は、本明細書に記載された特定の手順の多数の等価物を認識し、又は日常的な実験だけを用いて確かめることができるであろう。そのような等価物は、本発明の範囲内にあるとみなされ、特許請求の範囲によって網羅されている。
本明細書で言及された全ての刊行物及び特許出願は、本発明に関する当業者の技術のレベルを示している。全ての刊行物及び特許出願は、あたかもそれぞれ個々の刊行物又は特許出願が明確且つ個別に示されて参照により組み入れられているかのように、同じ程度で、参照により本明細書に組み入れられている。
特許請求の範囲及び/又は本明細書において用語「含むこと(comprising)」と共に用いられる場合の用語「1つの(a)」又は「1つの(an)」の使用は、「1つの(one)」を意味することができるが、それはまた、「1又は2以上」、「少なくとも1の」、及び「1又は1より多い」という意味と一致する。特許請求の範囲における用語「又は」の使用は、代替物のみを指す、又は代替物が相互排他的であることを明確に示されていない限り、「及び/又は」を意味するように用いられるが、本開示は、代替物のみを指す定義と「及び/又は」を指す定義を支持する。本出願を通して、用語「約」は、値が、装置、その値を決定するために用いられることになっている方法についての誤差の固有の変動、又は研究対象間に存在する変動を含むことを示すために用いられる。
本明細書及び特許請求の範囲に用いられる場合、用語「含むこと(comprising)」(及び「含む(comprise)」及び「含む(comprises)」などの含むこと(comprising)の任意の形)、「有すること(having)」(及び「有する(have)」及び「有する(has)」などの有すること(having)の任意の形)、「含むこと(including)」(及び「含む(includes)」及び「含む(include)」などの含むこと(including)の任意の形)、又は「含むこと(containing)」(及び「含む(contains)」及び「含む(contain)」などの含むこと(containing)の任意の形)は、包括的であり、又は限度を設定せず、追加の列挙されていない要素又は方法ステップを除外しない。
本明細書に用いられる場合、用語「又はそれらの組合せ」は、その用語の前にある列挙された項目の全ての順列及び組合せを指す。例えば、「A、B、C、又はそれらの組合せ」は、A、B、C、AB、AC、BC、又はABC、及び特定の状況において順序が重要である場合には、BA、CA、CB、CBA、BCA、ACB、BAC、又はCABもの少なくとも1つを含むことを意図される。この例に関して引き続き述べると、BB、AAA、MB、BBC、AAABCCCC、CBBAAA、CABABBなどの1又は2以上の項目又は用語の反復を含む組合せが明確に含まれる。当業者は、状況から他に明らかなことがない限り、典型的には、任意の組合せにおいて項目又は用語の数への制限はないことを理解しているだろう。
本明細書に開示及び主張された組成物及び/又は方法の全ては、本開示に照らせば、過度の実験なしに作製し、実行することができる。本発明の組成物及び方法は、好ましい実施形態に関して記載されているが、本明細書に記載された組成物及び/又は方法、及び方法のステップにおいて、又はステップの順序において、本発明の概念、精神、及び範囲から逸脱することなく、改変を適用することができることは、当業者にとって明らかである。当業者にとって明らかな全てのそのような類似した代替形態及び修正形態は、添付された特許請求の範囲によって定義される本発明の精神、範囲、及び概念内にあると考えられる。
(参考文献)
1. Newgard CB: While tinkering with the s-cell metabolic regulatory mechanisms and new therapeutic strategies: American Diabetes Association Lilly Lecture, 2001. Diabetes 51:3141-3150, 2002
2. Bonner-Weir, S. and Weir, G.C. New sources of pancreatic s-cells. Nat. Biotechnol. 23:857-861, 2005
3. Samson, SL, Chan L. Gene therapy for diabetes: reinventing the islet. Trends in endocrinology and metabolism 17:92-100, 2006
4. McClane SJ, Chirmule N, Burke CV, Raper SE: Characterization of the immune response after local delivery of recombinant adenovirus in murine pancreas and successful strategies for readministration. Human Gene Ther 8:2207-2216, 1997
5. Ayuso E, Chillon M, Agudo J, Haurigot V, Bosch A, Carretero A, Otaegui PJ, Bosch F: In vivo gene transfer to pancreatic beta cells by systemic delivery of adenoviral vectors. Human Gene Ther 15:805-812, 2004
6. Wang AY, Peng PD, Ehrhardt A, Storm TA, Kay MA: Comparison of adenoviral and adeno-associated viral vectors for pancreatic gene delivery in vivo. Human Gene Ther 15:405-413, 2004
7. Gao GP, Alvira MR, Wang L, Calcedo R, Johnston J, Wilson JM: Novel adeno-associated viruses from rhesus monkeys as vectors for human gene therapy. Proc Natl Acad Sci U S A 99:11854-11859, 2002
8. Gao G, Vandenberghe LH, Alvira MR, Lu Y, Calcedo R, Zhou X, Wilson JM: Clades of Adeno-associated viruses are widely disseminated in human tissues. J Virol 78:6381-6388, 2004
9. Wang Z, Ma HI, Li J, Sun L, Zhang J, Xiao X: Rapid and highly efficient transduction by double-stranded adeno-associated virus vectors in vitro and in vivo. Gene Ther 10:2105-2111, 2003
10. McCarty DM, Fu H, Monahan PE, Toulson CE, Naik P, Samulski RJ: Adeno-associated virus terminal repeat (TR) mutant generates self-complementary vectors to overcome the rate-limiting step to transduction in vivo. Gene Ther 10:2112-2118, 2003
インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及びストレプトゾトシン誘発性の糖尿病の回復
1. Bonner-Weir, S., & Wier, G.C. New sources of pancreatic β-cells. Nat. Biotechnol. 23, 857-861 (2005)
2. Butler, P.C., Meier, J.J., Butler, A.E., & Bhushan A. The replication of β cells in normal physiology, in disease, and for therapy. Nat. Clin. Pract. Endocrinol. Metab. 3, 758-768 (2007)
3. Shapiro, A.M., et al. International trial of the Edmonton protocol for islet transplantation. New Engl. J. Med. 355, 1318-1330 (2006)
4. Ferber, S., et al. Pancreatic and duodenal homeobox gene 1 induces expression of insulin genes in liver and ameliorates streptozotocin-induced hyperglycemia. Nat. Med. 6, 568-572 (2000)
5. Kojima, H., et al. NeuroD-betacellulin gene therapy induces islet neogenesis in the liver and reverses diabetes in mice. Nat. Med. 9, 596-603 (2003)
6. Kaneto, H., et al. PDX-1/VP16 fusion protein, together with NeuroD or Ngn3, markedly induces insulin gene transcription and ameliorates glucose tolerance. Diabetes 54, 1009-1022 (2005)
7. Wang, A. Y., Ehrhardt, A., Xu, H, & Kay, M.A. Adenovirus transduction is required for the correction of diabetes using Pdx-1 or Neurogenin-3 in the liver. Mol. Ther. 15, 255-263 (2007)
8. Chen, S., et al. Efficient gene delivery to pancreatic islets with ultrasonic microbubble destruction technology. Proc. Natl. Acad. Sci. U.S.A. 103, 8469-8474 (2006)
9. Chen, S., et al. Reversal of streptozotocin-induced diabetes in rats by gene therapy with betacellulin and pancreatic duodenal homeobox-1. Gene Therapy 14, 1102-1110 (2007)
10. Scharfman, R. Control of early development of the pancreas in rodents and humans: implications of signals from the mesenchyme. Diabetologia 43, 1083-1092 (2000)
11. Bouwens, L., & Rooman, I. Regulation of pancreatic beta-cell mass. Physiol. Rev. 85, 1255-1270 (2005)
12. Nir, T., Melton, D.A., & Dor, Y. Recovery from diabetes in mice by β cell regeneration. J. Clin. Invest. 117, 2553-2561 (2007)
13. Naya, F. J., Stellrecht, C.M., & Tsai, M. J. Tissue-specific regulation of the insulin gene by a novel basic helix-loop-helix transcription factor. Genes Dev. 9,1009-1019 (1995)
14. Naya F. J., et al. Diabetes, defective pancreatic morphogenesis, and abnormal enteroendocrine differentiation in BETA2/neuroD-deficient mice. Genes Dev. 11, 2323-2334 (1997)
15. Dhawan, S., Georgia, S., & Bhushan, A. Formation and regeneration of the endocrine pancreas. Curr. Opin. Cell Biol. 19, 634-645 (2007)
16. Chao, C.S., Loomis, Z. L., Lee, J. E., & Sussel, L. Genetic identification of a novel NeuroD1 function in the early differentiation of islet alpha, PP and epsilon cells. Dev. Biol. 312, 523-532 (2007)
17. Apelqvist, A., et al. Notch signalling controls pancreatic cell differentiation. Nature 400, 877-881 (1999)
18. Grapin-Botton, A., Majithia, A.R., & Melton, D.A. Key evenrs of pancreas formation are triggered in gut endoderm by ectopic expression of pancreatic regulatory genes. Genes Dev. 15, 444-454 (2001)
19. Zhou, Q., Brown, J., Kanarek, A., Rajagopal, J., & Melton, D.A. In vivo reprogramming of adult pancreatic exocrine cells to β−cells. Nature [epub ahead of print] (2008)
20. Zhan, Y., Brady, J.L., Johnston, A.M., & Lew, A.M. Predominate transgene expression in exocrine pancreas directed by the CMV promoter. D.N.A Cell Biol. 19, 639-645 (2000)
21. Wang, A.Y., Peng, P.D., Ehrhardt, A., Storm, T.A., & Kay, M.A. Comparison of adenoviral and adeno-associated viral vectors for pancreatic gene delivery in vivo. Hum. Gene Ther. 15,405-413 (2004)
22. Dor, Y., Brown, J., Martinez, O.I., & Melton, D.A. Adult pancreatic beta-cells are formed by self-duplication rather than stem cell differentiation. Nature 429, 41-46 (2004)
23. Teta, M., Rankin, M.M., Long, S.Y., Stein, G.M., & Kushner, J.A. Growth and regeneration of adult β cells does not involve specialized progenitors. Dev. Cell 12, 817-826 (2007)
24. Meier, J.J., Bhushan, A., Butler, A.E., Rizza, R.A., Butler, P.C. Sustained beta cell apoptosis in patients with long-standing type I diabetes: indirect evidence for islet regeneration? Diabetologia 48, 2221-2228 (2005)
25. Dror, V., et al. Notch signaling suppresses apoptosis in adult human and mouse pancreatic islet cells. Diabetologia 50, 2504-2515 (2007)
26. Drucker, D.J. Glucagon-like peptide-1 and the islet beta-cell: augmentation of cell proliferation and inhibition of apoptosis. Endocrinology. 144, 5145-5148 (2003)
27. Noguchi, H., et al. Activation of c-Jun NH2-terminal kinase (JNK) pathway during islet transplantation and prevention of islet graft loss by intraportal injection of JNK inhibitor. Diabetologia 50, 612-619 (2007)
28. Lin, C.Y., Gurlo, T., Haataja, L., Hsueh, W.A., Butler, P.C. Activation of peroxisome proliferator-activated receptor-gamma by rosiglitazone protects human islet cells against human islet amyloid polypeptide toxicity by a phosphatidylinositol 3'-kinase-dependent pathway. J. Clin. Endocrinol. Metab. 90, 6678-6686 (2005)

Claims (43)

  1. 膵臓内での超音波標的マイクロバブル破壊のための組成物であって、
    予め構築されたリポソーム−核酸マイクロバブル複合体を含み、前記予め構築されたリポソーム−核酸複合体が、インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含むインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む、前記インスリンプロモーターの制御下のNeuroD遺伝子を含み、膵臓内の標的部位において前記マイクロバブルが破壊することにより膵臓細胞内の超音波破壊位置に前記核酸が送達され、前記核酸を組み込んだ細胞が高血糖レベルに応答してインスリンを発現する組成物。
  2. NeuroD遺伝子から上流のインスリン開始部位の上流の領域の連続する50塩基を含む調節可能なインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子をさらに含む、請求項1に記載の組成物。
  3. ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子から選択される1又は2以上の遺伝子をさらに含む、請求項1に記載の組成物。
  4. 組成物と同時投与される、抗アポトーシス剤、抗炎症剤、JNK阻害剤、GLP−1、タクロリムス、シロリムス、アナキンラ、Dervinポリアミド又はそれらの組合せから選択される薬剤をさらに含む、請求項1に記載の組成物。
  5. 膵臓内での超音波標的マイクロバブル破壊を用いて膵臓ベータ細胞を再生するための組成物であって、
    NeuroDを含むマイクロバブルを含み、前記マイクロバブルが、膵臓内での超音波破壊によって前記NeuroDを放出する脂質を含む組成物。
  6. NeuroDが組換えNeuroDである、請求項5に記載の組成物。
  7. NeuroDが、CUBI、RIP2.1、RIP3.1又はHIP3.1プロモーターの制御下のNeuroD遺伝子を含み、前記NeuroDが、超音波標的マイクロバブル破壊による発現を標的とされている細胞中で発現する、請求項5に記載の組成物。
  8. 糖尿病患者においてインビボ及びインサイチュでインスリン応答性細胞を再生する方法であって、
    有効量のNeuroDを膵臓に送達するステップを含み、膵臓内の細胞が、血液中の高グルコースレベルに応答して前記細胞にインスリンを分泌させる方法。
  9. 膵臓細胞内の有効量のNeuroDが、NeuroD遺伝子を発現する外因性核酸セグメントを送達することを含む、請求項8に記載の方法。
  10. NeuroDが、超音波標的マイクロバブル破壊により膵臓に送達される、請求項8に記載の方法。
  11. 膵臓細胞内の有効量のNeuroDが、CUBI、RIP2.1、RIP3.1又はHIP3.1プロモーターの制御下でNeuroD遺伝子を発現する外因性核酸セグメントを送達することを含む、請求項8に記載の方法。
  12. CUBI、RIP2.1、RIP3.1又はHIP3.1プロモーターから選択されるインスリン応答性プロモーターの制御下のNeuroD遺伝子を含む核酸セグメントを作製するステップと、
    前記核酸セグメントをマイクロバブルに導入するステップと、
    患者に前記マイクロバブルを注入するステップと、
    前記核酸セグメントを膵臓細胞内に送達するステップと、
    インスリン応答性調節遺伝子を発現するのに有効な条件下に標的細胞を維持するステップとを含む、標的細胞をインスリン応答性にする方法であって、
    前記標的細胞内での前記NeuroDの発現により前記細胞が高血糖に応答する方法。
  13. プロモーターの制御下の、PDX1、Nkx2.2、Nkx6.1、PAX4、MafA、ngn3、GLP1、サイクリンD2、CDK4及びそれらの組合せから選択される1又は2以上の遺伝子をさらに含む、請求項12に記載の方法。
  14. 組成物と同時投与される、抗アポトーシス剤、抗炎症剤、JNK阻害剤、GLP−1、タクロリムス、シロリムス、アナキンラ、Dervinポリアミド又はそれらの組合せから選択される薬剤をさらに含む、請求項12に記載の方法。
  15. マイクロバブルが、予め構築されたリポソーム−核酸複合体リポソームを含む、請求項12に記載の方法。
  16. マイクロバブルが、プラスミドと混合された、1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルコリン及び1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルエタノールアミングリセロールを含む予め構築されたリポソーム−核酸複合体リポソームを含む、請求項12に記載の方法。
  17. インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1、及びエクソン2を含むインスリンプロモーターのゲノム断片を含む高発現インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む単離された核酸セグメントを取得するステップと、
    前記核酸セグメントを標的細胞内に移入するステップと、
    前記インスリン応答性調節遺伝子を発現するのに有効な条件下に前記標的細胞を維持するステップとを含むインスリン応答性を回復させる方法であって、
    前記標的細胞内での前記インスリン応答性調節遺伝子の発現により前記細胞が高血糖に応答する方法。
  18. インスリン応答性細胞が動物内にある、請求項17に記載の方法。
  19. インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子が、ウイルス又はプラスミドベクター内にある、請求項17に記載の方法。
  20. インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子が、NeuroD、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、請求項17に記載の方法。
  21. インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1、及びエクソン2を含むインスリンプロモーターのゲノム断片を含むインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む単離された核酸セグメントを取得するステップと、
    前記核酸セグメントを膵臓細胞内に移入するステップと、
    前記インスリン応答性調節遺伝子を発現するのに有効な条件下に標的細胞を維持するステップとを含むインスリン応答性を回復させる方法であって、
    前記標的細胞内での前記インスリン応答性調節遺伝子の発現により前記細胞が高血糖に応答する方法。
  22. インスリンプロモーター領域が、転写開始部位の上流の領域に配列番号1の連続する100〜500塩基を含む、請求項21に記載の方法。
  23. インスリンプロモーター領域が、配列番号1における転写開始部位の上流の全領域を含む、請求項21に記載の方法。
  24. インスリンプロモーター領域が、配列番号2における転写開始部位の上流の全領域を含む、請求項21に記載の方法。
  25. 1又は2以上のインスリン応答性遺伝子から上流のインスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含むインスリンプロモーター領域を含む単離された核酸。
  26. マイクロバブルと接触する予め構築されたリポソーム−核酸複合体を含む膵臓内での超音波標的マイクロバブル破壊のための組成物であって、
    前記予め構築されたリポソーム−核酸複合体が、インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含む、高発現の調節可能なインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含み、膵臓内での標的部位において前記マイクロバブルが超音波で破壊することにより膵臓細胞内の超音波破壊位置に前記核酸が送達される組成物。
  27. 予め構築されたリポソーム−核酸複合体が、カチオン性脂質、アニオン性脂質又はそれらの混合物及び組合せを含む、請求項26に記載の組成物。
  28. マイクロバブルが、薬学的に許容される媒体内に配置される、請求項26に記載の組成物。
  29. 活性作用因子である核酸が、インスリン遺伝子を含む、請求項26に記載の組成物。
  30. 活性作用因子である核酸が、プロモーターの制御下のヘキソキナーゼ遺伝子を含む核酸ベクターを含む、請求項26に記載の組成物。
  31. 活性作用因子である核酸が、プロモーターの制御下のNeuroD遺伝子を含む核酸ベクターを含む、請求項26に記載の組成物。
  32. 予め構築されたリポソーム−核酸複合体リポソームが、プラスミドと混合された、1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルコリン及び1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルエタノールアミングリセロールを含む、請求項26に記載の組成物。
  33. コーティングをさらに含む、請求項26に記載の組成物。
  34. NeuroD、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子をさらに含む、請求項26に記載の組成物。
  35. インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含むインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む、プロモーターの制御下のヘキソキナーゼ遺伝子を含むベクター。
  36. ヘキソキナーゼ遺伝子が、プロモーターの制御下のNeuroD遺伝子を含む核酸ベクターを含む、請求項35に記載のベクター。
  37. ヘキソキナーゼ遺伝子が、プロモーターの制御下のGLP−1(7〜37)遺伝子を含む核酸ベクターを含む、請求項35に記載のベクター。
  38. ヘキソキナーゼ遺伝子が、プロモーターの制御下のサイクリンD2遺伝子を含む核酸ベクターを含む、請求項35に記載のベクター。
  39. 予め構築されたリポソーム−核酸複合体リポソームが、プラスミドと混合された、1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルコリン及び1,2−ジパルミトイル−sn−グリセロ−3−ホスファチジルエタノールアミングリセロールを含む、請求項35に記載のベクター。
  40. NeuroD、ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、プロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子をさらに含む、請求項35に記載のベクター。
  41. 予め構築されたリポソーム−核酸マイクロバブル複合体を細胞内に注入するステップを含む方法によってインスリン応答性にされた細胞であって、前記予め構築されたリポソーム−核酸複合体が、インスリン遺伝子の5’非翻訳領域、エクソン1、イントロン1及びエクソン2を含むインスリンプロモーターのゲノム断片を含むインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子を含む、インスリンプロモーターの制御下のNeuroD遺伝子を含み、膵臓内での標的部位において前記マイクロバブルが破壊することにより膵臓細胞内の超音波破壊位置に前記核酸が送達され、前記核酸を組み込んだ細胞が高血糖レベルに応答してインスリンを発現する細胞。
  42. NeuroD遺伝子から上流のインスリン開始部位の上流の領域の連続する50塩基を含む調節可能なインスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子をさらに含む、請求項41に記載の細胞。
  43. ngn3、GLP1、PDX1、Mafa、ベータセルリン、Nkx2.2、Nkx6.1、PAX4、Isl1、サイクリンD2(及びサイクリンファミリーの他のメンバー)、CDK4(及びサイクリン依存性キナーゼファミリーの他のメンバー)、及びサイクリン依存性キナーゼ阻害因子(例えばp16及びINK4ファミリーの他のメンバー又はp27及びCIP/KIPファミリーの他のメンバー)に対するsiRNAから選択される、インスリンプロモーター領域に作動可能に連結した1又は2以上のインスリン応答性調節遺伝子から選択される1又は2以上の遺伝子をさらに含む、請求項41に記載の細胞。
JP2011536538A 2008-11-13 2009-11-13 インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復 Pending JP2012508585A (ja)

Applications Claiming Priority (3)

Application Number Priority Date Filing Date Title
US11440708P 2008-11-13 2008-11-13
US61/114,407 2008-11-13
PCT/US2009/064467 WO2010057045A2 (en) 2008-11-13 2009-11-13 Regeneration of pancreatic islets and reversal of diabetes by islet transcription factor genes delivered in vivo

Related Child Applications (1)

Application Number Title Priority Date Filing Date
JP2014053116A Division JP5813161B2 (ja) 2008-11-13 2014-03-17 インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復

Publications (1)

Publication Number Publication Date
JP2012508585A true JP2012508585A (ja) 2012-04-12

Family

ID=42170747

Family Applications (2)

Application Number Title Priority Date Filing Date
JP2011536538A Pending JP2012508585A (ja) 2008-11-13 2009-11-13 インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復
JP2014053116A Expired - Fee Related JP5813161B2 (ja) 2008-11-13 2014-03-17 インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復

Family Applications After (1)

Application Number Title Priority Date Filing Date
JP2014053116A Expired - Fee Related JP5813161B2 (ja) 2008-11-13 2014-03-17 インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復

Country Status (14)

Country Link
US (2) US20110287086A1 (ja)
EP (1) EP2350297A4 (ja)
JP (2) JP2012508585A (ja)
KR (1) KR101305931B1 (ja)
CN (1) CN102282263B (ja)
AR (1) AR076445A1 (ja)
AU (1) AU2009313875B2 (ja)
BR (1) BRPI0922030A2 (ja)
CA (1) CA2743668A1 (ja)
IL (1) IL212881A0 (ja)
MX (1) MX2011005047A (ja)
NZ (3) NZ595273A (ja)
TW (1) TW201029669A (ja)
WO (1) WO2010057045A2 (ja)

Cited By (1)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
JP2023531793A (ja) * 2020-06-29 2023-07-25 ザ・トラスティーズ・オブ・インディアナ・ユニバーシティー インスリン生成機能および送達機能を有するように皮膚組織をリプログラミングするための組成物および方法

Families Citing this family (9)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
US20120093914A1 (en) * 2008-11-24 2012-04-19 Moma Therapeutics Implantable liposome embedded matrix composition, uses thereof, and polycaprolactone particles as scaffolds for tissue regeneration
WO2011094352A1 (en) * 2010-01-27 2011-08-04 Baylor Research Institute In-vivo non-viral gene delivery of human vascular endothelial growth factor following islet transplantation
AR080806A1 (es) * 2010-03-24 2012-05-09 Baylor Res Inst Expresion del gen neurod1 en celulas epiteliales pancreaticas no endocrinas (nepec)
CA2817191A1 (en) 2010-10-08 2012-04-12 Pal Saetrom Short rna molecules
GB201205158D0 (en) 2012-03-23 2012-05-09 Univ Leeds Apparatus and method for manipulating entrained particles
US10028902B2 (en) 2013-11-08 2018-07-24 Baylor Research Institute Nuclear localization of GLP-1 stimulates myocardial regeneration and reverses heart failure
SI3071696T1 (sl) 2013-11-22 2019-11-29 Mina Therapeutics Ltd C/EBP alfa kratko delujoči RNA sestavki in postopki uporabe
JP7594298B2 (ja) * 2018-08-01 2024-12-04 オハイオ・ステイト・イノベーション・ファウンデーション 皮膚をインスリン産生組織にリプログラミングするための組成物および方法
CN113122538A (zh) * 2021-04-15 2021-07-16 遵义医科大学附属医院 一种靶向敲减Rip3基因表达的shRNA、重组载体及其应用

Citations (2)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
WO2007008220A2 (en) * 2004-08-05 2007-01-18 Baylor Research Institute Gene or drug delivery system
WO2008036953A2 (en) * 2006-09-22 2008-03-27 Baylor Research Institute In vivo transformation of pancreatic acinar cells into insulin-producing cells

Family Cites Families (4)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
US6911324B2 (en) * 2001-10-18 2005-06-28 The Regents Of The University Of California Induction of beta cell differentiation in human cells
US7141240B2 (en) * 2002-03-12 2006-11-28 Cedars-Sinai Medical Center Glucose-dependent insulin-secreting cells transfected with a nucleotide sequence encoding GLP-1
US20040132679A1 (en) * 2002-09-03 2004-07-08 Baylor College Of Medicine Induction of pancreatic islet formation
WO2007056423A1 (en) * 2005-11-07 2007-05-18 The General Hospital Corporation Methods and compositions for modulation of stem cell aging

Patent Citations (2)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
WO2007008220A2 (en) * 2004-08-05 2007-01-18 Baylor Research Institute Gene or drug delivery system
WO2008036953A2 (en) * 2006-09-22 2008-03-27 Baylor Research Institute In vivo transformation of pancreatic acinar cells into insulin-producing cells

Non-Patent Citations (6)

* Cited by examiner, † Cited by third party
Title
JPN6013045652; Mol. Cell. Biol., 25[9](2005) p.3752-3762 *
JPN6013045653; Diabetes, 53[1](2004) p.149-159 *
JPN6013045654; Gene Ther., 14[14](2007) p.1102-1110 *
JPN6013045659; Diabetes, 58[4](2009-Apr) p.882-893 *
JPN6013046017; J. Clin. Invest., 117[10](2007) p.2869-2876 *
JPN6013046019; J. Clin. Invest., 114[7](2004) p.963-968 *

Cited By (2)

* Cited by examiner, † Cited by third party
Publication number Priority date Publication date Assignee Title
JP2023531793A (ja) * 2020-06-29 2023-07-25 ザ・トラスティーズ・オブ・インディアナ・ユニバーシティー インスリン生成機能および送達機能を有するように皮膚組織をリプログラミングするための組成物および方法
JP7828084B2 (ja) 2020-06-29 2026-03-11 ザ・トラスティーズ・オブ・インディアナ・ユニバーシティー インスリン生成機能および送達機能を有するように皮膚組織をリプログラミングするための組成物および方法

Also Published As

Publication number Publication date
BRPI0922030A2 (pt) 2018-10-16
AU2009313875A1 (en) 2010-05-20
WO2010057045A8 (en) 2011-02-03
CA2743668A1 (en) 2010-05-20
KR20110086594A (ko) 2011-07-28
JP5813161B2 (ja) 2015-11-17
TW201029669A (en) 2010-08-16
WO2010057045A3 (en) 2010-09-16
MX2011005047A (es) 2011-07-29
NZ592821A (en) 2012-06-29
IL212881A0 (en) 2011-07-31
CN102282263A (zh) 2011-12-14
US20110287086A1 (en) 2011-11-24
NZ602474A (en) 2013-02-22
US20140294924A1 (en) 2014-10-02
AR076445A1 (es) 2011-06-15
WO2010057045A2 (en) 2010-05-20
JP2014168463A (ja) 2014-09-18
AU2009313875B2 (en) 2013-01-10
KR101305931B1 (ko) 2013-09-12
NZ595273A (en) 2012-10-26
CN102282263B (zh) 2015-02-11
EP2350297A2 (en) 2011-08-03
EP2350297A4 (en) 2012-05-09

Similar Documents

Publication Publication Date Title
JP5813161B2 (ja) インビボにおいて送達される膵島転写因子遺伝子による膵島の再生及び糖尿病の回復
US7374930B2 (en) GLP-1 gene delivery for the treatment of type 2 diabetes
WO2011094352A1 (en) In-vivo non-viral gene delivery of human vascular endothelial growth factor following islet transplantation
JP2009543580A (ja) 細胞の再プログラミング用組成物、及びその用途
WO2017024111A1 (en) Inhibitors of cacna1a/alpha1a subunit internal ribosomal entry site (ires) and methods of treating spinocerebellar ataxia type 6
AU2007299649B2 (en) In vivo transformation of pancreatic acinar cells into insulin-producing cells
KR20080036015A (ko) 글루코오스 유도성 인슐린 발현 및 당뇨병 치료 방법
US6673352B1 (en) Use of Mullerian inhibiting substance for treating excess androgen states
AU2013203474B2 (en) Regeneration of pancreatic islets and reversal of diabetes by islet transcription factor genes delivered in vivo
WO2007139120A1 (ja) アミロイドβクリアランス促進剤
WO2014191630A2 (en) Non-human animal model encoding a non-functional manf gene
US12616735B2 (en) Compositions and methods of controlling expression of thermogenin (UCP-1) in skeletal muscles
CA2384991A1 (en) Use of mullerian inhibiting substance for treating excess androgen states
US20120009244A1 (en) NEUROD1 GENE EXPRESSION IN NON-ENDOCRINE PANCREATIC EPITHELIAL CELLS (NEPECs)

Legal Events

Date Code Title Description
A131 Notification of reasons for refusal

Free format text: JAPANESE INTERMEDIATE CODE: A131

Effective date: 20130918

A601 Written request for extension of time

Free format text: JAPANESE INTERMEDIATE CODE: A601

Effective date: 20131212

A602 Written permission of extension of time

Free format text: JAPANESE INTERMEDIATE CODE: A602

Effective date: 20131219

A601 Written request for extension of time

Free format text: JAPANESE INTERMEDIATE CODE: A601

Effective date: 20140114

A602 Written permission of extension of time

Free format text: JAPANESE INTERMEDIATE CODE: A602

Effective date: 20140121

A601 Written request for extension of time

Free format text: JAPANESE INTERMEDIATE CODE: A601

Effective date: 20140212

A602 Written permission of extension of time

Free format text: JAPANESE INTERMEDIATE CODE: A602

Effective date: 20140219

A02 Decision of refusal

Free format text: JAPANESE INTERMEDIATE CODE: A02

Effective date: 20140603