JP2005509409A - 糖尿病および他の血糖疾患の治療方法 - Google Patents
糖尿病および他の血糖疾患の治療方法 Download PDFInfo
- Publication number
- JP2005509409A JP2005509409A JP2003519448A JP2003519448A JP2005509409A JP 2005509409 A JP2005509409 A JP 2005509409A JP 2003519448 A JP2003519448 A JP 2003519448A JP 2003519448 A JP2003519448 A JP 2003519448A JP 2005509409 A JP2005509409 A JP 2005509409A
- Authority
- JP
- Japan
- Prior art keywords
- glp
- seq
- nucleic acid
- precursor
- sequence
- Prior art date
- Legal status (The legal status is an assumption and is not a legal conclusion. Google has not performed a legal analysis and makes no representation as to the accuracy of the status listed.)
- Pending
Links
Images








Classifications
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K14/00—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof
- C07K14/435—Peptides having more than 20 amino acids; Gastrins; Somatostatins; Melanotropins; Derivatives thereof from animals; from humans
- C07K14/575—Hormones
- C07K14/605—Glucagons
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P3/00—Drugs for disorders of the metabolism
- A61P3/08—Drugs for disorders of the metabolism for glucose homeostasis
- A61P3/10—Drugs for disorders of the metabolism for glucose homeostasis for hyperglycaemia, e.g. antidiabetics
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P43/00—Drugs for specific purposes, not provided for in groups A61P1/00-A61P41/00
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61P—SPECIFIC THERAPEUTIC ACTIVITY OF CHEMICAL COMPOUNDS OR MEDICINAL PREPARATIONS
- A61P5/00—Drugs for disorders of the endocrine system
- A61P5/48—Drugs for disorders of the endocrine system of the pancreatic hormones
- A61P5/50—Drugs for disorders of the endocrine system of the pancreatic hormones for increasing or potentiating the activity of insulin
-
- A—HUMAN NECESSITIES
- A61—MEDICAL OR VETERINARY SCIENCE; HYGIENE
- A61K—PREPARATIONS FOR MEDICAL, DENTAL OR TOILETRY PURPOSES
- A61K38/00—Medicinal preparations containing peptides
-
- C—CHEMISTRY; METALLURGY
- C07—ORGANIC CHEMISTRY
- C07K—PEPTIDES
- C07K2319/00—Fusion polypeptide
- C07K2319/01—Fusion polypeptide containing a localisation/targetting motif
- C07K2319/02—Fusion polypeptide containing a localisation/targetting motif containing a signal sequence
Landscapes
- Health & Medical Sciences (AREA)
- Chemical & Material Sciences (AREA)
- Life Sciences & Earth Sciences (AREA)
- Organic Chemistry (AREA)
- Diabetes (AREA)
- Medicinal Chemistry (AREA)
- General Health & Medical Sciences (AREA)
- Endocrinology (AREA)
- Public Health (AREA)
- Pharmacology & Pharmacy (AREA)
- Nuclear Medicine, Radiotherapy & Molecular Imaging (AREA)
- Animal Behavior & Ethology (AREA)
- General Chemical & Material Sciences (AREA)
- Chemical Kinetics & Catalysis (AREA)
- Engineering & Computer Science (AREA)
- Veterinary Medicine (AREA)
- Bioinformatics & Cheminformatics (AREA)
- Biophysics (AREA)
- Biochemistry (AREA)
- Toxicology (AREA)
- Zoology (AREA)
- Proteomics, Peptides & Aminoacids (AREA)
- Molecular Biology (AREA)
- Genetics & Genomics (AREA)
- Gastroenterology & Hepatology (AREA)
- Emergency Medicine (AREA)
- Obesity (AREA)
- Hematology (AREA)
- Medicines That Contain Protein Lipid Enzymes And Other Medicines (AREA)
- Peptides Or Proteins (AREA)
- Medicines Containing Material From Animals Or Micro-Organisms (AREA)
- Micro-Organisms Or Cultivation Processes Thereof (AREA)
- Pharmaceuticals Containing Other Organic And Inorganic Compounds (AREA)
Abstract
異種シグナル配列に連結された哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1(GLP-1)をコードする核酸を含む組成物、発現ベクター、および宿主細胞が、本発明に含まれる。本発明は、前駆体GLP-1をコードする核酸の有効量を個体に投与する段階を含む、個体のインスリン産生を促進する方法にも関する。本発明は、前駆体GLP-1をコードする核酸の有効量を個体に投与する段階を含む、血糖障害(例、I型またはII型糖尿病)を持つ個体を治療するための方法にも関する。特定の態様では、本発明は、活性化切断部位における前駆体切断をコードするシグナル配列を含む前駆体GLP-1をコードする核酸の有効量を個体に投与する段階を含む、血糖障害を持つ個体の治療法に関する。
Description
関連出願
本願は、2001年8月8日付け米国仮出願第60/310,982号に基づく利益を主張するものである。上記出願の教示全体が、参照として本明細書に組み入れられる。
本願は、2001年8月8日付け米国仮出願第60/310,982号に基づく利益を主張するものである。上記出願の教示全体が、参照として本明細書に組み入れられる。
発明の背景
一般的用語では、真性糖尿病の最も一般的なタイプは、I型、耐糖能障害(IGT)、およびII型である。I型糖尿病では、膵臓のβ細胞が、おそらく自己免疫反応によって、インスリンを血流中に産生することを停止する。インスリンは、通常、膵臓内のβ細胞によって血流中に分泌される化学物質である。インスリンのおかげで、ヒトは代謝過程の一環として、血流中の糖を適切に利用し消費することができるため、インスリンは非常に重要である。
一般的用語では、真性糖尿病の最も一般的なタイプは、I型、耐糖能障害(IGT)、およびII型である。I型糖尿病では、膵臓のβ細胞が、おそらく自己免疫反応によって、インスリンを血流中に産生することを停止する。インスリンは、通常、膵臓内のβ細胞によって血流中に分泌される化学物質である。インスリンのおかげで、ヒトは代謝過程の一環として、血流中の糖を適切に利用し消費することができるため、インスリンは非常に重要である。
現在では、主に2つの形の真性糖尿病が認識されている。I型糖尿病またはインスリン依存型糖尿病は、グルコース利用を調節するホルモンであるインスリンが完全に欠如した結果である。II型糖尿病またはインスリン非依存型糖尿病は、正常または高レベルのインスリンの存在下でもおこり、組織がインスリンに適切に応答できなくなった結果と考えられる。II型糖尿病患者の大部分は肥満である。膵臓がインスリンの産生を停止したI型では、血糖値をコントロールするために、患者は指示された定期的な間隔と用量で、インスリンを血流中に直接注射する必要がある。これは静脈内注射と呼ばれる。インスリンの経口摂取も可能であるが、通常は胃および上部小腸を通過することによるインスリンの分解のために、有効性は劣る。
IGTおよびII型糖尿病では、膵臓はインスリンを産生し続けるが、インスリンの一部または全部が、体内の細胞の受容体に結合できない可能性があり、および/または細胞によるインスリンのインターナリゼーションが低下している。そのような場合、血中のインスリンレベルは充分でも、インターナリゼーションされたインスリンが低下しているために、細胞がグルコースを取り込む能力が低下または失われていることがある。II型糖尿病患者では、インスリンが結合した細胞はグルコースを取り込まず、これはシグナル伝達経路に欠陥があることを示している。その結果、インスリンの必要性は高まるが、II型糖尿病患者のβ細胞は十分なインスリンを分泌しないので、この必要性は満たされない。
個体がI型、IGT、またはII型糖尿病を持つことは、通常、経口グルコース負荷試験(OGTT)によって決定される。OGTTは空腹時の患者に既知の量のグルコース(糖)を経口で与え、その後、定期的に血中の糖の量を測定する試験である。その後、曲線を作製し、それからその患者についての重要な情報が得られる。通常、グルコース負荷試験曲線から、患者が高血糖症(糖尿病)かどうか、または患者の血中の糖が少なすぎる低血糖症であるかが分かる。
高血糖症の症状は、頭痛、頻尿、口渇、嘔気、体重減少、疲労、および昏睡であり得る。高血糖症は、膵臓のインスリン産生性β細胞がインスリンを製造しないか、製造して血流中に分泌するインスリンの量が低下している、低インスリン症によって起きうる。そのような場合、血糖レベルは劇的に上昇する。
高血糖症は、血中の利用可能なインスリンの一部または全てが、細胞の受容体に結合できないことでも起き得、および/または細胞へのインスリンのインターナリゼーションが低下する。低血糖症(低すぎる糖レベル)も、糖尿病患者が常に注意しなくてはならない血液の状態である。低血糖症の症状は、突然起きる猛烈な空腹、手や体の振戦、失神、目の前の黒点、精神錯乱、発汗、異常な振る舞い、および重症な場合には意識喪失を伴う痙攣である。そのような場合、これらの発作時の血液検査で、血流中の糖レベルが極端に低くなっていることが分かる。
インスリン依存型真性糖尿病(IDDM)は、臓器特異的自己免疫疾患であり、米国では様々な年齢の患者が100万人近くいる。この疾患は、膵島のインスリン産生性β細胞が大きく破壊され、グルコース代謝の異常により明白な糖尿病になるという特徴を持つ。IDDMの決定的な特徴は、膵島のリンパ球浸潤である。浸潤細胞の中で、T細胞は自己免疫性の破壊の主な媒介物質の一つであると考えられる。さらにI型糖尿病は、インスリン、GAD65、GAD67、およびICA512を含む様々な膵島関連抗原に対する抗体の上昇という特徴を持つ。これらの抗体は、明白な発症のはるか以前に検出できるので、そのような抗原に対する免疫応答は、感受性のある遺伝的(HLA)ハプロタイプを持つ患者の切迫した糖尿病の予測因子となり得る。現在、患者は正常血糖を維持するためにはインスリン注射に依存している。
インスリンは2つのジスルフィド結合した鎖である21アミノ酸残基のA鎖および30残基のB鎖からなる、ポリペプチドホルモンである。インスリンの投与は、糖尿病患者に大きな恩恵を与えうるが、インスリンの血清中半減期は短いために、適切な用量を維持することが困難である。インスリンの使用は、様々な低血糖性の副作用および中和抗体の産生も誘導する可能性がある。Leeら、Nature 408:483-488 (2000)は、プロセッシングが不要なため組み換えによる作製が比較的簡単な一本鎖インスリンアナログ(SIA)を作製した。Thuleら、Gene Therapy 7:1744-1752 (2000)のような他の研究者は、遍在的に発現されるエンドプロテアーゼであるフリンにより切断されるようにインスリン鎖を組み換えた。
II型糖尿病は、進行性の多因子性疾患であり、インスリン抵抗性により生じ、初期には空腹時血糖値の上昇という特徴を持つ。II型糖尿病の感受性には遺伝的要因が関与していると考えられるが、例えば、肥満、加齢、食事、および運動不足のような他の重要なリスク因子も関与している。高血糖症の治療には、膵臓からのインスリン分泌、血中からのグルコースの取り込み、およびグルコース産生量の低下を促進するものを含め、数多くの薬剤が開発されている。残念なことに、これらの治療法は通常、II型糖尿病の進行を遅らせるだけであり、II型糖尿病は進行して、インスリン依存性の状態や、高血圧、手足の潰瘍性病変、末期腎不全、網膜症、および心血管疾患のような糖尿病に伴う合併症の発症に至る可能性がある。新しい治療法、特に疾病の進行を停止し、合併症を防ぐ治療法が緊急に必要とされている。米国のみでも1000万人以上がII型糖尿病を罹患しており、発生率は劇的に上昇している。
プログルカゴンは膵臓のα細胞および小腸のL細胞で発現するが、これらの細胞中で蛋白分解性のプロセッシングを受け、グルコースのホメオスタシスに対して拮抗する生物学的活性を持つ異なるペプチドホルモンになる。膵臓のα細胞中では、プログルカゴンは加工されてグルカゴンになり、これはインスリンの作用に拮抗するが、小腸の内分泌性L細胞では、加工されてグルカゴン様ペプチド(GLP-1)になる。この異なるプロセッシングは、サブチリシン様プロ蛋白質コンバーターゼのファミリーに属する特異的なエンドプロテアーゼ類の異なる発現のためである。PC2は膵臓のα細胞で発現され、PC3(PC1としても知られる)は小腸のL細胞中で発現される。
グルカゴン様ペプチド(GLP-1)は、食物の取り込みに応答して小腸から分泌され、多くの活性を持つ。天然型のGLP-1は、食物と水の摂取を担う神経系のニューロンを阻害することが知られている37アミノ酸のペプチドである。Tang-Christensenら、Diabetes 47:530-537 (1998)。また、GLP-1は、個体が高血糖状態の場合にのみ、インスリン分泌刺激性である。
グルカゴン様ペプチド1(GLP-1)は、食物摂取に対する生理的応答の調節に重要な役割を果たすことが知られている。GLP-1はプログルカゴンからプロセッシングされ、食事の摂取に応答して、主に遠位小腸および結腸にある内分泌性L細胞から、血中に放出される。GLP-1はG蛋白質共役型細胞表面受容体(GLP-1R)を通して作用し、栄養分に誘導されるインスリン合成および放出を増強する。GLP-1はインスリン分泌(インスリン分泌刺激作用)およびcAMP形成を刺激する。GLP-1 (7-36)アミドはインスリンの放出を刺激し、グルカゴン分泌を低下させ、胃液分泌および胃内容排出を阻害する。GLP-1のこれらの胃腸管への作用は、迷走神経切除患者では見られず、中枢を介した効果であることが示される。GLP-1は単離されたラット脂肪細胞に高い親和性で結合し、cAMP産生を活性化し、脂質生成または脂肪分解を刺激する。GLP-1は、ラットの骨格筋におけるグリコーゲン合成、グルコースの酸化、および乳酸形成を刺激する。
GLP-1の他の重要な性質には、β細胞の分化および複製を促進し、膵島を保存する助けになる能力、ならびに、肝臓における糖新生を阻害する能力が含まれる。
膵臓型GLP-1受容体をコードするmRNAは、ラットの膵島、肺、視床下部、および胃で比較的大量に見られる。興味深いことに、GLP-1およびGLP-1受容体の両方とも視床下部に見られることが分かっていたにもかかわらず、脳室内(ICV)投与されたGLP-1が空腹ラットにおける食物摂取を著しく阻害するという最近の報告まで、GLP-1の中枢での役割は決定されていなかった。同じ報告は、GLP-1のICV投与後に、ニューロン活性化のマーカーであるc-fosが、食物摂取の調節に主に重要な脳の2つの領域である、視床下部の室傍核および小脳扁桃の中心核にのみ現れることを示している。ICV GLP-1はまた、随意に食餌摂取した動物において、強力な食物摂取刺激物質であるニューロペプチドYの注射後に、有意に食物摂取を低下させる。その後の報告で、中枢または末梢投与されたGLP-1は、ラットで急性腹腔内投与後には、体温調節の制御に関与しているが、食餌摂取には影響を与えないことが示された。最近、満腹のラットへのGLP-1の側脳室注射が室傍核および小脳扁桃の小細胞性中心核においてFos-irの強い刺激を誘導することが報告され、Turtonらの正当性が実証された。さらに、これらの研究者は、孤束核、脳橋傍小脳脚核、分界条の基底核、および最後野中の即初期遺伝子蛋白産物を含め、食物摂取の調節に関与している他の中枢の強い活性化も記述した。末梢GLP-1に接近できるGLP-1受容体は、ラットの脳弓下器官および最後野に見られる。
Turtonら(1996)は、体重および食物摂取に対するGLP-1の影響は、脳室へのGLP-1の直接投与でのみ引き起こされ、比較的高用量でも腹腔内投与されたGLP-1は、初期暗期の(early dark-phase)食物摂取に影響を与えず、末梢投与されたときにはGLP-1断片は不活性であると具体的に述べた。ICVのような中枢の投与経路はヒトの肥満治療では実現不能なので、そのような主張は、減量のための組成物(薬剤)としてのGLP-1の使用を阻むことになる。上記のGLP-1の生理的効果のために、例えば、GLP-1またはGLPまたはGLP-1受容体をコードする組み換え細胞株を移植することによって、糖尿病および肥満を治療するための有益な使用法が示唆された(国際公開公報第96/25487号)。
しかし、糖尿病のような血液疾患の有効な代替治療法は早急に必要とされている。
発明の概要
本発明は、糖尿病のような血糖疾患を治療するために使用できる組成物に関する。より具体的には、本発明は、グルカゴン様1ペプチド(GLP-1)をコードする核酸、その核酸を含むベクター、およびインスリン産生を促進(刺激)するために組成物を個体に投与する方法に関する。したがって、本発明の組成物は、血糖疾患の治療のために提供される。
本発明は、糖尿病のような血糖疾患を治療するために使用できる組成物に関する。より具体的には、本発明は、グルカゴン様1ペプチド(GLP-1)をコードする核酸、その核酸を含むベクター、およびインスリン産生を促進(刺激)するために組成物を個体に投与する方法に関する。したがって、本発明の組成物は、血糖疾患の治療のために提供される。
特に、本発明は、異種のシグナル配列に連結した哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1(GLP-1)をコードする単離された核酸に関する。
1つの態様では、単離された核酸にコードされる哺乳類GLP-1は、GLP-1 7-37のアミノ酸配列(配列番号:21)を持つ。別の態様では、GLP-1は修飾されたGLP-1である。例えば、核酸にコードされた修飾GLP-1は、GLP-1 7-37の8の位置のアラニンがグリシンで置換されたアミノ酸配列(配列番号:22)を持つ。修飾GLP-1の他の例には、以下のものからなる群より選択されるアミノ酸配列を持つGLP-1が含まれる。

哺乳類GLP-1に連結された異種シグナル配列には、ペプチド(例、プロテアーゼ)によって切断される切断部位が含まれる。例えば、異種シグナル配列は、(1つまたは複数の)シグナルペプチド配列および/またはリーダー配列であり得る。異種シグナル配列は、サイトカイン、成長因子、コロニー刺激因子、凝固因子、(PACAP)/グルカゴンスーパーファミリーの蛋白質、および血清蛋白質のような蛋白質に由来し得る。例えば、異種シグナル配列は、分泌ヒトアルカリホスファターゼ(SEAP)シグナルペプチド配列、プロエキセンディン4リーダー配列、プロヘロデルミンリーダー配列、プログルコース依存性インスリン分泌刺激ポリペプチド(GIP)リーダー配列、プロインスリン様成長因子1 (IGF1)リーダー配列、プレプログルカゴンリーダー配列、またはα1アンチトリプシンリーダー配列に由来し得る。特定の態様では、異種シグナル配列には、フリン切断部位が含まれる。フリン切断部位は、Arg-X-Lys-Arg(配列番号:34)、Arg-X-Arg-Arg(配列番号:35)、Lys/Arg-Arg-X-Lys/Arg-Arg(配列番号:36)、およびArg-Gln-Lys-Arg(配列番号:38)のようなArg-X-X-Arg(配列番号:37)などのペプチドをコードしうる。異種シグナル配列は、プロホルモンコンバーターゼ(PC)切断部位も含みうる。
1つの態様では、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体GLP-1をコードする単離核酸は、配列番号:1、配列番号:3、配列番号:5、配列番号:7、配列番号:9、配列番号:11、配列番号:13、配列番号:15、配列番号:17、および配列番号:19からなる群より選択される。
別の態様では、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体GLP-1をコードする単離核酸は、配列番号:2、配列番号:4、配列番号:6、配列番号:8、配列番号:10、配列番号:12、配列番号:14、配列番号:16、配列番号:18、および配列番号:20からなる群より選択されるアミノ酸配列をコードする。
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む単離された前駆体GLP-1にも関する。1つの態様では、本発明は、本明細書に記述された核酸によってコードされる単離されたポリペプチドにも関する。前駆体GLP-1はGLP-1(例、配列番号:21)または修飾GLP-1(例、位置8のアラニンがグリシンで置換されているアミノ酸配列(配列番号:22)を持つ修飾GLP-1、
を含み得る。
前駆体GLP-1ポリペプチドの異種シグナル配列は、シグナルペプチド配列および/またはリーダー配列でよい。異種シグナル配列は、分泌ヒトアルカリホスファターゼ(SEAP)シグナルペプチド配列、プロエキセンディン4リーダー配列、プロヘロデルミンリーダー配列、プログルコース依存性インスリン分泌刺激ポリペプチド(GIP)リーダー配列、プロインスリン成長因子1 (IGF1)リーダー配列、プレプログルカゴンリーダー配列、α1アンチトリプシンリーダー配列、およびインスリン様成長因子1に由来し得る。特定の態様では、前駆体GLP-1はフリン切断部位(例、Arg-X-Lys-Arg(配列番号:34)、Arg-X-Arg-Arg(配列番号:35)、Lys/Arg-Arg-X-Lys/Arg-Arg(配列番号:36)、およびArg-Gln-Lys-Arg(配列番号:38)のようなArg-X-X-Arg(配列番号:37))を含む。別の態様では、前駆体GLP-1は、プロホルモンコンバーターゼ(PC)切断部位を含む。特定の態様では、異種シグナル配列に連結した哺乳類GLP-1を含む単離前駆体グルカゴン様ペプチド1(GLP-1)は、配列番号:2、配列番号:4、配列番号:6、配列番号:8、配列番号:10、配列番号:12、配列番号:14、配列番号:16、配列番号:18、および配列番号:20からなる群より選択されるアミノ酸配列を持つ。
本発明は、異種シグナル配列に連結された哺乳類GLP-1を含む前駆体GLP-1をコードする核酸を含む発現ベクターにも関する。1つの態様では、発現ベクターはウイルスベクター(例、アデノウイルスベクター、部分欠失したアデノウイルスベクター、完全欠失したアデノウイルスベクター、アデノ随伴ウイルスベクター、偽アデノウイルス、レトロウイルスベクター、ヘルペスウイルス、およびレンチウイルスベクター)であり得る。
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体GLP-1をコードする核酸を含む単離された宿主細胞にも関する。特定の態様では、単離された宿主細胞は、本明細書に記述される発現ベクターを含む。
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体GLP-1をコードする核酸の有効量を個体に投与する段階を含む、インスリンを必要とする個体(例、I型糖尿病、II型糖尿病)におけるインスリン産生促進方法にも関し、ここで前駆体GLP-1はインビボまたはエクスビボで切断され、個体において活性化されたGLP-1の生産が起きる。1つの態様では、核酸はウイルスベクター(例、アデノウイルスベクター、部分欠失したアデノウイルスベクター、完全欠失したアデノウイルスベクター、アデノ随伴ウイルスベクター、偽アデノウイルス、レトロウイルスベクター、ヘルペスウイルスベクター、およびレンチウイルスベクター)中で投与される。
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体GLP-1をコードする核酸の有効量を個体に投与する段階を含む、血糖障害のある個体の治療方法にも関し、ここで前駆体GLP-1はインビボまたはエクスビボで切断され、個体において活性化されたGLP-1の生産が起きる。血糖障害は、例えば、I型糖尿病、II型糖尿病、および/または高血糖症のような障害であり得る。
個体におけるインスリン産生の促進方法および血糖障害の治療方法は、前駆体GLP-1ペプチドの投与も含み得る。この態様では、GLP-1から異種シグナル配列を切断するプロテアーゼも、GLP-1前駆体ペプチドとともに(同時、順次)投与してもよい。
したがって、本発明の組成物は、糖尿病のような血糖障害のための、有効な代替治療法として使用できる。
発明の詳細な説明
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1(GLP-1)をコードする単離された核酸(例、DNA,cDNA,RNA)、本発明の核酸によってコードされる単離されたポリペプチド、本発明の核酸を含む発現ベクターおよび宿主細胞、ならびに、必要とする個体においてインスリン産生を促進するために核酸およびポリペプチドを使用する方法に関する。異種シグナル配列は、野生型のGLP-1前駆体蛋白質に通常は結合しているシグナル配列(すなわち、全長プログルカゴンのシグナル配列)ではなく(非天然)、プロテアーゼによる前駆体GLP-1の切断のために提供される。プロテアーゼによりGLP-1前駆体からシグナル配列が切断されると、生物活性のあるGLP-1が生成する。
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1(GLP-1)をコードする単離された核酸(例、DNA,cDNA,RNA)、本発明の核酸によってコードされる単離されたポリペプチド、本発明の核酸を含む発現ベクターおよび宿主細胞、ならびに、必要とする個体においてインスリン産生を促進するために核酸およびポリペプチドを使用する方法に関する。異種シグナル配列は、野生型のGLP-1前駆体蛋白質に通常は結合しているシグナル配列(すなわち、全長プログルカゴンのシグナル配列)ではなく(非天然)、プロテアーゼによる前駆体GLP-1の切断のために提供される。プロテアーゼによりGLP-1前駆体からシグナル配列が切断されると、生物活性のあるGLP-1が生成する。
本明細書において使用される「単離された」(部分的または実質的に「精製された」)という用語は、組成物が得られる源からの混入物質が実質的にない組成物を指す。
GLP-1 (7-37)はインスリン分泌刺激性で活性型で血中に分泌される、一本鎖の糖蛋白質である。インビトロおよびインビボで、GLP-1はジペプチジルペプチダーゼIVによって蛋白分解による不活化を受ける。糖尿病患者のGLP-1レベルは低下している。本明細書では、「GLP-1」は哺乳類(例、ヒト)のGLP-1(7-37)を意味する。当技術分野の慣習により、GLP-1(7-37)のアミノ末端には7番、カルボキシ末端には37番と付けられている。当技術分野で周知のGLP-1(7-37)のアミノ酸配列を以下に示す:
本発明の前駆体GLP-1は、修飾GLP-1も含み得る。本明細書で使用される「修飾GLP-1」とは、GLP-1核酸配列および/またはアミノ酸配列中に(1つまたは複数の)修飾を持ち(例、GLP-1と比較したときに、1つまたは複数の核酸および/またはアミノ酸の置換、欠失、逆位、または付加)、GLP-1前駆体から切断されるとGLP-1の生物活性を保持しているGLP-1分子と定義される。本明細書では、「GLP-1の生物活性」(生物活性を持つGLP-1)には、GLP-1に伴う1つまたは複数の生物活性が含まれる(例、インスリン分泌刺激活性(インスリン分泌を促進/刺激する能力);グルカゴン分泌を低下させる能力;減量に作用する能力)。
修飾GLP-1は、切断型GLP-1配列を含み得、全長GLP-1ペプチドのアミノ酸1, 2, 3, 4, 5, 6, または7から開始し、全長GLP-1ペプチドのアミノ酸36または37で終わるGLP-1を含みうる。したがって、「修飾GLP-1」は、本明細書で「全長グルカゴン様ペプチド1」と呼ぶアミノ酸1から始まり37までのGLP-1を含みうる。特定の態様では、修飾GLP-1は、アミノ酸8のAlaからGlyへの変異を含む(配列番号:22)。他の修飾GLP-1分子は当技術分野で周知であり、例えば、
を含む。他の修飾GLP-1分子には、GLP-1 (2-37)(配列番号:31);GLP-1 (3-37)(配列番号:32);GLP-1 (6-37)(配列番号:33)が含まれる。GLP-1 (7-34)(配列番号:23)およびGLP-1 (7-35)(配列番号:24)は米国特許第5,118,666号に開示されている。これらの化合物は、GLP-1の生物活性(加工)型である(例、インスリン分泌刺激作用を持つ)。別の修飾GLP-1分子は、米国特許第5,545,618号に開示されている。本発明の実施に適した修飾GLP-1分子には、減量に作用する活性断片が含まれる。特定の修飾GLP-1分子は、ジペプチジルプロテアーゼIV (DPPIV)による切断による不活化に抵抗性のものである。
本明細書に記述される修飾は、同定される他の哺乳類GLP-1にも導入でき、得られた修飾GLP-1がインビボで生物活性のあるGLP-1であるかどうかは、既知の方法で評価できる。本明細書に記述される修飾GLP-1をコードする核酸は、組み換えまたは化学合成したものが市販されている。本明細書に記述される修飾GLP-1の配列修飾は、様々な技術を用いて実行できる。例えば、位置指定突然変異導入および/または酵素切断を用いることができる。本明細書に記述されたものと類似した他の修飾GLP-1分子は、当業者によって調製できる。そのような修飾されたGLP-1は、GLP-1活性の様々な既知のアッセイ法を用いて、インビボでインスリン産生を誘導する能力を評価できる。例えば、修飾GLP-1を、不死化したβ細胞のような細胞に導入し、得られた細胞にグルコースを接触させることができる。グルコースに応答して細胞がインスリンを産生すれば、修飾GLP-1はインビボで生物活性を持つ(Fehmannら、Endocrinology, 130:159-166 (1992))。または、実施例1に説明するように(図16)、修飾GLP-1を含む発現プラスミドを、大容量尾静脈注射を用いてdb/dbマウスに導入できる。修飾GLP-1が発現してdb/dbマウスのグルコースの量が低下すれば、修飾GLP-1はインビボで生物活性を持つ。
本明細書で使用される「異種シグナル配列」は、野生型のGLP-1前駆体蛋白質に通常は結合しているシグナル配列(すなわち、全長プログルカゴン前駆体分子のシグナル配列)ではなく(非天然)、プロテアーゼによる前駆体GLP-1の切断を提供するものと定義される。プロテアーゼによりGLP-1前駆体から異種シグナル配列が切断されると、生物活性のあるGLP-1が生成する。異種シグナル配列は、一般に切断のためにプロテアーゼが認識する切断部位をコードする領域を含む。または、切断のためにプロテアーゼが認識する切断部位をコードする領域を、異種シグナル配列中に導入することもできる。さらに、切断のためにプロテアーゼが認識する切断部位をコードする別の(1つまたは複数の)配列を、異種シグナル配列または前駆体GLP-1に付加することもできる。
特定の態様では、異種シグナル配列は、前駆体GLP-1が導入される細胞中に存在するプロテアーゼによって切断される。しかし、異種シグナル配列を切断するプロテアーゼが細胞中に存在しない場合は、前駆体GLP-1が導入された細胞中にプロテアーゼも導入することができる(例、前駆体GLP-1と同時または順次に導入する)。前駆体GLP-1から切断されると活性型のGLP-1が生成する任意の適した異種シグナル配列を、本発明のGLP-1の切断活性化部位に導入できる。本明細書で使用される「GLP-1の切断活性化部位」は、全長GLP-1のアミノ酸7付近である。
「異種シグナル配列」は、例えば、シグナルペプチド配列および/またはリーダー配列(例、分泌シグナル配列)であり得る。本発明の組成物中で使用できる異種シグナル配列の例には、サイトカイン、凝固因子、免疫グロブリン、分泌酵素、またはホルモン(下垂体アデニル酸シクラーゼ活性化ポリペプチド(PACAP)/グルカゴンスーパーファミリーを含む)、および血清蛋白質のような、GLP-1以外の分泌蛋白質に由来するシグナル配列が含まれる。例えば、本発明で使用できる異種シグナル配列は、分泌ヒトアルカリホスファターゼ(SEAP)、プロエキセンディン、プロヘロデルミン、プログルコース依存性インスリン分泌刺激ポリペプチド(GIP)、プロインスリン様成長因子(IGF1)、プレプログルカゴン、α-1アンチトリプシン、インスリン様成長因子1、およびヒト第IX因子に由来しうる。異種シグナル配列の特定の例は、シグナルペプチダーゼおよびフリンまたは他のプロホルモンコンバターゼ(例、PC3)による前駆体切断のシグナルのコード領域を含む配列である。例えば、フリン(PACEとしても知られる、米国特許第5,460,950号参照)、他のサブチリシン(PC2, PC1/PC3, PACE4, PC4, PC5/PC6, LPC/PC7/PC8/SPC7およびSKI-1を含む;Nakayama, Biochem. J., 327:625-635 (1997));エンテロキナーゼ(米国特許第5,270,181号参照)またはキモトリプシンによって切断されるシグナルは、本発明で使用するためにGLP-1の切断活性化部位に導入することができる。上述の各文書の開示は、参照として本発明に組み入れられる。フリンはトランスゴルジに存在し、分泌の前に蛋白質前駆体の加工を行なう、遍在的に発現されるプロテアーゼである。フリンはコンセンサス認識配列Arg-X-Lys-Arg(配列番号:34)またはArg-X-Arg-Arg(配列番号:35)、(Lys/Arg)-Arg-X-(Lys/Arg)-Arg(配列番号:36)、およびArg-Gln-Lys-Arg(配列番号:38)のようなArg-X-X-Arg(配列番号:37)のCOOH-末端で切断する。これらのアミノ酸配列は、プロテアーゼフリンによる前駆体切断のシグナルである。したがって、異種シグナル配列はまた、シグナル配列から作製した合成コンセンサス配列(例、シグナルペプチダーゼによって切断される分泌蛋白質から作製したコンセンサス配列)に由来しうる。
特定の態様では、異種シグナル配列は、特定の細胞または組織(例、筋肉、脳)に特異的なプロテアーゼによって切断されるシグナルを持つ。1つの態様では、異種シグナル配列は、筋肉に存在するプロテアーゼによって切断されるインスリン様成長因子1 (IGF-1)に由来する。また、そのような異種シグナル配列は、組織の種類(例、筋肉、肝臓)に特異的な調節要素(例、プロモーター、エンハンサー)と共に使用できる。筋肉に関するそのような調節要素の例は、Souzaら、Molec. Ther., 5(5) part 2:S409 (2002年6月)に提供されている。肝臓に関するそのような調節要素の例は、国際公開公報第01/36620号)に提供されている。さらに、シグナル配列の配列は、さらに修飾できる(例、前駆体GLP-1の切断を最適化するため)。例えば、IGF-1シグナル配列のプロテアーゼ切断に関与する領域は、以下のように修飾できる:
異種シグナル配列は、様々な技術を用いてGLP-1に連結できる。例えば、異種シグナル配列は組み換え技術を用いてGLP-1のアミノ酸7付近でインフレームで融合させ、融合蛋白質である前駆体GLP-1を生産できる。概して、異種シグナル配列はGLP-1のN末端に融合される。例えば、異種シグナル配列はGLP-1のアミノ酸6からアミノ酸7の付近で連結させ、組み換え技術を用いて適当な切断部位を形成させることができる。
特定の態様では、異種シグナル配列に連結された哺乳類GLP-1を含む前駆体GLP-1をコードする単離核酸は、配列番号:1、配列番号:3、配列番号:5、配列番号:7、配列番号:9、配列番号:11、配列番号:13、配列番号:15、配列番号:17、および配列番号:19からなる群より選択される。
本発明は、本明細書に記述される核酸にコードされる単離ポリペプチドにも関する。例えば、異種シグナル配列に連結された哺乳類GLP-1を含む前駆体GLP-1をコードする単離核酸は、配列番号:2、配列番号:4、配列番号:6、配列番号:8、配列番号:10、配列番号:12、配列番号:14、配列番号:16、配列番号:18、および配列番号:20からなる群より選択されるアミノ酸配列を持つ。
本発明の前駆体GLP-1は、GLP-1の分泌を調節する成分をさらに含みうる。例えば、RPDTM Regulated Secretion/Aggregation Kit(Ariad Pharmaceuticals, Inc.)を前駆体GLP-1に連結して、GLP-1の分泌を調節することができる。
本発明の核酸およびアミノ酸配列は、組み換えで生産、化学的に合成、または販売元から購入できる。本発明で使用するGLP-1および異種シグナルの核酸およびアミノ酸配列は、任意の適当な供給源(例、哺乳類)に由来し、本明細書に記述されるように修飾されることができる。例えば、GLP-1および異種シグナル配列は、ヒト由来(米国特許第6,191,102号;5,981,488号)またはウシ、マウス、サル、および他の種に由来し得、例えばヒトおよび非ヒトGLP-1のドメインを含むキメラでもよい(例えば、類似の米国特許第5,364,771号および5,563,045号(FVIII)参照)。
本発明はさらに、本発明の前駆体GLP-1をコードするベクター(例、発現ベクター)を含む組成物も含む。発現ベクターは、前駆体GLP-1の発現を指揮する調節要素を含みうる。1つの態様では、前駆体GLP-1は、フリンおよび/またはシグナルペプチダーゼによる前駆体切断のシグナルのコード領域を含むアミノ酸配列を含む(例、核酸配列は、前駆体GLP-1ペプチドの活性化切断部位におけるフリンによる前駆体切断のシグナルを含むアミノ酸配列をコードする)。別の態様では、核酸配列は、前駆体GLP-1ペプチドの活性化切断部位においてシグナルペプチダーゼによって切断されるシグナルペプチドのアミノ酸配列をコードする。別の態様では、前駆体GLP-1は、シグナルペプチダーゼおよびフリンまたは他のプロホルモンコンバターゼ(例、PC3)による前駆体切断のシグナルをコードする領域を含む異種シグナル配列を含む。別の態様では、核酸コンストラクトは、前駆体GLP-1の切断部位を認識するプロテアーゼ(例、プロホルモンコンバターゼ3 (PC3))および前駆体GLP-1をコードする、1つまたは複数の発現コンストラクトを含み、細胞中で共に発現すると、生物活性のあるGLP-1が生産される。特定の態様では、発現ベクターはウイルスベクターでありうる(例、アデノウイルスベクター、部分欠失したアデノウイルスベクター、完全欠失したアデノウイルスベクター、アデノ随伴ウイルスベクター、偽アデノウイルス、レトロウイルスベクター、ヘルペスウイルスベクター、およびレンチウイルスベクター)。
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体GLP-1をコードする核酸を含む単離された宿主細胞にも関する。特定の態様では、単離された宿主細胞は、本明細書に記述される発現ベクターを含む。
本発明の宿主細胞中で発現される前駆体GLP-1は、切断されて、インビボで生物活性のあるGLP-1ペプチドを生成する。1つの態様では、核酸配列は、修飾GLP-1ペプチドの活性化切断部位におけるフリンおよび/またはシグナルペプチダーゼによる前駆体切断のシグナルを含むアミノ酸配列をコードする。
本発明に係る前駆体GLP-1ペプチドをコードする核酸ベクターを含む宿主細胞は、エクスビボで培養し、II型糖尿病または高血糖症、またはインスリン欠損症のような糖尿病性疾患または疾病を罹患する個体に投与または移植できる。異種シグナル配列に連結した哺乳類GLP-1を含む前駆体GLP-1をコードする核酸を含む宿主細胞は、本発明のGLP-1前駆体を生産するためにも使用できる。宿主細胞は、前駆体GLP-1が生産される条件下で培養する。宿主細胞は、前駆体GLP-1を切断するプロテアーゼをさらに含む場合も含まない場合もある。
本発明の組成物は、それを必要とする細胞または個体中で、インスリン産生を刺激する方法を提供し、したがって、個体の糖尿病(例、I型糖尿病、II型糖尿病、高血糖症、インスリン欠損症)のような血糖疾患の代替治療法を提供する。
本明細書に記述するように、本発明は、それを必要とする個体の、例えば血漿または肝臓または肺のような適当な貯蔵器官へ、有効量の生物活性のあるGLP-1を提供する、核酸配列、アミノ酸配列、ならびに発現ベクターおよびコンストラクトに関する。本発明では種々の態様が可能であり、それぞれが、十分なGLP-1またはインスリンを持たないために食事および食後に正常範囲内のグルコースレベルを維持できない患者において、有効量の生物活性のあるGLP-1ペプチドを生産できる。様々な態様の本発明は、以下の段階を含む、それを必要とする個体におけるインスリン生産の促進または血糖疾患の治療のための方法に関する:個体に、(1) GLP-1をコードする核酸を投与する段階、(2) 切断されて生物活性のあるGLP-1を形成するGLP-1を含む前駆体GLP-1をコードする核酸を投与する段階;および (3) 切断されて生物活性のあるGLP-1を形成する修飾GLP-1を含む前駆体GLP-1をコードする核酸を投与する段階。
特に、本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1(GLP-1)をコードする核酸の有効量を個体に投与する段階を含む、それ必要とする個体(例、I型糖尿病、II型糖尿病)においてインスリン産生を促進する方法に関する。前駆体GLP-1はインビボまたはエクスビボで切断されて、個体において活性化GLP-1が生成する。1つの態様では、核酸はウイルスベクター(例、アデノウイルスベクター、部分欠失したアデノウイルスベクター、完全欠失したアデノウイルスベクター、アデノ随伴ウイルスベクター、偽アデノウイルス、レトロウイルスベクター、およびレンチウイルスベクター)中で投与される。本発明の核酸は、裸のDNAとしても投与できる。
本発明は、異種シグナル配列に連結した哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1(GLP-1)をコードする核酸の有効量を個体に投与する段階を含み、前駆体GLP-1はインビボまたはエクスビボで切断されて個体中で活性化GLP-1が生成する、血糖疾患を持つ個体の治療法にも関する。血糖疾患は、例えば、I型糖尿病、II型糖尿病、および/または高血糖症のような欠陥であり得る。
GLP-1は高血糖個体においてインスリン生産を促進し(すなわち、その個体におけるGLP-1シグナル伝達は、個体のグルコース上昇に依存する)、β細胞の分化と複製を促進する。I型糖尿病患者では、β細胞は個体の免疫系の攻撃を受ける。しかし、I型糖尿病の初期段階では、β細胞はまだ存在している。したがって、そのような個体にGLP-1を投与すると、β細胞の分化および複製が促進する。したがって、本発明は、β細胞の分化の促進のために前駆体GLP-1を投与する段階を含む、I型糖尿病、特にその初期段階の治療法に関する。特に、前駆体GLP-1は、I型糖尿病において免疫系が全てのβ細胞を除去する前に投与される。この態様では、I型糖尿病治療法は、患者に存在するβ細胞の免疫系によるさらなる破壊を防止するための、免疫抑制の使用(例、免疫抑制薬)も含み得る。
GLP-1の別の効果は、グルカゴンの量を低下させ、個体の肝臓による糖新生を阻害することである。食間に、肝臓はグルコースの量を一定に保つためにグルコースを生産する。I型糖尿病患者が十分なインスリンを生産しなければ、肝臓はグルコースを作りすぎ、高血糖になる。したがって、本発明の前駆体GLP-1は、例えば、I型糖尿病患者の高血糖リスクを低下させる、および/またはI型糖尿病患者の必要とするインスリン量を低下させることによって、I型糖尿病を治療するためにも使用できる。さらに、GLP-1は個体が高血糖の場合にのみ機能するので、I型糖尿病へGLP-1を投与しても、I型糖尿病患者において低血糖を誘発しない。すなわち、I型糖尿病患者が高血糖状態でなくなれば、GLP-1はインスリン分泌刺激作用を示さなくなる。したがって、前駆体GLP-1をインスリン治療を受けているI型糖尿病患者に投与すれば、高血糖状態を引き起こさずに、低血糖を予防することによって、インスリン治療の安全性を改善する。
本発明の方法では、異種シグナル配列に連結したGLP-1を含む前駆体GLP-1をコードする核酸は、前駆体GLP-1を切断するプロテアーゼをコードする核酸とともに発現させてもよい(例、フリン)。この方法では、通常はプロテアーゼを発現せず、したがって通常は前駆体GLP-1産物を切断しない細胞中でGLP-1を生産して、生物活性のあるGLP-1を形成できる。例えば、前駆体GLP-1(例、DPPIV抵抗性アナログ)をコードする核酸を、PC3をコードする核酸とともに発現できる。このようにすると、通常はPC3を発現せず、したがって通常はプログルカゴンを切断してGLP-1にしない細胞中で、GLP-1が生産できる。
インスリン産生の促進または血糖疾患の治療のための方法は、それを必要とする個体に前駆体GLP-1ペプチドを投与することによっても実施できる。この態様では、前駆体GLP-1は細胞外から送達されるので、前駆体GLP-1を切断するプロテアーゼも投与し、それによりインビボで生物活性のあるGLP-1を送達する。別の態様では、前駆体GLP-1は血中のプロテアーゼによって認識される切断部位に連結したGLP-1を含みうる。GLP-1前駆体はまた、前駆体GLP-1をより安定化し、および/または体の特定の部位(例、肝臓、筋肉、脳)で前駆体GLP-1の切断を行なうようにする分子(例、アルブミンのようなペプチド)に連結できる。
前駆体GLP-1をコードする核酸は、アデノウイルスベクター、部分欠失したアデノウイルスベクター、完全欠失したアデノウイルスベクター、アデノ随伴ウイルスベクター、偽アデノウイルス、レトロウイルスベクター、ヘルペスウイルスベクター、およびレンチウイルスベクターのようなウイルスベクター中で投与できる。核酸は裸のDNAとしても投与できる。
インスリン
インスリンの直前の前駆体は、プロインスリンと呼ばれる単一のペプチドで、これは、別のペプチドCで結合されたAおよびB鎖という2つのインスリン鎖を持つ。Steiner, D.F., Cunningham, D., Spigelman, L.およびAten, B., Science 157, 697 (1967)参照。インスリンmRNAの最初の翻訳産物はプロインスリン自身ではなく、プロインスリンのアミノ末端にさらに20をこえるアミノ酸が含まれるプレプロインスリンであると報告されている。Cahnら、PNAS USA 73, 1964 (1976)、ならびに、LomedicoおよびSaunders, Nucl. Acids Res. 3, 381 (1976)を参照されたい。プレプロインスリン分子の構造は、NH.sub.2-(プレペプチド)-B鎖-(C鎖)-A鎖-COOHと模式的に表される。プレプロインスリンは、膵島β細胞中で、特異的プロテアーゼPC2およびPC3によって、B/CおよびC/A結合部で加工されて成熟したインスリンになる。様々な種類の細胞においてプロインスリンの加工が起きるように、分泌の構成性経路で加工されるように、多くのグループがラット及びヒトインスリンを修飾してきた。B/CおよびC/A結合部にフリンコンセンサス切断配列を導入すると、様々な種類の細胞中で、修飾プロインスリンが成熟したインスリンに効率良く加工されることが示された。
インスリンの直前の前駆体は、プロインスリンと呼ばれる単一のペプチドで、これは、別のペプチドCで結合されたAおよびB鎖という2つのインスリン鎖を持つ。Steiner, D.F., Cunningham, D., Spigelman, L.およびAten, B., Science 157, 697 (1967)参照。インスリンmRNAの最初の翻訳産物はプロインスリン自身ではなく、プロインスリンのアミノ末端にさらに20をこえるアミノ酸が含まれるプレプロインスリンであると報告されている。Cahnら、PNAS USA 73, 1964 (1976)、ならびに、LomedicoおよびSaunders, Nucl. Acids Res. 3, 381 (1976)を参照されたい。プレプロインスリン分子の構造は、NH.sub.2-(プレペプチド)-B鎖-(C鎖)-A鎖-COOHと模式的に表される。プレプロインスリンは、膵島β細胞中で、特異的プロテアーゼPC2およびPC3によって、B/CおよびC/A結合部で加工されて成熟したインスリンになる。様々な種類の細胞においてプロインスリンの加工が起きるように、分泌の構成性経路で加工されるように、多くのグループがラット及びヒトインスリンを修飾してきた。B/CおよびC/A結合部にフリンコンセンサス切断配列を導入すると、様々な種類の細胞中で、修飾プロインスリンが成熟したインスリンに効率良く加工されることが示された。
医学的または研究に重要な多くの蛋白質が、脊椎動物のような高等生物の細胞中で見つかるか、生産されている。これには、例えば、ホルモンインスリン、成長ホルモンのような他のペプチドホルモン、血圧の調節に関与する蛋白質、および産業用、医学的または研究に重要な様々な酵素が含まれる。生物体からの抽出によってそのような蛋白質を使用できる量で得ることは困難なことが多く、この問題はヒト由来の蛋白質の場合に特に深刻である。したがって、ある程度の量でそのような蛋白質を生物体の外で細胞によって作ることができるような技術が必要である。特定の場合には、組織培養技術によって維持できる適当な細胞株を得ることができる。しかし、組織培養における細胞の増殖は遅く、培地は高価で、条件は正確にコントロールする必要があり、収率は低い。さらに、所望の分化した特徴を持つ培養細胞株を維持することが困難な場合も多い。[米国特許第4,652,525号、4,440,859号参照]
したがって、特定の態様では、本発明は、インスリンまたは修飾インスリンをコードする核酸を、コード配列の発現を提供する調節要素とともに投与することによって、グルコース疾患を治療する方法を含む。
好ましい態様では、調節要素は誘導可能で、最も好ましくは、調節要素はインスリンおよび/またはグルコースに応答性である。したがって、好ましい調節要素には、以下のプロモーターおよび/またはエンハンサーが含まれる。
特定の好ましい態様では、本発明は、コード配列の発現を提供する調節要素とともにインスリンまたは修飾インスリンをコードする核酸を、およびコード配列の発現を提供する調節要素とともに本発明の前駆体GLP-1をコードする核酸を、投与することによって、グルコース疾患を治療する方法を含む。
選択的に、本発明のインスリンおよび/またはGLP-1ベクターと共に、CペプチドまたはCペプチドをコードする遺伝子療法ベクターを投与すると都合が良い場合がある。
したがって、本発明の様々な態様は、(1) インスリンをコードする核酸を投与する段階;(2) インスリンと類似した活性を示す修飾インスリンをコードする核酸を投与する段階;(3) (a)本発明の前駆体GLP-1を(b)インスリンまたは修飾インスリンと共にコードする核酸を投与する段階;および (4) (a)本発明の前駆体GLP-1を(b)ペプチドCまたはペプチドCをコードするDNAベクターとインスリンまたは修飾インスリンと共にコードする核酸を投与する段階を含む。
したがって、本発明は、高血糖症、低血糖症、I型糖尿病、II型糖尿病、および低インスリン症のような血糖疾患の患者の治療法を提供する。特定の態様では、本発明は、患者にインスリンを提供するベクターを用いた、血糖疾患の治療のための材料および方法を提供する。別の態様では、本発明は、患者にGLP-1を提供するベクターを用いた、血糖疾患の治療のための材料および方法を提供する。特定の好ましい態様では、インスリンおよびGLP-1の両方を患者に提供してもよい。本発明の特定の態様では、患者の血流中のインスリン、グルコース、または他の生物学的および化学的要素のレベルによってコントロールされ得る、プロモーターおよびエンハンサーのような調節要素を含むベクターが提供される。
本発明の特定の方法では、GLP-1または修飾GLP-1は、糖尿病のようなグルコース利用疾患の患者に提供される。GLP-1は、ウイルスまたは非ウイルス由来のDNAベクターを介して送達され得る。1つの態様では、GLP-1は、修飾GLP-1ペプチドをコードするDNAベクターを用いて提供される。
他の態様では、本発明は、インビボでGLP-1または修飾GLP-1を発現するDNAベクターの有効量を個体に投与し、血糖値の正常化および時間が経てば糖化ヘモグロビンレベル(HB1AC)の低下を誘導する段階を含む、糖尿病または高血糖疾患の個体の治療方法に関する。
投与
本発明の前駆体GLP-1をコードする核酸は、アデノウイルス、AAV、レトロウイルス、およびレンチウイルスを含むウイルスベクター、ならびに適当な脂質またはポリマーのキャリアを持つまたは持たないプラスミドDNAのような任意の遺伝子移入ベクターとして投与でき、核酸がインビボで発現する条件下で投与される。または、本発明の前駆体GLP-1をコードする核酸は、裸のDNAとして、または脂質もしくは化合物のような両親媒性化合物、もしくは別の適当なキャリアと共に、投与できる。前駆体GLP-1は、前駆体GLP-1を切断するプロテアーゼとともにペプチドとしても(同時、順次)送達できる。
本発明の前駆体GLP-1をコードする核酸は、アデノウイルス、AAV、レトロウイルス、およびレンチウイルスを含むウイルスベクター、ならびに適当な脂質またはポリマーのキャリアを持つまたは持たないプラスミドDNAのような任意の遺伝子移入ベクターとして投与でき、核酸がインビボで発現する条件下で投与される。または、本発明の前駆体GLP-1をコードする核酸は、裸のDNAとして、または脂質もしくは化合物のような両親媒性化合物、もしくは別の適当なキャリアと共に、投与できる。前駆体GLP-1は、前駆体GLP-1を切断するプロテアーゼとともにペプチドとしても(同時、順次)送達できる。
本発明の前駆体GLP-1および/またはインスリンは、個体中で核酸が発現され、生物活性のあるGLP-1および/またはインスリンがインビボで生成するように、前駆体GLP-1および/またはインスリンをコードする核酸(例、DNA,cDNA,RNA)を個体に導入することにより、投与できる。または、前駆体GLP-1および/またはインスリンをコードする核酸は、個体の細胞(例、肝細胞、筋芽細胞、線維芽細胞、内皮細胞、ケラチノサイト、造血細胞)にエクスビボで投与し、その後、前駆体GLP-1および/またはインスリンが発現して、生物活性のあるGLP-1および/またはインスリンがインビボで生成するように、個体に移入することもできる。
前駆体GLP-1および/またはインスリンをコードする核酸(例、cDNA)は、トランスジーンの発現を駆動するためのプロモーター(構成性または調節可能)のような調節要素、および核酸の下流にポリアデニル化配列を持つ発現カセット中にクローニングできる。例えば、1) 体の組織または領域に特異的;2) 構成性;3) グルコース応答性;および/または4) 誘導可能/調節可能な、調節要素が使用できる。適当なプロモーターには、サイトメガロウイルス(CMV)プロモーター、ユビキチンプロモーター(Cubi)に連結したCMVエンハンサー、筋肉特異的プロモーター(Souzaら、Molec.Ther., 5(5) part 2:S409 (2002年6月))、肝臓特異的プロモーター(国際公開公報第01/36620)、ならびに免疫抑制剤FK506およびラパマイシンに基づくダイメライザー遺伝子制御システム、エクジソン遺伝子制御システム、およびテトラサイクリン遺伝子制御システムのような条件的プロモーターが含まれる。開示が参照として本明細書に組み入れられるAbruzzeseら、Hum. Gene Ther. 1999 10:1499-507に記述されたGeneSwitchTM技術(Valentis, Inc., Woodlands, TX)のような、本発明の前駆体GLP-1の転写を調節できる調節配列も本発明で有用である。血糖コントロールのために生物活性のあるGLP-1および/またはインスリンの最適レベルが得られるように、臨床家は、誘導可能または調節可能なプロモーターを用いて、本発明の方法のさらなる最適化を実行できる。
特定のプロモーターはヒトまたは哺乳類由来である。プロモーター配列は、構成性のプロモーターであってもよく、誘導可能なプロモーターであってもよい。好ましい態様では、プロモーターは誘導可能であってよい。本発明で使用するために特に好ましいプロモーター配列には、肝臓型ピルビン酸キナーゼプロモーター、特に、(-183から+12)または(-96から+12)の断片(Thompsonら、J Biol Chem, (1991). 266:8679-82; Cuifら、Mol Cell Biol (1992). 12:4852-61);スポット14プロモーター(S14, -290から+18)(Jumpら、J. Biol Chem, (1990). 265:3474-8);アセチルCoAカルボキシラーゼ(O’Callaghanら、J Biol Chem (2001). 276:16033-9);脂肪酸シンターゼ(-600から+65)(Rufoら、J Biol Chem (2001). 28:28);およびグルコース6ホスファターゼ(ラットおよびヒト)(Schmollら、FEBS Lett. (1996). 383:63-6; Argaudら、Diabetes, (1996). 45:1563-71)が含まれる。
本発明の特定の態様では、インスリンコード配列またはGLP-1コード配列は、さらに1つまたは複数のエンハンサー要素の制御下にある。本発明で最も有用なエンハンサー要素には、グルコース応答性、インスリン応答性、および/または肝臓特異的な物が含まれる。特定の態様には、CMVエンハンサー(例、ユビキチンプロモーター(Cubi)に連結);肝臓ピルビン酸キナーゼ(L-PK)プロモーター(-172から-142)のグルコース応答要素(GlRE)を含む1つまたは複数のグルコース応答性要素;および応答性を増強した修飾物(Cuifら、上記;Louら、J. Biol Chem, (1999). 274:28385-94);補助L3ボックス(-172から-126)を持つL-PKのGlRE(Diaz Guerraら、Mol Cell Biol, (1993). 13:7725-33;補助L3ボックスを持つ応答性を増強した修飾GlRE;S14の炭水化物応答性要素(ChoRE)(-1448から-1422)、および低グルコース濃度で活性化する修飾物(ShihおよびTowle, J Biol Chem, (1994). 269:9380-7; Shihら、J Biol Chem, (1995). 270:21991-7; およびKaytorら、J Biol Chem, (1997). 272:7525-31; S14の隣接する付属因子部位(-1467から-1422)を持つChoRE(Kaytorら、上記);アルドラーゼ(+1916から+2329)(Gregoriら、J Biol Chem, (1998). 273:25237-43; Sabourinら、J. Biol Chem, (1996). 271:3469-73;および脂肪酸シンターゼ(-7382から-6970)(Rufoら、上記)が含まれうる。好ましい態様には、グルコース-6-ホスファターゼインスリン応答性要素(-780から-722)(Ayalaら、Diabetes, (1999). 48:1885-9)のようなインスリン応答性要素;およびプロトロンビン(940から-860)(Chowら、J Biol Chem, (1991). 266:18927-33)のような肝臓特異的エンハンサー要素;およびα-1-ミクログロブリン(-2945から-2539)(Rouetら、Biochem J, (1998). 334:577-84)も含まれうる。
その後、発現カセットは、静脈内、筋肉内、門脈内、または他の投与経路で宿主に送達するために、アデノウイルス、部分欠失したアデノウイルス、完全欠失したアデノウイルス、アデノ随伴ウイルス (AAV)、レトロウイルス、レンチウイルス、裸のプラスミド、プラスミド/リポソーム複合体等のベクターに挿入する。本発明の方法および組成物で使用できる発現ベクターには、例えば、ウイルスベクターが含まれる。インビボおよびエクスビボ両方の遺伝子療法で最も頻繁に使用される投与方法の1つは、遺伝子の送達のためにウイルスベクターを使用することである。多くのウイルス種が既知であり、遺伝子療法の目的のために研究されているものも多い。最も一般的に使用されるウイルスベクターには、アデノウイルス、アデノ随伴ウイルス(AAV)、およびヒト免疫不全ウイルス(HIV)のようなレンチウイルスを含むレトロウイルスに由来するものが含まれる。
インビボ遺伝子療法、ならびにトランスジーン産物のインビトロ研究および/または生産のような用途のために細胞にトランスジーンを送達するために使用するアデノウイルスベクターは、一般的に、初期1 (E1) 遺伝子を削除することによって、アデノウイルスから得られる(Berkner, K.L., Curr. Top. Micro. Immunol. 158L39-66 1992)。E1遺伝子を削除すると、アデノウイルスベクターは複製不能になり、ベクター内に存在する残ったウイルス遺伝子の発現は著しく低下する。しかし、アデノウイルスベクター中に残ったウイルス遺伝子が存在すると、以下の一つまたはそれ以上の理由により、トランスフェクトされた細胞に対して有害である場合があると考えられている:(1) 発現されたウイルス蛋白質に対する細胞免疫応答の刺激、(2) 発現されたウイルス蛋白質の細胞毒性、および (3) ベクターゲノムの複製による細胞死。
この問題の1つの解決法は、様々なアデノウイルス遺伝子配列が欠失したアデノウイルスベクターを作製することである。特に、「ガットレスアデノウイルス」またはミニアデノウイルスベクターとしても知られる偽アデノウイルスベクター(PAV)は、ベクターゲノムの複製およびパッケージングに必要な最小限のシス作用性ヌクレオチド配列を含み、1つまたは複数のトランスジーンを含むことができる、アデノウイルスゲノム由来のアデノウイルスベクターである(偽アデノウイルスベクター(PAV)およびPAVの生産方法を記述した、参照として本明細書に組み入れられる米国特許第5,882,877号を参照されたい)。約36 kbまでの外来核酸を挿入できるそのようなPAVは、ベクターの運搬容量が最適化されている一方で、ベクターに対する宿主免疫応答または複製可能ウイルスの生成の可能性が低下しているので、有利である。PAVベクターは、複製開始点およびPAVゲノムのパッケージングに必要なシス作用性ヌクレオチド配列を含む、3’ 逆位反復配列(ITR)および5’ ITRヌクレオチド配列を含み、適当な調節要素、例えば、プロモーター、エンハンサー等とともに、1つまたは複数のトランスジーンを挿入することができる。
他の、部分欠失したアデノウイルスベクターは、ウイルス複製に必要なアデノウイルス初期遺伝子の大部分がベクターから削除され、条件的プロモーターの制御下にある生産細胞染色体内に入れられた、部分欠失したアデノウイルス(DeAdと呼ばれる)ベクターを提供する。生産細胞中に入れられる削除可能なアデノウイルス遺伝子には、E1A/E1B, E2, E4(ORF6およびORF6/7のみが細胞中に入れられる必要がある)、pIXおよびpIVa2が含まれうる。E3もベクターから削除可能であるが、ベクターの生産には不要なので、生産細胞から省くことができる。通常は主要後期プロモーター(MLP)の制御下にあるアデノウイルス後期遺伝子は、ベクターに存在するが、MLPは条件的プロモーターで置換してもよい。
DeAdベクターおよび生産細胞株で使用するために適した条件的プロモーターには、以下の特性を持つものが含まれる:未誘導状態では基礎発現が低く、細胞毒性または細胞増殖抑制性アデノウイルス遺伝子が細胞にとって有害なレベルまで発現していない;および誘導された状態では高レベルの発現で、ベクターの複製および構築を支持するために十分な量のウイルス蛋白質が生産される。DeAdベクターおよび生産細胞株で使用するために好ましい条件的プロモーターには、免疫抑制剤FK506およびラパマイシンに基づくダイメライザー遺伝子制御システム、エクジソン遺伝子制御システム、およびテトラサイクリン遺伝子制御システムが含まれる。さらに、参照として本明細書に組み入れられるAbruzzeseら、Hum. Gene Ther. 1999 10:1499-507に記述されたGeneSwitchTM技術(Valentis, Inc., Woodlands, TX)も本発明に有用である場合がある。
部分欠失したアデノウイルス発現システムは、参照として本明細書に組み入れられる国際公開公報第99/57296号にさらに詳述されている。
PAVおよびDeAdベクターのようなアデノウイルスベクターは、受容細胞へ核酸を送達するための適当な手段となる、アデノウイルスの望ましい特徴を利用するためにデザインされてきた。アデノウイルスは、エンベロープなしの約36 kbのゲノムを持つ核DNAウイルスで、古典的遺伝学および分子生物学の研究によって詳しく解析されてきた(Hurwitz, M.S. Adenoviruses Virology, 第3版、Fieldsら編、Raven Press, New York, 1996; Hitt, M.M.ら、Adenovirus Vectors, The Development of Human Gene Therapy, Friedman, T.編、Cold Spring Harbor Laboratory Press, New York 1999)。ウイルス遺伝子は、ウイルス蛋白質の2つの時期的なクラスの生成を指して、初期(E1-E4と呼ばれる)および後期(L1-L5と呼ばれる)転写ユニットに分類される。これらのイベントの境目は、ウイルスDNAの複製である。ヒトアデノウイルスは、赤血球凝集、腫瘍原性、DNAおよび蛋白質のアミノ酸組成および相同性、ならびに抗原性の関係を含む特性に基づいて多数の血清型に分けられる(約47、適宜番号付けされ、A, B, C, D, E, およびFの6つのグループに分類される)。
組み換えアデノウイルスベクターは、分裂および非分裂細胞の両方に対する向性、最小の病原性、ベクターストックの調製のために高力価にまで複製する能力、および大きなインサートを運搬する能力を含め、遺伝子送達手段として使うためにいくつかの利点がある(Berkner, K.L., Curr. Top. Micro. Immunol. 158:39-66, 1992; Jolly, D., Cancer Gene Therapy 1:51-64, 1994)。
PAVは、遺伝子送達に適した手段となるアデノウイルスの望ましい特性を利用するためにデザインされた。アデノウイルスベクターは、ウイルスの増殖に不要な領域を削除することによって、通常、最高8 kbまでのインサートを運搬できるが、PAVを含め、大部分のウイルスコード配列を欠失したアデノウイルスベクターを利用することによって、最大の運搬能力が得られる。Gregoryらの米国特許第5,882,877号;Kochanekら、Proc. Natl. Acad. Sci. USA 93:5731-5736, 1996;Parksら、Proc. Natl. Acad. Sci. USA 93:13565-13570, 1996;Lieberら、J. Virol. 70:8944-8960, 1996; Fisherら、Virology 217:11-22, 1996; 米国特許第5,670,488号;1996年10月24日付け国際公開公報第96/33280号; 1996年12月19日付け国際公開公報第96/40955号; 1997年7月19日付け国際公開公報第97/25446号; 1995年11月9日付け国際公開公報第95/29993号;1997年1月3日付け国際公開公報第97/00326号;Morralら、Hum. Gene Ther. 10:2709-2716, 1998を参照されたい。
PAVのアデノウイルスゲノムの大部分は欠失しているので、PAVの生産にはPAVゲノムの複製とウイルスベクター粒子へのパッケージングを促進するアデノウイルス蛋白質をトランスで提供する必要がある。通常は、そのような蛋白質は、そのような蛋白質をコードする遺伝子を含むヘルパーアデノウイルスを、生産細胞に感染させることによって提供される。
しかし、そのようなヘルパーウイルスは、精製時にPAVのストックの汚染源となる可能性があり、混入したヘルパーアデノウイルスが複製してウイルス粒子にパッケージングされると、個体にPAVを投与する際に問題となる可能性がある。
遺伝子療法でのアデノウイルスの使用は、例えば、参照として本明細書に組み入れられる米国特許第5,882,877号に記述されている。
アデノ随伴ウイルス(AAV)は、ゲノムサイズが4.6 kbの一本鎖ヒトDNAパルボウイルスである。AAVゲノムは2つの主要な遺伝子を含んでいる:rep蛋白質(Rep 76, Rep 68, Rep 52, およびRep 40)をコードするrep遺伝子、ならびにAAV複製、レスキュー、転写、および組込みをコードするcap遺伝子であり、cap蛋白質はAAVウイルス粒子を形成する。AAVの名前は、AAVが生産的な感染、すなわち、宿主細胞中で自己複製するために、アデノウイルスまたは他のヘルパーウイルス(例、ヘルペスウイルス)による必須の遺伝子産物の供給に依存することによる。ヘルパーウイルスがなければ、通常はアデノウイルスであるヘルパーウイルスが宿主細胞に重感染することによってレスキューされるまで、AAVは宿主細胞の染色体中にプロウイルスとして組み込まれている(Muzyczka, Curr. Top. Micor. Immunol. 158:97-127, 1992)。
遺伝子移入ベクターとしてのAAVに対する興味は、そのいくつかのユニークな生物学的特徴に起因する。AAVゲノムの両端には、逆位反復配列(ITR)として知られるヌクレオチド配列が存在し、これはウイルスの複製、レスキュー、パッケージング、および組込みに必要な、シス作用性のヌクレオチド配列を含む。
遺伝子移入にAAVを使用すると他にも利点がある。AAVの宿主範囲は広い。さらに、レトロウイルスとは異なり、AAVは静止期の細胞にも分裂期の細胞にも感染できる。また、AAVはヒトの疾病とは関連しておらず、レトロウイルス由来の遺伝子移入ベクターに対するような多くの懸念がない。最近、異なるAAV血清型に関して、別の組織向性が示された。例えば、Chaoら(Mol Ther 2000, 2:619-23)は、AAV1が骨格筋に注入されると、AAV2の場合と比べて数桁高いレベルでFIXを血中に発現できることを示した。
組み換えrAAVベクターの作製のための標準的な手法は、一連の細胞内イベントの協調を必要とする: AAV ITR配列が隣接した対象トランスジーンを含むrAAVベクターゲノムの宿主細胞へのトランスフェクション、トランスで必要とされるAAV repおよびcap蛋白質の遺伝子をコードするプラスミドによる宿主細胞のトランスフェクション、およびトランスで必要とされる非AAVヘルパー機能を供給するためのヘルパーウイルスのトランスフェクトされた細胞への感染(Muzyczka, N., Curr. Top. Micor. Immunol. 158:97-129, 1992)。アデノウイルス(または他のヘルパーウイルスの)蛋白質はAAV rep遺伝子の転写を活性化し、rep蛋白質はAAV cap遺伝子の転写を活性化する。その後cap蛋白質はITR配列を利用して、rAAVゲノムをrAAVウイルス粒子へパッケージングする。したがって、パッケージングの効率は、十分な量の構造蛋白質が利用できること、およびrAAVベクターゲノム中で必要とされるシス作用性のパッケージング配列の利用しやすさに一部は依存する。
rAAVベクターの生産を改善するための別の手法には、ヘルパーウイルスを使ってAAVヘルパー蛋白質を誘導すること(Clarkら、Gene Therapy 3:1124-1132, 1996)、ならびに、rAAVベクターおよびAAVヘルパー遺伝子の組み込まれたコピーを含む細胞株を作製して、ヘルパーウイルスが感染するとrAAV生産が始まるようにすること(Clarkら、Human Gene Therapy 6:1329-1341, 1995)が含まれる。
rAAVベクターは、rAAVベクターゲノムをコードするヌクレオチド配列を含む複製不能ヘルパーアデノウイルス(1999年1月5日発行の米国特許第5,856,152号)、またはAAVヘルパー蛋白質をコードするヌクレオチド配列を含むヘルパーアデノウイルス(1995年3月9日発行の国際公開公報第95/06743号)を用いて生産されている。AAVヘルパー遺伝子の高レベルの発現と、rAAVベクターゲノム中のシス作用性ヌクレオチド配列の最適な選択とを組み合せた生産戦略が記述されている(1997年3月13日発行の国際公開公報第97/09441号)。
したがって、ヘルパーウイルスによるrAAVベクターストックの汚染を低下させる現在の手法は、非許容温度では不活化する温度感受性ヘルパーウイルスを使用するものである(Ensignerら、J. Virol., 10:328-339, 1972)。または、非AAVヘルパー遺伝子をDNAプラスミドにサブクローニングし、rAAVベクター生産時に細胞中にトランスフェクトすることもできる(Salvettiら、Hum. Gene Ther. 9:695-706, 1998; Grimmら、Hum. Gene Ther. 9:2745-2760, 1998; 国際公開公報第97/09441号)。遺伝子療法でのAAVの使用は、例えば、米国特許第5,753,500号に記述されており、上記の全ての開示は参照として本明細書に組み入れられる。
レトロウイルスベクターは、遺伝子送達に一般的に使われる道具である(Miller, Nature (1992) 357:455-460)。レトロウイルスベクターは、広範囲の齧歯類、霊長類、およびヒトの体細胞に対して再配列していない単一コピーの遺伝子を送達できるので、細胞中へ遺伝子を移入するために非常に適している。
レトロウイルスは、ウイルスゲノムがRNAである、RNAウイルスである。宿主細胞にレトロウイルスが感染すると、ゲノムRNAはDNA中間体に逆転写され、これが感染細胞の染色体DNAに非常に効率良く組み込まれる。この組み込まれたDNA中間体は、プロウイルスと呼ばれる。プロウイルスの転写と感染性ウイルスへの集合は、適当なヘルパーウイルスの存在下、または混入ヘルパーウイルスの偶然の生産なしにキャプシド形成を可能にする適当な配列を含む細胞株中で起きる。キャプシド形成のための配列が適当なベクターのコトランスフェクションによって提供されれば、組み換えレトロウイルスの生産にヘルパーウイルスは必要ではない。
組み換えレトロウイルスベクター生産のための別の有用な道具は、感染性ビリオンを生産するために必要な蛋白質をトランスで供給するパッケージング細胞株であるが、これらの細胞は内在性のウイルスゲノム核酸をパッケージングする能力はない(WatanabeおよびTermin, Molec. Cell. Biol. (1983) 3(12):2241-2249; Mannら、Cell (1983) 33:153-159; EmbretsonおよびTemin, J. Virol. (1987) 61(9):2675-2683)。パッケージング細胞中でRCRを生成する可能性を抑えるための1つの手法は、パッケージング機能を2つのゲノムに分割することである。例えば、1つがgagおよびpol遺伝子産物を発現し、他方がenv遺伝子産物を発現するようにする(Bosselmanら、Molec. Cell. Biol. (1987) 7(5):1797-1806; Markowitzら、J. Virol. (1988) 62(4):1120-1124; DanosおよびMulligan, Proc. Natl. Acad. Sci. (1988) 85:6460-6464)。この手法では、コパッケージングおよびその後の2つのゲノムの導入が抑えられ、さらにパッケージング細胞中にRCRを産生するための3つのレトロウイルスゲノムが存在するために、組換え頻度が著しく低下できる。
レンチウイルスは、共通のレトロウイルス遺伝子gag, polおよびenvに加えて、調節または構造的な機能を持つ他の遺伝子を含む、複雑なレトロウイルスである。レンチウイルスはより複雑であるために、潜伏感染中のように、そのライフサイクルを改変することができる。典型的なレンチウイルスは、エイズの原因となるヒト免疫不全ウイルス(HIV)である。レンチウイルスベクターの他の例には、ネコ免疫不全ウイルス(FIV)、サル免疫不全ウイルス(SIV)、ウマ免疫不全ウイルス(EAIV)、およびサル泡沫状ウイルスタイプI (SFV-1)が含まれる。インビボでは、HIVは、リンパ球およびマクロファージのような、最終分化してほとんど分裂しない細胞に感染できる。インビトロでは、HIVは、単球由来マクロファージ(MDM)の初代培養、およびアフィジコリンまたはガンマ線照射によって細胞周期の停止したHeLa-Cd4もしくはTリンパ細胞に感染できる。細胞の感染は、標的細胞の核膜孔を通したHIVプレインテグレーション複合体の核内能動輸送に依存している。これは、複合体における、複数の部分的に重複した分子決定基と、標的細胞の核内輸送機構との相互作用によって起きる。同定されている決定基には、gagマトリックス(MA)蛋白質の機能的核局在化シグナル(NLS)、核親和性ビリオン関連蛋白質vpr、およびgag MA蛋白質のC末端のホスホチロシン残基が含まれる。遺伝子療法におけるレトロウイルスの使用は、例えば、米国特許第6,013,516号;および米国特許第5,994,136号に記述されており、これらの開示は参照として本明細書に組み入れられる。
核酸を細胞に送達するための他の方法は、ウイルスを使用しない。例えば、カチオン性両親媒性化合物を用いて、本発明の核酸を送達できる。生物活性のある分子の細胞内送達を促進するようにデザインされた化合物は、非極性および極性の環境と相互作用する必要があるので(例えば、形質膜、組織液、細胞内の区画、および生物活性のある分子自身)、そのような化合物は、通常、極性および非極性の両方のドメインを含むようにデザインされる。そのようなドメインの両方を持つ化合物は、両親媒性物質と呼ばれることもあり、そのような細胞内送達(インビトロの用途かインビボの用途かに関わらず)の促進のために使用されるために開示された多くの脂質および合成脂質は、この定義に当てはまる。そのような両親媒性物質のうちで1つの特に重要なクラスは、カチオン性両親媒性物質である。一般に、カチオン性両親媒性物質は、生理的pH付近で正に荷電することのできる極性基を持ち、この性質は、例えばDNAのような負に荷電したポリヌクレオチドを含む、多くの種類の生物活性のある(治療用)分子と両親媒性物質がどのように相互作用をするかを規定する上で、重要であると当技術分野では理解されている。
極性および非極性ドメインの両方を持ち、生物活性のある分子の細胞内送達に有用であると述べられたカチオン性両親媒性化合物の例は、以下の参照に記述されており、これらには、(1) 当技術分野での理解による、そのような化合物をそのような用途に適したものにする性質、および (2) 当技術分野での理解による、細胞内送達を意図する治療分子とそのような両親媒性化合物との複合体形成による構造の性質についての、有用な考察も含まれている。
(1) Felgnerら、Proc. Natl. Acad. Sci. USA 84, 7413-7417 (1987)は、N->1(2,3-ジオレイルオキシ)プロピル!-N,N,N-トリメチルアンモニウムクロライド(DOTMA)を含む正に荷電した合成カチオン性脂質を用いた、トランスフェクションに適した脂質/DNA複合体の形成を開示している。Felgnerら、The Journal of Biological Chemistry, 269(4), 2550-2561 (1994)も参照されたい。
(2) Behrら、Proc. Natl. Acad. Sci. USA 86, 6982-6986 (1989)は、ジオクタデシルアミドログリシルスペルミン(DOGS)を含む多くの両親媒性物質を開示している。
(3) Epandらに付与された米国特許第5,283,185号は、「DC-chol」と呼ばれる3.ベータ.>N-(N.sup.1,N.sup.1-ジメチルアミノエタン)カルバモイル!コレステロールを含む、両親媒性物質の別のクラスおよび分子種を記述している。
(4) 生物活性分子の細胞への輸送を促進する別の化合物は、Felgnerらに付与された米国特許第5,264,618号に開示されている。「DMRIE」1,2-ジミリスチルオキシプロピル-3-ジメチル-ヒドロキシエチルアンモニウムブロマイドを含むさらなる化合物の開示については、Felgnerら、The Journal of Biological Chemistry, 269(4), 2550-2561 (1994)も参照されたい。
(5) 生物活性分子の細胞内送達に適した両親媒性物質の参照は、Gebeyehuらに付与された米国特許第5,334,761号、およびFelgnerら、Methods (Methods in Enzymology), 5, 67-75 (1993)にも見られる。遺伝子送達のためのカチオン性両親媒性化合物を含む組成物の使用は、例えば、米国特許第5,049,386号;米国特許第5,279,833号;米国特許第5,650,096号;米国特許第5,747,471号;米国特許第5,767,099号;米国特許第5,910,487号;米国特許第5,719,131号;米国特許第5,840,710号;米国特許第5,783,565号;米国特許第5,925,628号;米国特許第5,912,239号;米国特許第5,942,634号;米国特許第5,948,925号;米国特許第6,022,874号;米国特許第5,994,317号;米国特許第5,861,397号;米国特許第5,952,916号;米国特許第5,948,767号;米国特許第5,939,401号;および米国特許第5,935,936号に記述されており、これらの開示は参照として本明細書に組み入れられる。
また、本発明の前駆体GLP-1および/またはインスリンをコードする核酸は、「裸のDNA」を用いて送達することもできる。トランスフェクション促進蛋白質、ウイルス粒子、リポソーム製剤、荷電した脂質、およびリン酸カルシウム沈殿剤と会合しておらず、プロモーターに機能的に連結された所望のポリペプチドまたはペプチドをコードする非感染性の組み込まれない核酸配列を送達する方法は、米国特許第5,580,859号;米国特許第5,963,622号;米国特許第5,910,488号に記述されており、これらの開示は参照として本明細書に組み入れられる。
ウイルスおよび非ウイルス成分を組み合せた遺伝子移入システムも報告されている。Cristianoら(1993) Proc. Natl. Acad. Sci. USA 90:11548; Wuら(1994) J. Biol. Chem. 269:11542; Wagnerら(1992) Proc. Natl. Acad. Sci. USA 89:6099; Yoshimuraら(1993) J. Biol. Chem. 268:2300; Curielら(1991) Proc. Natl. Acad. Sci. USA 88:8850; Kupferら(1994) Human Gene Ther. 5:1437; およびGottschalkら(1994) Gene Ther. 1:185。大部分の場合、アデノウイルスは、そのエンドソーム溶解性の性質を利用するために、遺伝子送達システム中に組み込まれている。ウイルスおよび非ウイルス成分の報告された組み合せには、一般に、アデノウイルスの遺伝子送達複合体への共有結合か、非結合アデノウイルスとカチオン性脂質:DNA複合体とのコインターナリゼーションのいずれかが関与している。
本明細書に記述される、インスリン、修飾インスリン、および/または前駆体GLP-1をコードするDNAベクターの「有効量」とは、投与されると生物活性のあるインスリンまたはGLP-1分子が生産され、それによって、活性化インスリンまたはGLP-1蛋白質を生産する能力のあるベクターが有効量投与されなかったときの血糖またはインスリンレベルと比較して、投与された個体中の血糖またはインスリンレベルが上昇する量である。また、個体に投与される修飾インスリンまたはGLP-1の量は、個体の体格、年齢、体重、全体的健康状態、性別、および食事を含む様々な因子によって異なる。アデノウイルスまたはAAVベクターが使用される特定の態様では、前駆体GLP-1および/またはインスリンをコードする核酸の用量は、一般に、約106から約1015粒子の範囲、より好ましくは約108から約1013粒子の範囲で、アデノウイルスまたはAAV粒子から送達できる。レトロウイルスまたはレンチウイルスベクターが使用される特定の態様では、修飾インスリンまたは前駆体GLP-1をコードする核酸の用量は、一般に、約104から約1013粒子の範囲、より好ましくは約106から約1011粒子の範囲で、レトロウイルスまたはレンチウイルス粒子から送達できる。核酸がプラスミドDNAの形で送達されるときには、有用な量は一般にDNA約1μgから約1 gの範囲、より好ましくはDNA約100μgから約100 mgの範囲である。熟練した臨床家は、インスリンまたはGLP-1の特定の血漿濃度を達成するために発現レベルに基づいて、適当な投与量を決定することもできる。正常な空腹時血漿レベルは約15 pMである。したがって、本発明で使用される修飾GLP-1および/またはインスリンをコードする核酸の量は、1日あたり約200〜500μgのGLP-1発現、または5〜12.5μg/日のDPPIV抵抗性アナログを達成するように調節できる。実施例で示すように、GLP-1発現は、Valentis GeneSwitch 4.0発現ベクター(例えば、図17を参照されたい)のような既知の技術を用いてコントロールできる。また、インスリンまたはGLP-1の血漿濃度を測定する方法は当技術分野で周知であり、投与療法を適当にモニターおよび/または調節するために使用できる。
修飾インスリンまたは前駆体GLP-1をコードするベクターは、様々な投与経路を用いて投与できる。例えば、修飾インスリンまたはGLP-1は、静脈内、非経口的に、筋肉内、皮下、経口、経鼻、吸入、移植、注射、および/または座薬によって投与できる。組成物は、望ましい効果を提供するように、一定期間内に単回、または複数回投与できる。
上述の態様により、GLP-1は、静脈内、筋肉内、門脈内、または他の投与経路にってベクターを導入すると、インビボで同じ細胞中で発現する。
本発明は、本明細書に記述される修飾インスリンまたは前駆体GLP-1をコードするベクターを含む組成物(例、薬学的組成物)も提供する。1つの態様では、インスリンまたは前駆体GLP-1は、修飾インスリンまたはGLP-1の活性化切断部位におけるフリンによる前駆体切断のためのシグナルをコードするアミノ酸配列を含む。本明細書に記述される組成物は、薬学的に許容されるキャリアも含みうる。「薬学的に許容されるキャリア」または「キャリア」という用語は、比較的不活性で非毒性の、任意の一般に許容されている賦形剤または薬剤送達装置を指す。キャリアの例には、炭酸カルシウム、スクロース、デキストロース、マンノース、アルブミン、でんぷん、セルロース、シリカゲル、ポリエチレングリコール(PEG)、乾燥スキムミルク、米粉、ステアリン酸マグネシウム等が含まれる。
他の適当なキャリア(例、薬学的キャリア)には、無菌水、塩溶液(リンゲル液など)、アルコール、ゼラチン、ラクトース、アミロース、またはでんぷんのような炭水化物、タルク、珪酸、粘性パラフィン、脂肪酸エステル、ヒドロキシメチルセルロース、ポリビニルピロリドン等が含まれるがこれらに限定されない。そのような調製物は滅菌でき、必要ならば、修飾GLP-1および/またはインスリンをコードするDNAベクターと有害な反応をしない補助剤、例えば、潤滑剤、保存剤、安定化剤、湿潤剤、乳化剤、浸透圧に影響を与えるための塩、緩衝液、着色剤および/または芳香剤等と混合することができる。修飾GLP-1および/またはインスリンをコードするDNAベクターを投与するためには、キャリア(例、薬学的に許容されるキャリア)は好ましいが、必要ではない。適当な製剤およびさらなるキャリアは、レミントンの薬学(Remington’s Pharmaceutical Sciences)(17版、Mack Publ. Co., Easton, PA)に記述されており、その教示は全体が参照として本明細書に組み入れられる。
本発明は、インビボにおいてインスリンまたはGLP-1aを生成する修飾インスリンまたは前駆体GLP-1をコードする核酸を含む発現ベクターにも関する。1つの態様では、核酸配列は、修飾インスリンまたは前駆体GLP-1の活性化切断部位におけるフリンによる前駆体切断のためのシグナルを含むアミノ酸配列をコードする。
本発明は、インビボで生物活性のあるインスリンまたはGLP-1を生成する、修飾インスリンまたは前駆体GLP-1をコードする核酸を含むベクター、ウイルス、および宿主細胞にも関する。1つの態様では、核酸配列は、修飾インスリンまたはGLP-1の活性化切断部位におけるフリンによる前駆体切断のためのシグナルを含むアミノ酸配列をコードする。別の態様では、核酸コンストラクトは、前駆体GLP-1および/またはインスリンをコードする発現コンストラクトを含み、第1の発現コンストラクトは、ヒトGLP-1のアミノ酸1-37または他のバリアント、およびリーダー配列を含む。
他の態様には、1つまたは複数のプロモーターに機能的に連結したインスリンをコードする核酸を含む、ベクター、ウイルス、および宿主細胞が含まれる。例えば、1)体の組織または領域に特異的;2) 構成性;3) グルコース応答性;および/または4) 誘導可能/調節可能な、プロモーターが使用できる。適当なプロモーターには、サイトメガロウイルス(CMV)プロモーター、ユビキチンプロモーター(Cubi)に連結したCMVエンハンサー、筋肉特異的プロモーター(Souzaら、Molec.Ther., 5(5) part 2:S409 (2002年6月))、肝臓特異的プロモーター(国際公開公報第01/36620号)、ならびに免疫抑制剤FK506およびラパマイシンに基づくダイメライザー遺伝子制御システム、エクジソン遺伝子制御システム、およびテトラサイクリン遺伝子制御システムのような条件的プロモーターが含まれる。プロモーターの他の例には、グルコース-6-ホスファターゼプロモーター、肝臓型ピルビン酸キナーゼプロモーター、スポット14プロモーター、アセチルCoAカルボキシラーゼプロモーターが含まれる。好ましい態様では、本発明のベクター、ウイルス、宿主細胞はさらに、アルドラーゼエンハンサー、グルコース誘導応答要素:Cho応答要素;脂肪酸シンターゼ;プロトロンビン;α-1-ミクログロブリン;およびグルコース-6-ホスファターゼからなる群より選択される1つまたは複数のエンハンサーに機能的に連結していてもよい。
本発明のベクター、コンストラクト、およびウイルスは、H411E細胞のような肝癌細胞で解析できる。
実施例
実施例1 GLP-1発現コンストラクト
GLP-1のクローニング:
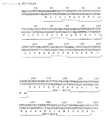
GLY-8修飾ヒトGLP-1(GLP-1-Gly-8)に連結された分泌ヒトアルカリホスファターゼ(SEAP)(Genbankアクセッション番号CAA02290)から得られたシグナルペプチドをコードするヌクレオチド配列は、重複する合成オリゴヌクレオチドの連結によって作製された。図1に示されるこの配列は、コドン最適化し、CMVプロモーター、イントロン、およびSV40ポリアデニル化シグナルを含むPromegaのpCI発現ベクターのEcoRIおよびKpnI部位にクローニングし、pCISEAPGLP-Gly-8が作製された。SEAPのシグナルペプチドは、ハイブリッドペプチドを、分泌、およびSEAP/GLP-1結合部におけるシグナルペプチダーゼによるプロセッシングの標的にする。
実施例1 GLP-1発現コンストラクト
GLP-1のクローニング:
GLY-8修飾ヒトGLP-1(GLP-1-Gly-8)に連結された分泌ヒトアルカリホスファターゼ(SEAP)(Genbankアクセッション番号CAA02290)から得られたシグナルペプチドをコードするヌクレオチド配列は、重複する合成オリゴヌクレオチドの連結によって作製された。図1に示されるこの配列は、コドン最適化し、CMVプロモーター、イントロン、およびSV40ポリアデニル化シグナルを含むPromegaのpCI発現ベクターのEcoRIおよびKpnI部位にクローニングし、pCISEAPGLP-Gly-8が作製された。SEAPのシグナルペプチドは、ハイブリッドペプチドを、分泌、およびSEAP/GLP-1結合部におけるシグナルペプチダーゼによるプロセッシングの標的にする。
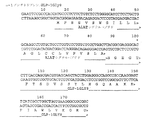
GLP-1のコード配列も、他のリーダー配列に連結された。pCISEAPGLP-Gly-8は、SEAPリーダーおよびGLP-1配列の一部を除去するEcoRIおよびBtrIで切断した。この配列は、プロエキセンディン-4(アミノ酸1-42)(Genbankアクセッション番号P26349)のリーダーおよびGLP-1の欠落した部分を含む、重複したオリゴヌクレオチドによって作製された断片で置換された。図2に示すプロエキセンディン/GLP-1-Gly-8ハイブリッドの配列は、コドン最適化されている。また、プロエキセンディン-4配列は、GLP-1結合部で修飾され、コンセンサスフリン切断部位(Lys-Arg-X-Lys-Arg)を含んでいる。
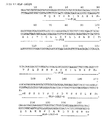
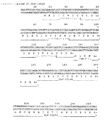
プロエキセンディン-4について説明された戦略を用いて、GLP-1-Gly8のコード配列を他のリーダー配列に連結した。プロヘロデルミン(J. Biol. Chem. 273(16):9778-9784 (1998))、プログルコース依存性インスリン分泌刺激ポリペプチド(GIP)(Genbankアクセッション番号P09681)、およびプロインスリン様成長因子1(IGF1)(Genbankアクセッション番号IGHUI)のリーダー配列を含む重複するオリゴヌクレオチドを、コンセンサスフリン切断部位を介してGLP-1-Gly8に連結した。プロヘロデルミン(アミノ酸1-41)、プロGIP(アミノ酸1-46)、およびプロIGF1(アミノ酸1-48)の配列は、コドン最適化した。
プレプログルカゴン(アミノ酸1-20)(Genbankアクセッション番号P01275)、α-1アンチトリプシン(アミノ酸1-24)(Genbankアクセッション番号P01009)、およびインスリン様成長因子I(アミノ酸1-48)(Genbankアクセッション番号IGHUI)のシグナルペプチドを含む重複するオリゴヌクレオチドは、GLP-1-Gly8に連結された。これらのシグナルペプチドは、ハイブリッドペプチドを、分泌、およびGLP-1結合部におけるシグナルペプチダーゼによるプロセッシングの標的にする。
前駆体から活性GLP-1を生成するために、フリンに加えて他のプロセッシング部位も使用された。ヒト第IX因子(Genbankアクセッション番号P00740)のアミノ酸1-46は、シグナルペプチドおよびプロホルモンコンバターゼの切断部位を含む。重複するオリゴヌクレオチドを用いて、この配列をEcoRI/BtrI消化したGLP-1ベクターに挿入した。インスリン様成長因子Iは、アミノ酸71においてプロホルモンコンバターゼによって切断される。このプロセッシング部位(アミノ酸63-71)は、エキセンディン-4/GLP-1コンストラクトのフリン切断部位の代わりに挿入された。
細胞株中でのGLP-1生産
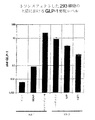
上述のクローンは、ヒト胚性腎細胞株である293細胞の、リン酸カルシウムによるトランスフェクションを用いて検定した。トランスフェクション後3日目に、細胞から培地中に分泌されるGLP-1の量を、ラジオイムノアッセイ(RIA)を用いて定量した。このアッセイは、限られた量のGLP-1特異的抗体に対する、標識I125 GLP-1と培地中に存在するGLP-1との競合する結合に基づく。図12は、全てのコンストラクトが、バックグラウンドの少なくとも10倍のレベルで、GLP-1を発現することを示す。SEAPコンストラクトのGLP-1発現量が最も少なく、他のコンストラクトは有意に高いレベルでGLP-1を発現した。
上述のクローンは、ヒト胚性腎細胞株である293細胞の、リン酸カルシウムによるトランスフェクションを用いて検定した。トランスフェクション後3日目に、細胞から培地中に分泌されるGLP-1の量を、ラジオイムノアッセイ(RIA)を用いて定量した。このアッセイは、限られた量のGLP-1特異的抗体に対する、標識I125 GLP-1と培地中に存在するGLP-1との競合する結合に基づく。図12は、全てのコンストラクトが、バックグラウンドの少なくとも10倍のレベルで、GLP-1を発現することを示す。SEAPコンストラクトのGLP-1発現量が最も少なく、他のコンストラクトは有意に高いレベルでGLP-1を発現した。
他のコンストラクト
GLP-1は、プレプログルカゴン、インスリン様成長因子I (IGF-I)、およびα1アンチトリプシンのシグナルペプチドにも連結された。エキセンディン4コンストラクトと同様で、分泌のためにプロホルモンコンバターゼによる切断を必要とする発現ベクターも調製された。エキセンディン4コンストラクトは、フリンによる切断用に最適化されており、筋肉での発現には理想的ではない可能性がある。これらの他のコンストラクトは、異なるプロホルモンコンバターゼ切断部位を含む。1つのコンストラクトは、エキセンディン4ベクターのフリン切断部位を、IGF-IのDとEドメインの間に見られるプロセッシング部位に変化させている。他はヒト第IX因子のリーダー配列とGLP-1との融合物である。図11を参照されたい。
GLP-1は、プレプログルカゴン、インスリン様成長因子I (IGF-I)、およびα1アンチトリプシンのシグナルペプチドにも連結された。エキセンディン4コンストラクトと同様で、分泌のためにプロホルモンコンバターゼによる切断を必要とする発現ベクターも調製された。エキセンディン4コンストラクトは、フリンによる切断用に最適化されており、筋肉での発現には理想的ではない可能性がある。これらの他のコンストラクトは、異なるプロホルモンコンバターゼ切断部位を含む。1つのコンストラクトは、エキセンディン4ベクターのフリン切断部位を、IGF-IのDとEドメインの間に見られるプロセッシング部位に変化させている。他はヒト第IX因子のリーダー配列とGLP-1との融合物である。図11を参照されたい。
構成的に活性なプロモーターを含む発現ベクターも、プラスミドおよびアデノウイルスの形の両方で、作製された。これらには、伸長因子1αプロモーター、ユビキチンプロモーターに連結したCMVエンハンサー、およびCMVエンハンサー/プロモーターのCpG低下型が含まれる。
GLP-1は、Bgl IIおよびHindIIIによってpCIEX4GLP-1Gly8を消化することによって、CMVプロモーターを除去して、伸長因子1αプロモーターの制御下に置かれた。伸長因子1αプロモーターは、InvitrogenベクターpEF6/V5-His-TOPOからBgl IIおよびHindIIIを用いて切り出し、消化したpCIベクターに挿入し、pEF1αGLP-Gly8を作製した。
細胞株におけるGLP-1の生産
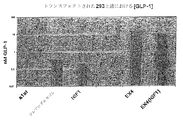
マウス筋芽細胞株であるC2C12細胞を、293細胞と同様の方法でトランスフェクションした。簡単に述べると、3 x 10⁶細胞を10cmディッシュに播き、リン酸カルシウム沈殿法を用いて翌日にトランスフェクトした。293細胞については、トランスフェクション後3日目に、細胞上清のGLP-1レベルを測定した。C2C12細胞については、トランスフェクションの翌日に培地を10%ウシ胎児血清から3%ウマ血清に変更した。これにより細胞は融合し、骨格筋と類似した伸長した筋管になった。トランスフェクションの1週間後にGLP-1レベルを測定した。図13は、トランスフェクトしたヒト胚性腎細胞である293細胞の培地中のGLP-1濃度を示す。異なるリーダー配列を用いると、分泌されるGLP-1の量が劇的に異なる。図14は、マウス筋細胞株であるC2C12細胞の培地中のGLP-1濃度を示す。フリン切断部位よりも、IGF-Iのプロセシング部位の方が、分泌されるGLP-1の量は多い。第IX因子コンストラクトは、これらの細胞から検出可能な量のGLP-1を分泌しなかった。
マウス筋芽細胞株であるC2C12細胞を、293細胞と同様の方法でトランスフェクションした。簡単に述べると、3 x 10⁶細胞を10cmディッシュに播き、リン酸カルシウム沈殿法を用いて翌日にトランスフェクトした。293細胞については、トランスフェクション後3日目に、細胞上清のGLP-1レベルを測定した。C2C12細胞については、トランスフェクションの翌日に培地を10%ウシ胎児血清から3%ウマ血清に変更した。これにより細胞は融合し、骨格筋と類似した伸長した筋管になった。トランスフェクションの1週間後にGLP-1レベルを測定した。図13は、トランスフェクトしたヒト胚性腎細胞である293細胞の培地中のGLP-1濃度を示す。異なるリーダー配列を用いると、分泌されるGLP-1の量が劇的に異なる。図14は、マウス筋細胞株であるC2C12細胞の培地中のGLP-1濃度を示す。フリン切断部位よりも、IGF-Iのプロセシング部位の方が、分泌されるGLP-1の量は多い。第IX因子コンストラクトは、これらの細胞から検出可能な量のGLP-1を分泌しなかった。
インビボでのGLP-1生産
BALBcマウスは、Mirus社のTrans IT遺伝子送達システムを用いて、大容量尾静脈注射の方法によって、10μgのGLP-1発現プラスミドで形質導入した。動物に、CMVプロモーターを用いるGLP-1ベクターのpCIシリーズを注射した。翌日に動物の目から採血し、血漿を調製した。血漿中に存在するGLP-1の量は、ラジオイムノアッセイ(RIA)(Peninsula Laboratories、カタログ番号RIK 7123)を用いて決定した。
BALBcマウスは、Mirus社のTrans IT遺伝子送達システムを用いて、大容量尾静脈注射の方法によって、10μgのGLP-1発現プラスミドで形質導入した。動物に、CMVプロモーターを用いるGLP-1ベクターのpCIシリーズを注射した。翌日に動物の目から採血し、血漿を調製した。血漿中に存在するGLP-1の量は、ラジオイムノアッセイ(RIA)(Peninsula Laboratories、カタログ番号RIK 7123)を用いて決定した。
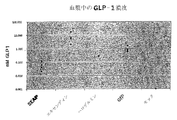
図15は、大容量尾静脈注射によってGLP-1発現プラスミドで形質導入されたマウスのGLP-1血漿濃度を示す。大容量尾静脈注射によって、主に肝臓の形質導入が見られる。使用したベクターパネルには本明細書に記述されたベクターが含まれ、転写はCMVプロモーターに制御された。これらの試料は、注射の24時間後に採集された。相対的な生産レベルは、トランスフェクトされた293細胞と相似していた。
GLP-1を介する血糖値の修正
マウスdb/db肥満株は、レプチン受容体に変異を持ち、3〜4週齢あたりで明らかに肥満となり、8週齢までに血糖値の劇的な上昇を示す。10週齢のdb/dbまたはその痩せた同腹子に、10μgのGLP-1発現プラスミドまたは対照の分泌アルカリホスファターゼ(SEAP)発現プラスミドを注射した。大容量注射は、Muris trans-ITシステムを使用する代わりに、2.5 mlの生理食塩水中でDNAを注射した以外は、上記と同様に行われた。プラスミドは、ユビキチンプロモーター(Cubi; US20020090719 A1; US 2001952152)に連結したヒトCMVエンハンサーから構成されるハイブリッドプロモーターの制御下のエキセンディン-4 GLP-1Gly8遺伝子、およびユビキチン遺伝子から得られるイントロンを含んでいた。エキセンディン-4 GLP-1遺伝子は、Sca-Not I断片として切り出し、片端を平滑にしたCUbi (US 20020090719 A1; US 2001952152)のNot I部位にクローニングした。マウスの血糖レベルは、手持ち式グルコメーターを用いて注射の前の週にモニターした。血糖値は、注射後、定期的にモニターした。GLP-1レベルは、注射後2日目および14日目に、目から採血後RIAによってモニターした。レベルは4〜10 nMの範囲で安定していた。
マウスdb/db肥満株は、レプチン受容体に変異を持ち、3〜4週齢あたりで明らかに肥満となり、8週齢までに血糖値の劇的な上昇を示す。10週齢のdb/dbまたはその痩せた同腹子に、10μgのGLP-1発現プラスミドまたは対照の分泌アルカリホスファターゼ(SEAP)発現プラスミドを注射した。大容量注射は、Muris trans-ITシステムを使用する代わりに、2.5 mlの生理食塩水中でDNAを注射した以外は、上記と同様に行われた。プラスミドは、ユビキチンプロモーター(Cubi; US20020090719 A1; US 2001952152)に連結したヒトCMVエンハンサーから構成されるハイブリッドプロモーターの制御下のエキセンディン-4 GLP-1Gly8遺伝子、およびユビキチン遺伝子から得られるイントロンを含んでいた。エキセンディン-4 GLP-1遺伝子は、Sca-Not I断片として切り出し、片端を平滑にしたCUbi (US 20020090719 A1; US 2001952152)のNot I部位にクローニングした。マウスの血糖レベルは、手持ち式グルコメーターを用いて注射の前の週にモニターした。血糖値は、注射後、定期的にモニターした。GLP-1レベルは、注射後2日目および14日目に、目から採血後RIAによってモニターした。レベルは4〜10 nMの範囲で安定していた。
図16は、II型糖尿病の治療におけるGLP-1発現ベクターの有効性の最初の検定を示す。db/dbマウスはマウスの肥満株で、劇的に上昇した血糖レベルを持ち、II型糖尿病のモデルとして広く使われている。図16は、CMVエンハンサー/ユビキチンプロモーターの制御下にあるエキセンディン4 GLP-1をコードするプラスミドDNAの大容量注射で処理された、肥満db/dbマウスまたはその痩せた同腹子の血糖レベルを示す。対照群のマウスには、分泌アルカリホスファターゼ(SEAP)発現ベクターを注射した。GLP-1発現ベクターは、肥満および痩せたマウスの両方の血糖レベルを下げたが、明らかな副作用は見られなかった。GLP-1を投与された肥満マウスの糖レベルは、短期間の間、正常値まで下がり、数週間はSEAP注射群よりも有意に低いレベルが続いた。
誘導可能なGLP-1発現:
エキセンディン-4 GLP-1Gly8遺伝子は、Valentis GeneSwitchベクターpVC1673に挿入した。このプラスミドは、GLP-1発現を、ミフェプリストンで誘導可能なプロモーターの制御下に置く。このプロモーターは、E1b TATAボックスに連結した6つのGAL4結合部位からなる。このプラスミドは、Valentis GeneSwitch 4.0発現ベクターと共に、293細胞にコトランスフェクションした。このベクターにコードされている転写アクチベーターは、酵母GAL4 DNA結合ドメイン、切断型ヒトプロゲステロン受容体リガンド結合ドメイン、およびヒトNFκBサブユニットp65から得られる転写活性化ドメインを含む。細胞は、リン酸カルシウム沈殿法によってトランスフェクトした。トランスフェクションの24時間後に、細胞を種々の量のミフェプリストンで処理した。ミフェプリストン処理の24時間後に、RIAによって細胞上清のGLP-1レベルを測定した。
エキセンディン-4 GLP-1Gly8遺伝子は、Valentis GeneSwitchベクターpVC1673に挿入した。このプラスミドは、GLP-1発現を、ミフェプリストンで誘導可能なプロモーターの制御下に置く。このプロモーターは、E1b TATAボックスに連結した6つのGAL4結合部位からなる。このプラスミドは、Valentis GeneSwitch 4.0発現ベクターと共に、293細胞にコトランスフェクションした。このベクターにコードされている転写アクチベーターは、酵母GAL4 DNA結合ドメイン、切断型ヒトプロゲステロン受容体リガンド結合ドメイン、およびヒトNFκBサブユニットp65から得られる転写活性化ドメインを含む。細胞は、リン酸カルシウム沈殿法によってトランスフェクトした。トランスフェクションの24時間後に、細胞を種々の量のミフェプリストンで処理した。ミフェプリストン処理の24時間後に、RIAによって細胞上清のGLP-1レベルを測定した。
図17は、Valentis GeneSwitchシステムを用いたGLP-1の誘導可能な発現を示す。エキセンディン4 GLP-1コンストラクトは、ミフェプリストンで誘導可能なプロモーターの転写制御下におかれた。GLP-1ベクターおよびGeneSwitchベクターは、293細胞にコトランスフェクションし、その後、ミフェプリストンの濃度を上昇させて誘導した。上清中のGLP-1の量は、ホルモン添加の24時間後に測定した。
実施例2 インスリン発現カセットのクローニング
ラットプレプロインスリンI cDNAは、Sprague-Dawleyラットの膵臓cDNA(Clontech)からPCRで増幅し、EcoRI断片としてpSP70 (Promega)にクローニングし、pSP70.rppinsを作製した。ラットプレプロインスリンのC/A結合部は、すでにフリンによる切断部位を含んでいるため、この部位はさらに修飾しなかった。B/C結合部は、pSP70.rppinsからBsmFIおよびPpuMIを用いて結合部を除去し、フリンによる切断部位を含む結合部をコードするアニーリングした合成オリゴヌクレオチドにより、この配列を置換した。
オリゴヌクレオチド配列:
ラットプレプロインスリンI cDNAは、Sprague-Dawleyラットの膵臓cDNA(Clontech)からPCRで増幅し、EcoRI断片としてpSP70 (Promega)にクローニングし、pSP70.rppinsを作製した。ラットプレプロインスリンのC/A結合部は、すでにフリンによる切断部位を含んでいるため、この部位はさらに修飾しなかった。B/C結合部は、pSP70.rppinsからBsmFIおよびPpuMIを用いて結合部を除去し、フリンによる切断部位を含む結合部をコードするアニーリングした合成オリゴヌクレオチドにより、この配列を置換した。
オリゴヌクレオチド配列:
pCIベクター(Promega)は、NheIおよびBglIIで切断し、CMVプロモーターとイントロンを除去した。これらの配列は、クローニング用ポリリンカーを含むアニーリングしたオリゴヌクレオチドで置換した。
オリゴヌクレオチド配列:
得られたベクターpCIlinkerは、ポリリンカー配列の後にSV40ポリアデニル化シグナルを含んでいる。修飾されたラットプレプロインスリンcDNAは、pCIlinkerにクローニングし、pCI-rppinsを作製した。
オリゴヌクレオチド配列:
グルコースおよびインスリン応答性ラットグルコース-6ホスファターゼプロモーター(-1309から+68)は、HindIII-SphI断片としてPCR増幅し、pCI-rppinsのHindIII-SphI部位にサブクローニングしてPCIG-6-Prppinsを作製した。2コピーのアルドラーゼエンハンサー(+1916から+2329)をG-6-Pプロモーターの5’にクローニングし、pCIAld(2)G-6-Prppinsを作製した。
本明細書に引用される全ての出版物の開示は、本明細書に含まれる開示のための参照として本明細書に組み入れられる。
本発明は、その好ましい態様に関して特に示され、説明されているが、付属の請求の範囲にカバーされる本発明の範囲を逸脱することなく、形式および詳細に様々な変更が施されることは、当業者には理解されるだろう。
Claims (22)
- 異種シグナル配列に連結された哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1(GLP-1)をコードする単離された核酸。
- 核酸によってコードされたGLP-1が配列番号:21のアミノ酸配列を持つ、請求項1記載の単離された核酸。
- GLP-1が修飾GLP-1である、請求項1記載の単離された核酸。
- 核酸によってコードされた修飾GLP-1が、位置8のアラニンがグリシンで置換されたアミノ酸配列(配列番号:21)を持つ、請求項3記載の単離された核酸。
- 核酸によってコードされた修飾GLP-1が、以下のものからなる群より選択されるアミノ酸配列を持つ、請求項3記載の単離された核酸:
- 異種シグナル配列が、シグナルペプチド配列およびリーダー配列からなる群より選択される、請求項1記載の単離された核酸。
- リーダー配列が、サイトカイン、成長因子、コロニー刺激因子、凝固因子、(PACAP)/グルカゴンスーパーファミリー、および血清蛋白質からなる群より選択される蛋白質に由来する、請求項6記載の単離された核酸。
- 異種シグナル配列が、分泌ヒトアルカリホスファターゼ(SEAP)シグナルペプチド配列、プロエキセンディン-4リーダー配列、プロヘロデルミンリーダー配列、プログルコース依存性インスリン分泌刺激ポリペプチド(GIP)リーダー配列、プロインスリン成長因子1 (IGF1)リーダー配列、プレプログルカゴンリーダー配列、α-1アンチトリプシンリーダー配列、およびインスリン様成長因子1からなる群より選択される、請求項6記載の単離された核酸。
- 異種シグナル配列が、フリン切断部位を含む、請求項1記載の単離された核酸。
- フリン切断部位が、Arg-X-Lys-Arg(配列番号:34)、Arg-X-Arg-Arg(配列番号:35)、Lys/Arg-Arg-X-Lys/Arg-Arg(配列番号:36)、およびArg-X-X-Arg(配列番号:37)からなる群より選択されるペプチドをコードする、請求項9記載の単離された核酸。
- 異種シグナル配列がプロホルモンコンバターゼ(PC)切断部位を含む、請求項1記載の単離された核酸。
- a) 配列番号:1;
b) 配列番号:3;
c) 配列番号:5;
d) 配列番号:7;
e) 配列番号:9;
f) 配列番号:11;
g) 配列番号:13;
h) 配列番号:15;
i) 配列番号:17;および
j) 配列番号:19
からなる群より選択される、請求項1記載の単離された核酸。 - 前駆体GLP-1が、
a) 配列番号:2;
b) 配列番号:4;
c) 配列番号:6;
d) 配列番号:8;
e) 配列番号:10;
f) 配列番号:12;
g) 配列番号:14;
h) 配列番号:16;
i) 配列番号:18;および
j) 配列番号:20
からなる群より選択されるアミノ酸配列を持つ、請求項1記載の単離された核酸。 - 請求項12に記載の核酸によってコードされる単離されたポリペプチド。
- 異種シグナル配列に連結された哺乳類GLP-1を含む単離された前駆体グルカゴン様ペプチド1 (GLP-1)。
- a) 配列番号:2;
b) 配列番号:4;
c) 配列番号:6;
d) 配列番号:8;
e) 配列番号:10;
f) 配列番号:12;
g) 配列番号:14;
h) 配列番号:16;
i) 配列番号:18;および
j) 配列番号:20
からなる群より選択されるアミノ酸配列を持つ、請求項15記載の単離された前駆体グルカゴン様ペプチド1 (GLP-1)。 - 請求項1記載の核酸を含む発現ベクター。
- 請求項1記載の核酸を含む単離された宿主細胞。
- 異種シグナル配列に連結された哺乳類GLP-1を含む前駆体グルカゴン様ペプチド1 (GLP-1)をコードする核酸の有効量を個体に投与する段階を含む、それを必要とする個体中でインスリン産生を促進する方法であって、前駆体GLP-1がインビボまたはエクスビボで切断された結果、個体中で活性化GLP-1が生成する方法。
- 個体が、I型糖尿病およびII型糖尿病からなる群より選択される血糖障害を持つ、請求項19記載の方法。
- 前駆体GLP-1をコードする核酸が、ウイルスベクター中で投与される、請求項20記載の方法。
- 前駆体GLP-1をコードする核酸が、裸のDNAとして投与される、請求項20記載の方法。
Applications Claiming Priority (2)
| Application Number | Priority Date | Filing Date | Title |
|---|---|---|---|
| US31098201P | 2001-08-08 | 2001-08-08 | |
| PCT/US2002/025227 WO2003014318A2 (en) | 2001-08-08 | 2002-08-07 | Methods for treating diabetes and other blood sugar disorders |
Publications (1)
| Publication Number | Publication Date |
|---|---|
| JP2005509409A true JP2005509409A (ja) | 2005-04-14 |
Family
ID=23204873
Family Applications (1)
| Application Number | Title | Priority Date | Filing Date |
|---|---|---|---|
| JP2003519448A Pending JP2005509409A (ja) | 2001-08-08 | 2002-08-07 | 糖尿病および他の血糖疾患の治療方法 |
Country Status (5)
| Country | Link |
|---|---|
| US (1) | US20040002468A1 (ja) |
| EP (1) | EP1572885A2 (ja) |
| JP (1) | JP2005509409A (ja) |
| AU (1) | AU2002327430A1 (ja) |
| WO (1) | WO2003014318A2 (ja) |
Cited By (23)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2010528614A (ja) * | 2007-06-01 | 2010-08-26 | ベーリンガー インゲルハイム インターナショナル ゲゼルシャフト ミット ベシュレンクテル ハフツング | グルカゴン様ペプチド−1(glp−1)をコードする修飾ヌクレオチド配列 |
| JP2016523082A (ja) * | 2013-06-17 | 2016-08-08 | ザ・ブロード・インスティテュート・インコーポレイテッド | 分裂終了細胞の疾患および障害をターゲティングおよびモデリングするための系、方法および組成物の送達、エンジニアリングおよび最適化 |
| JP2016524472A (ja) * | 2013-06-17 | 2016-08-18 | ザ・ブロード・インスティテュート・インコーポレイテッド | 肝臓ターゲティングおよび治療のためのCRISPR−Cas系、ベクターおよび組成物の送達および使用 |
| JP2017527256A (ja) * | 2013-12-12 | 2017-09-21 | ザ・ブロード・インスティテュート・インコーポレイテッド | HBV及びウイルス性疾患及び障害のためのCRISPR−Cas系及び組成物の送達、使用及び治療適用 |
| JP2018523477A (ja) * | 2015-08-06 | 2018-08-23 | ザ・トラステイーズ・オブ・ザ・ユニバーシテイ・オブ・ペンシルベニア | Glp−1及び代謝性疾患を治療するための組成物におけるその使用 |
| US10494621B2 (en) | 2015-06-18 | 2019-12-03 | The Broad Institute, Inc. | Crispr enzyme mutations reducing off-target effects |
| US10550372B2 (en) | 2013-12-12 | 2020-02-04 | The Broad Institute, Inc. | Systems, methods and compositions for sequence manipulation with optimized functional CRISPR-Cas systems |
| US10696986B2 (en) | 2014-12-12 | 2020-06-30 | The Board Institute, Inc. | Protected guide RNAS (PGRNAS) |
| US10711285B2 (en) | 2013-06-17 | 2020-07-14 | The Broad Institute, Inc. | Optimized CRISPR-Cas double nickase systems, methods and compositions for sequence manipulation |
| US10781444B2 (en) | 2013-06-17 | 2020-09-22 | The Broad Institute, Inc. | Functional genomics using CRISPR-Cas systems, compositions, methods, screens and applications thereof |
| US10851357B2 (en) | 2013-12-12 | 2020-12-01 | The Broad Institute, Inc. | Compositions and methods of use of CRISPR-Cas systems in nucleotide repeat disorders |
| US10930367B2 (en) | 2012-12-12 | 2021-02-23 | The Broad Institute, Inc. | Methods, models, systems, and apparatus for identifying target sequences for Cas enzymes or CRISPR-Cas systems for target sequences and conveying results thereof |
| US10946108B2 (en) | 2013-06-17 | 2021-03-16 | The Broad Institute, Inc. | Delivery, use and therapeutic applications of the CRISPR-Cas systems and compositions for targeting disorders and diseases using viral components |
| US11008588B2 (en) | 2013-06-17 | 2021-05-18 | The Broad Institute, Inc. | Delivery, engineering and optimization of tandem guide systems, methods and compositions for sequence manipulation |
| US11041173B2 (en) | 2012-12-12 | 2021-06-22 | The Broad Institute, Inc. | Delivery, engineering and optimization of systems, methods and compositions for sequence manipulation and therapeutic applications |
| JP2021518154A (ja) * | 2018-04-18 | 2021-08-02 | グラクソスミスクライン、インテレクチュアル、プロパティー、ディベロップメント、リミテッドGlaxosmithkline Intellectual Property Development Limited | パルボウイルスベクターの産生 |
| US11155795B2 (en) | 2013-12-12 | 2021-10-26 | The Broad Institute, Inc. | CRISPR-Cas systems, crystal structure and uses thereof |
| US11407985B2 (en) | 2013-12-12 | 2022-08-09 | The Broad Institute, Inc. | Delivery, use and therapeutic applications of the CRISPR-Cas systems and compositions for genome editing |
| US11578312B2 (en) | 2015-06-18 | 2023-02-14 | The Broad Institute Inc. | Engineering and optimization of systems, methods, enzymes and guide scaffolds of CAS9 orthologs and variants for sequence manipulation |
| WO2024071382A1 (ja) * | 2022-09-30 | 2024-04-04 | 株式会社セルージョン | Glp-1分泌機能を有する多能性幹細胞及び幹細胞から分化誘導された細胞 |
| US12421506B2 (en) | 2013-12-12 | 2025-09-23 | The Broad Institute, Inc. | Engineering of systems, methods and optimized guide compositions with new architectures for sequence manipulation |
| US12435320B2 (en) | 2014-12-24 | 2025-10-07 | The Broad Institute, Inc. | CRISPR having or associated with destabilization domains |
| US12454687B2 (en) | 2012-12-12 | 2025-10-28 | The Broad Institute, Inc. | Functional genomics using CRISPR-Cas systems, compositions, methods, knock out libraries and applications thereof |
Families Citing this family (44)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| FR2686899B1 (fr) | 1992-01-31 | 1995-09-01 | Rhone Poulenc Rorer Sa | Nouveaux polypeptides biologiquement actifs, leur preparation et compositions pharmaceutiques les contenant. |
| US6926898B2 (en) | 2000-04-12 | 2005-08-09 | Human Genome Sciences, Inc. | Albumin fusion proteins |
| WO2005003296A2 (en) | 2003-01-22 | 2005-01-13 | Human Genome Sciences, Inc. | Albumin fusion proteins |
| CA2841097A1 (en) | 2001-12-21 | 2003-07-24 | Human Genome Sciences, Inc. | Albumin and g-csf fusion proteins |
| US7141240B2 (en) * | 2002-03-12 | 2006-11-28 | Cedars-Sinai Medical Center | Glucose-dependent insulin-secreting cells transfected with a nucleotide sequence encoding GLP-1 |
| US7025791B2 (en) * | 2002-12-02 | 2006-04-11 | Gi Dynamics, Inc. | Bariatric sleeve |
| US20040242568A1 (en) | 2003-03-25 | 2004-12-02 | Syrrx, Inc. | Dipeptidyl peptidase inhibitors |
| JP2007511467A (ja) | 2003-05-14 | 2007-05-10 | タケダ サン ディエゴ インコーポレイテッド | ジペプチジルペプチダーゼインヒビター |
| MXPA06001601A (es) | 2003-08-13 | 2006-08-25 | Takeda Pharmaceutical | Derivados de 4-pirimidona y su uso como inhibidores de dipeptidilpeptidasa. |
| US20050107318A1 (en) * | 2003-11-17 | 2005-05-19 | Samuel Wadsworth | Methods of treating diabetes and other blood sugar disorders |
| WO2005073400A2 (en) * | 2004-01-26 | 2005-08-11 | University Of Massachusetts | Method of identifying amp- activated protein kinase (ampk) modulators and uses therefor |
| NZ566799A (en) | 2005-09-14 | 2011-04-29 | Takeda Pharmaceutical | Dipeptidyl peptidase inhibitors for treating diabetes |
| WO2007035629A2 (en) | 2005-09-16 | 2007-03-29 | Takeda Pharmaceutical Company Limited | Process for the preparation of pyrimidinedione derivatives |
| CA2913805A1 (en) * | 2005-11-07 | 2007-05-18 | Indiana University Research And Technology Corporation | Glucagon analogs exhibiting physiological solubility and stability |
| US8324383B2 (en) | 2006-09-13 | 2012-12-04 | Takeda Pharmaceutical Company Limited | Methods of making polymorphs of benzoate salt of 2-[[6-[(3R)-3-amino-1-piperidinyl]-3,4-dihydro-3-methyl-2,4-dioxo-1(2H)-pyrimidinyl]methyl]-benzonitrile |
| TW200838536A (en) | 2006-11-29 | 2008-10-01 | Takeda Pharmaceutical | Polymorphs of succinate salt of 2-[6-(3-amino-piperidin-1-yl)-3-methyl-2,4-dioxo-3,4-dihydro-2H-pyrimidin-1-ylmethy]-4-fluor-benzonitrile and methods of use therefor |
| CN101578102B (zh) * | 2007-01-05 | 2013-07-17 | 印第安纳大学研究及科技有限公司 | 在生理性pH缓冲液中显示增强的溶解性的胰高血糖素类似物 |
| NZ578948A (en) * | 2007-02-15 | 2012-03-30 | Univ Indiana Res & Tech Corp | Glucagon/glp-1 receptor co-agonists |
| US8093236B2 (en) | 2007-03-13 | 2012-01-10 | Takeda Pharmaceuticals Company Limited | Weekly administration of dipeptidyl peptidase inhibitors |
| CA2707861A1 (en) | 2007-10-30 | 2009-05-07 | Indiana University Research And Technology Corporation | Glucagon antagonists |
| WO2009058734A1 (en) * | 2007-10-30 | 2009-05-07 | Indiana University Research And Technology Corporation | Compounds exhibiting glucagon antagonist and glp-1 agonist activity |
| US20110065633A1 (en) * | 2008-01-30 | 2011-03-17 | Indiana University Research And Technology Corporation | Ester-based peptide prodrugs |
| TWI541023B (zh) * | 2008-06-17 | 2016-07-11 | 印第安納大學科技研究公司 | 在生理ph緩衝液中呈現增強之溶解度及穩定性之升糖激素類似物 |
| ES2558842T3 (es) * | 2008-06-17 | 2016-02-09 | Indiana University Research And Technology Corporation | Agonistas mixtos a base de GIP para el tratamiento de trastornos metabólicos y obesidad |
| CA2728284C (en) | 2008-06-17 | 2019-09-10 | Richard D. Dimarchi | Glucagon/glp-1 receptor co-agonists |
| EP2376097A4 (en) | 2008-12-19 | 2012-10-03 | Univ Indiana Res & Tech Corp | PEPTIDE PRODRUGS OF AMIDE-BASED GLUCAGON SUPERFAMILY |
| WO2010148089A1 (en) | 2009-06-16 | 2010-12-23 | Indiana University Research And Technology Corporation | Gip receptor-active glucagon compounds |
| WO2011075393A2 (en) | 2009-12-18 | 2011-06-23 | Indiana University Research And Technology Corporation | Glucagon/glp-1 receptor co-agonists |
| KR20120123443A (ko) | 2010-01-27 | 2012-11-08 | 인디애나 유니버시티 리서치 앤드 테크놀로지 코퍼레이션 | 대사 장애 및 비만 치료용 글루카곤 길항제-gip 항진제 콘쥬게이트 |
| RU2012153753A (ru) | 2010-05-13 | 2014-06-20 | Индиана Юниверсити Рисерч Энд Текнолоджи Корпорейшн | Пептиды глюкагонового суперсемейства, обладающие активностью в отношении сопряженных с g-белком рецепторов |
| ES2661228T3 (es) | 2010-05-13 | 2018-03-28 | Indiana University Research And Technology Corporation | Péptidos de la superfamilia de glucagón que muestran actividad de receptor nuclear de hormona |
| US8778872B2 (en) | 2010-06-24 | 2014-07-15 | Indiana University Research And Technology Corporation | Amide based glucagon superfamily peptide prodrugs |
| NZ612297A (en) | 2010-12-22 | 2015-10-30 | Univ Indiana Res & Tech Corp | Glucagon analogs exhibiting gip receptor activity |
| CA2833623A1 (en) | 2011-04-20 | 2012-10-26 | The United States Of America, As Represented By The Secretary, Department Of Health And Human Services | Aav mediated exendin-4 gene transfer to salivary glands to protect subjects from diabetes or obesity |
| CN103857408B (zh) | 2011-06-22 | 2017-04-12 | 印第安那大学科技研究公司 | 胰高血糖素/glp‑1受体协同激动剂 |
| JP6184404B2 (ja) | 2011-06-22 | 2017-08-23 | インディアナ ユニヴァーシティ リサーチ アンド テクノロジー コーポレイション | グルカゴン/glp−1レセプターコアゴニスト |
| BR112014007124A2 (pt) | 2011-11-17 | 2017-06-13 | Univ Indiana Res & Tech Corp | superfamília de peptídeos gluxagon que exibem atividade no receptor glicocorticóide |
| ES2602486T3 (es) | 2012-06-21 | 2017-02-21 | Indiana University Research And Technology Corporation | Análogos de glucagón que muestran actividad de receptor de GIP |
| AU2013308470B2 (en) | 2012-08-31 | 2017-04-20 | The United States Of America, As Represented By The Secretary, Department Of Health And Human Services | AAV mediated aquaporin gene transfer to treat Sjogren's syndrome |
| JP6538645B2 (ja) | 2013-03-14 | 2019-07-03 | インディアナ ユニバーシティー リサーチ アンド テクノロジー コーポレーションIndiana University Research And Technology Corporation | インスリン‐インクレチン複合物 |
| US10430619B2 (en) * | 2014-05-15 | 2019-10-01 | International Business Machines Corporation | Management of digital copies of registrations using mobile devices |
| CN108271356A (zh) | 2014-09-24 | 2018-07-10 | 印第安纳大学研究及科技有限公司 | 肠降血糖素-胰岛素缀合物 |
| CA3239128A1 (en) * | 2021-12-15 | 2023-07-13 | Xuecui GUO | Polycistronic expression of gut peptides |
| US20260049337A1 (en) * | 2022-08-08 | 2026-02-19 | Nanjing Virother Biopharmaceutical Co., Ltd. | A replicative oncolytic adenovirous capable of inhibiting tumor progression and prolonging survival time in tumor-bearing individuals and use thereof |
Family Cites Families (17)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| US5118666A (en) * | 1986-05-05 | 1992-06-02 | The General Hospital Corporation | Insulinotropic hormone |
| US5436146A (en) * | 1989-09-07 | 1995-07-25 | The Trustees Of Princeton University | Helper-free stocks of recombinant adeno-associated virus vectors |
| US5545618A (en) * | 1990-01-24 | 1996-08-13 | Buckley; Douglas I. | GLP-1 analogs useful for diabetes treatment |
| US5670488A (en) * | 1992-12-03 | 1997-09-23 | Genzyme Corporation | Adenovirus vector for gene therapy |
| US5264618A (en) * | 1990-04-19 | 1993-11-23 | Vical, Inc. | Cationic lipids for intracellular delivery of biologically active molecules |
| EP0785273A1 (en) * | 1990-11-26 | 1997-07-23 | Genetics Institute, Inc. | Paired basic amino acid converting enzyme and DNA sequence encoding it |
| US5408037A (en) * | 1991-01-17 | 1995-04-18 | Zymogenetics, Inc. | Methods for detecting glucagon antagonists |
| US5270181A (en) * | 1991-02-06 | 1993-12-14 | Genetics Institute, Inc. | Peptide and protein fusions to thioredoxin and thioredoxin-like molecules |
| US5283185A (en) * | 1991-08-28 | 1994-02-01 | University Of Tennessee Research Corporation | Method for delivering nucleic acids into cells |
| DE4204808A1 (de) * | 1992-02-18 | 1993-08-19 | Basf Ag | Verfahren zur herstellung von (omega)-formylalkancarbonsaeureestern |
| US5364771A (en) * | 1992-04-07 | 1994-11-15 | Emory University | Hybrid human/porcine factor VIII |
| US5334761A (en) * | 1992-08-28 | 1994-08-02 | Life Technologies, Inc. | Cationic lipids |
| US5563045A (en) * | 1992-11-13 | 1996-10-08 | Genetics Institute, Inc. | Chimeric procoagulant proteins |
| US6013516A (en) * | 1995-10-06 | 2000-01-11 | The Salk Institute For Biological Studies | Vector and method of use for nucleic acid delivery to non-dividing cells |
| UA65549C2 (uk) * | 1996-11-05 | 2004-04-15 | Елі Ліллі Енд Компані | Спосіб регулювання ожиріння шляхом периферійного введення аналогів та похідних glp-1 (варіанти) та фармацевтична композиція |
| US5994136A (en) * | 1997-12-12 | 1999-11-30 | Cell Genesys, Inc. | Method and means for producing high titer, safe, recombinant lentivirus vectors |
| ATE310096T1 (de) * | 2000-09-18 | 2005-12-15 | Genzyme Corp | Expressionsvektoren mit hybriden ubiquitin- promotoren |
-
2002
- 2002-08-07 EP EP02763421A patent/EP1572885A2/en not_active Withdrawn
- 2002-08-07 US US10/215,272 patent/US20040002468A1/en not_active Abandoned
- 2002-08-07 JP JP2003519448A patent/JP2005509409A/ja active Pending
- 2002-08-07 WO PCT/US2002/025227 patent/WO2003014318A2/en not_active Ceased
- 2002-08-07 AU AU2002327430A patent/AU2002327430A1/en not_active Abandoned
Cited By (42)
| Publication number | Priority date | Publication date | Assignee | Title |
|---|---|---|---|---|
| JP2010528614A (ja) * | 2007-06-01 | 2010-08-26 | ベーリンガー インゲルハイム インターナショナル ゲゼルシャフト ミット ベシュレンクテル ハフツング | グルカゴン様ペプチド−1(glp−1)をコードする修飾ヌクレオチド配列 |
| US12252707B2 (en) | 2012-12-12 | 2025-03-18 | The Broad Institute, Inc. | Delivery, Engineering and optimization of systems, methods and compositions for sequence manipulation and therapeutic applications |
| US10930367B2 (en) | 2012-12-12 | 2021-02-23 | The Broad Institute, Inc. | Methods, models, systems, and apparatus for identifying target sequences for Cas enzymes or CRISPR-Cas systems for target sequences and conveying results thereof |
| US11041173B2 (en) | 2012-12-12 | 2021-06-22 | The Broad Institute, Inc. | Delivery, engineering and optimization of systems, methods and compositions for sequence manipulation and therapeutic applications |
| US12454687B2 (en) | 2012-12-12 | 2025-10-28 | The Broad Institute, Inc. | Functional genomics using CRISPR-Cas systems, compositions, methods, knock out libraries and applications thereof |
| JP2020063238A (ja) * | 2013-06-17 | 2020-04-23 | ザ・ブロード・インスティテュート・インコーポレイテッド | 分裂終了細胞の疾患および障害をターゲティングおよびモデリングするための系、方法および組成物の送達、エンジニアリングおよび最適化 |
| US12441995B2 (en) | 2013-06-17 | 2025-10-14 | The Broad Institute, Inc. | Functional genomics using CRISPR-Cas systems, compositions, methods, screens and applications thereof |
| US10577630B2 (en) | 2013-06-17 | 2020-03-03 | The Broad Institute, Inc. | Delivery and use of the CRISPR-Cas systems, vectors and compositions for hepatic targeting and therapy |
| US12553065B2 (en) | 2013-06-17 | 2026-02-17 | The Broad Institute, Inc. | Optimized CRISPR-CAS double nickase systems, methods and compositions for sequence manipulation |
| US12018275B2 (en) | 2013-06-17 | 2024-06-25 | The Broad Institute, Inc. | Delivery and use of the CRISPR-CAS systems, vectors and compositions for hepatic targeting and therapy |
| US10711285B2 (en) | 2013-06-17 | 2020-07-14 | The Broad Institute, Inc. | Optimized CRISPR-Cas double nickase systems, methods and compositions for sequence manipulation |
| US10781444B2 (en) | 2013-06-17 | 2020-09-22 | The Broad Institute, Inc. | Functional genomics using CRISPR-Cas systems, compositions, methods, screens and applications thereof |
| US11597949B2 (en) | 2013-06-17 | 2023-03-07 | The Broad Institute, Inc. | Optimized CRISPR-Cas double nickase systems, methods and compositions for sequence manipulation |
| JP2016524472A (ja) * | 2013-06-17 | 2016-08-18 | ザ・ブロード・インスティテュート・インコーポレイテッド | 肝臓ターゲティングおよび治療のためのCRISPR−Cas系、ベクターおよび組成物の送達および使用 |
| JP2016523082A (ja) * | 2013-06-17 | 2016-08-08 | ザ・ブロード・インスティテュート・インコーポレイテッド | 分裂終了細胞の疾患および障害をターゲティングおよびモデリングするための系、方法および組成物の送達、エンジニアリングおよび最適化 |
| US10946108B2 (en) | 2013-06-17 | 2021-03-16 | The Broad Institute, Inc. | Delivery, use and therapeutic applications of the CRISPR-Cas systems and compositions for targeting disorders and diseases using viral components |
| US11008588B2 (en) | 2013-06-17 | 2021-05-18 | The Broad Institute, Inc. | Delivery, engineering and optimization of tandem guide systems, methods and compositions for sequence manipulation |
| US11407985B2 (en) | 2013-12-12 | 2022-08-09 | The Broad Institute, Inc. | Delivery, use and therapeutic applications of the CRISPR-Cas systems and compositions for genome editing |
| US12421506B2 (en) | 2013-12-12 | 2025-09-23 | The Broad Institute, Inc. | Engineering of systems, methods and optimized guide compositions with new architectures for sequence manipulation |
| US11155795B2 (en) | 2013-12-12 | 2021-10-26 | The Broad Institute, Inc. | CRISPR-Cas systems, crystal structure and uses thereof |
| JP2017527256A (ja) * | 2013-12-12 | 2017-09-21 | ザ・ブロード・インスティテュート・インコーポレイテッド | HBV及びウイルス性疾患及び障害のためのCRISPR−Cas系及び組成物の送達、使用及び治療適用 |
| US12410435B2 (en) | 2013-12-12 | 2025-09-09 | The Broad Institute, Inc. | Compositions and methods of use of CRISPR-Cas systems in nucleotide repeat disorders |
| US12258595B2 (en) | 2013-12-12 | 2025-03-25 | The Broad Institute, Inc. | Systems, methods and compositions for sequence manipulation with optimized functional CRISPR-Cas systems |
| US11591581B2 (en) | 2013-12-12 | 2023-02-28 | The Broad Institute, Inc. | Compositions and methods of use of CRISPR-Cas systems in nucleotide repeat disorders |
| US10851357B2 (en) | 2013-12-12 | 2020-12-01 | The Broad Institute, Inc. | Compositions and methods of use of CRISPR-Cas systems in nucleotide repeat disorders |
| US11597919B2 (en) | 2013-12-12 | 2023-03-07 | The Broad Institute Inc. | Systems, methods and compositions for sequence manipulation with optimized functional CRISPR-Cas systems |
| US10550372B2 (en) | 2013-12-12 | 2020-02-04 | The Broad Institute, Inc. | Systems, methods and compositions for sequence manipulation with optimized functional CRISPR-Cas systems |
| US12251450B2 (en) | 2013-12-12 | 2025-03-18 | The Broad Institute, Inc. | Delivery, use and therapeutic applications of the CRISPR-Cas systems and compositions for HBV and viral diseases and disorders |
| US11624078B2 (en) | 2014-12-12 | 2023-04-11 | The Broad Institute, Inc. | Protected guide RNAS (pgRNAS) |
| US10696986B2 (en) | 2014-12-12 | 2020-06-30 | The Board Institute, Inc. | Protected guide RNAS (PGRNAS) |
| US12571005B2 (en) | 2014-12-12 | 2026-03-10 | The Broad Institute, Inc. | Protected guide RNAs (pgRNAs) |
| US12435320B2 (en) | 2014-12-24 | 2025-10-07 | The Broad Institute, Inc. | CRISPR having or associated with destabilization domains |
| US12168789B2 (en) | 2015-06-18 | 2024-12-17 | The Broad Institute, Inc. | Engineering and optimization of systems, methods, enzymes and guide scaffolds of CAS9 orthologs and variants for sequence manipulation |
| US11578312B2 (en) | 2015-06-18 | 2023-02-14 | The Broad Institute Inc. | Engineering and optimization of systems, methods, enzymes and guide scaffolds of CAS9 orthologs and variants for sequence manipulation |
| US10494621B2 (en) | 2015-06-18 | 2019-12-03 | The Broad Institute, Inc. | Crispr enzyme mutations reducing off-target effects |
| US10876100B2 (en) | 2015-06-18 | 2020-12-29 | The Broad Institute, Inc. | Crispr enzyme mutations reducing off-target effects |
| US12123032B2 (en) | 2015-06-18 | 2024-10-22 | The Broad Institute, Inc. | CRISPR enzyme mutations reducing off-target effects |
| JP2018523477A (ja) * | 2015-08-06 | 2018-08-23 | ザ・トラステイーズ・オブ・ザ・ユニバーシテイ・オブ・ペンシルベニア | Glp−1及び代謝性疾患を治療するための組成物におけるその使用 |
| JP2023029866A (ja) * | 2018-04-18 | 2023-03-07 | グラクソスミスクライン、インテレクチュアル、プロパティー、ディベロップメント、リミテッド | パルボウイルスベクターの産生 |
| JP7227983B2 (ja) | 2018-04-18 | 2023-02-22 | グラクソスミスクライン、インテレクチュアル、プロパティー、ディベロップメント、リミテッド | パルボウイルスベクターの産生 |
| JP2021518154A (ja) * | 2018-04-18 | 2021-08-02 | グラクソスミスクライン、インテレクチュアル、プロパティー、ディベロップメント、リミテッドGlaxosmithkline Intellectual Property Development Limited | パルボウイルスベクターの産生 |
| WO2024071382A1 (ja) * | 2022-09-30 | 2024-04-04 | 株式会社セルージョン | Glp-1分泌機能を有する多能性幹細胞及び幹細胞から分化誘導された細胞 |
Also Published As
| Publication number | Publication date |
|---|---|
| WO2003014318A2 (en) | 2003-02-20 |
| US20040002468A1 (en) | 2004-01-01 |
| EP1572885A2 (en) | 2005-09-14 |
| AU2002327430A1 (en) | 2003-02-24 |
| WO2003014318A3 (en) | 2006-08-03 |
| AU2002327430A8 (en) | 2006-11-09 |
Similar Documents
| Publication | Publication Date | Title |
|---|---|---|
| US20040002468A1 (en) | Methods of treating diabetes and other blood sugar disorders | |
| US12163147B2 (en) | Hepatocyte based insulin gene therapy for diabetes | |
| US6608038B2 (en) | Methods and compositions for treatment of diabetes and related conditions via gene therapy | |
| JP6023073B2 (ja) | ムコ多糖症におけるcns病変を処置するための治療戦略 | |
| US20100216709A1 (en) | Systemic insulin-like growth factor-1 therapy reduces diabetic peripheral neuropathy and improves renal function in diabetic nephropathy | |
| JP2002502608A (ja) | 血管新生促進因子である血管内皮細胞成長因子:vegfの変異体 | |
| JP2017538395A (ja) | 代謝障害を処置するための組成物及びその使用方法 | |
| JP2010528614A (ja) | グルカゴン様ペプチド−1(glp−1)をコードする修飾ヌクレオチド配列 | |
| US6503887B1 (en) | Peroral gene therapy of diabetes and obesity | |
| US20110034539A1 (en) | Methods for treating blood coagulation disorders | |
| JP2017529059A (ja) | 代謝障害を治療するための組成物および使用方法 | |
| WO2001070763A1 (en) | Modified blood clotting factors and methods of use | |
| WO2023114835A9 (en) | Gene therapies for metabolic disorders | |
| JP2011500075A (ja) | Gdnfのスプライスバリアントおよびその用途 | |
| WO2006102072A2 (en) | Use of a pa131 polypeptide in treatment of atherosclerosis | |
| US20260139024A1 (en) | Modified glucokinase nucleic acids for treating diabetes | |
| US20040143104A1 (en) | Methods of treating diabetes and other blood sugar disorders | |
| CN117321212A (zh) | 用于治疗法布里病的组合物和方法 | |
| US20050107318A1 (en) | Methods of treating diabetes and other blood sugar disorders | |
| US7867974B2 (en) | Induction of tolerance by oral administration of factor VIII and treatment of hemophilia | |
| JP6430980B2 (ja) | ムコ多糖症におけるcns病変を処置するための治療戦略 | |
| JP2008529498A (ja) | 糖尿病治療用組成物類および方法 | |
| JP2026516167A (ja) | 抗不安療法 | |
| CN118829439A (zh) | 代谢性病症的基因疗法 | |
| WO2025064350A1 (en) | Therapeutic adeno-associated virus using nucleic acid encoding alpha-glucosidase (gaa) for treating pompe disease, with heterologous signal peptide |